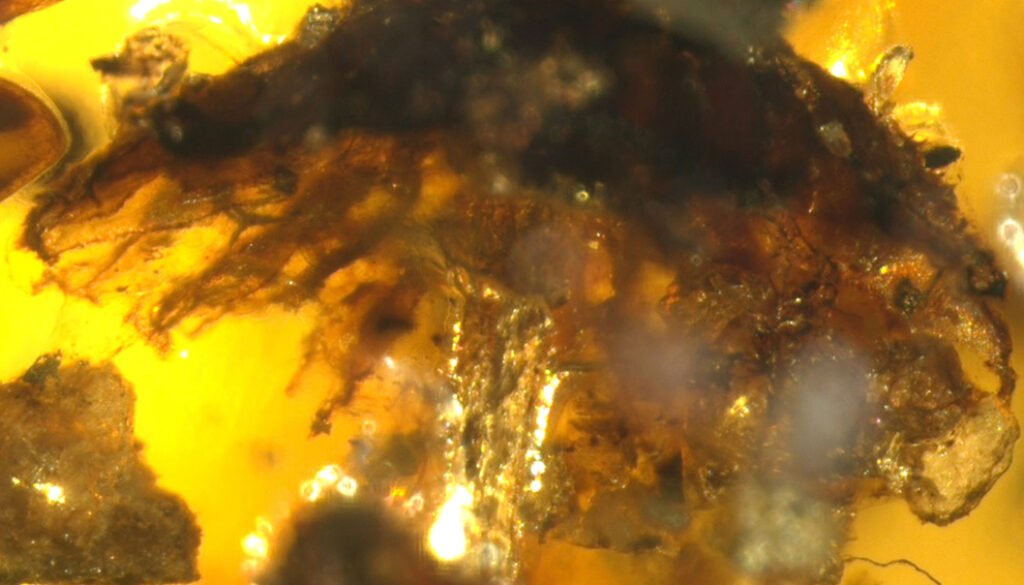
New record of a pileostipitate mushroom inclusion (Agaricales) in the early Miocene amber, Chiapas, Mexico
Diana Karen Arroyo-Sánchez, Víctor Manuel Córdova-Tabares y Emilio Estrada-Ruiz *
Instituto Politécnico Nacional, Escuela Nacional de Ciencias Biológicas, Departamento de Zoología, Prolongación de Carpio y Plan de Ayala s/n, Col. Santo Tomás, 11340 Ciudad de México, Mexico
*Autor para correspondencia: estradar@ipn.mx (E. Estrada-Ruiz)
Recibido: 18 abril 2026; aceptado: 29 julio 2026
Resumen
El ámbar del Mioceno temprano del municipio de Simojovel, Chiapas, contiene una diversidad de inclusiones biológicas considerada como una de las más importantes a nivel mundial. Dentro de las nuevas inclusiones fúngicas, se documenta el primer registro para el ámbar de Chiapas de un hongo pileoestipitado en forma de sombrilla. La inclusión fúngica presenta un basidiocarpo que se caracteriza por poseer un tamaño pequeño, compuesto de un píleo mamilado, entero a ligeramente ondulado con láminas distantes y estípite central fibroso de color marrón oscuro a anaranjado. El conjunto de características permite ubicarlo en el orden Agaricales. Este nuevo registro indica que en esta área la presencia de diferentes grupos de hongos era importante en un paleoambiente tropical a subtropical, cercano a la línea de costa.
Palabras clave: Simojovel; Paleomicología; Ámbar; Píleo; Himenio; Estípite
Abstract
The Early Miocene amber from the municipality of Simojovel, Chiapas, contains a diversity of biological inclusions considered one of the most significant worldwide. Among the new fungal inclusions documented, this study reports the first record for Chiapas amber of a pileate-stipitate fungus, in the shape of an umbrella. The fungal inclusion consists of a basidiocarp characterized by its small size, a mamillate pileus that is entire to slightly undulate, distant lamellae, and a dark brown to orange fibrous central stipe. This combination of features allows its placement within the order Agaricales. This new record indicates that the presence of diverse fungal groups was significant in this area within a tropical to subtropical paleoenvironment near the coastline.
Keywords: Simojovel; Paleomycology; Amber; Pileus; Hymenium; Stipe
Introducción
Los hongos son uno de los grupos de seres vivos más diversos, pertenecen al reino Fungi, donde se han descrito aproximadamente 150,000 especies (Bhunjun et al., 2022). Tienen una distribución cosmopolita, son organismos unicelulares o multicelulares como las hifas (septadas o cenocíticas), cuyo conjunto se conoce como micelio y poseen pared celular constituida principalmente de quitina (Gómez-Daza, 2014). El filo Basidiomycota es el segundo grupo más diverso del reino Fungi con 41,000 especies descritas; los hongos del orden Agaricales comprenden aproximadamente 46 familias con 509 géneros y 20,000 especies (Ekinci et al., 2025). Este orden se caracteriza por poseer un basidioma con píleo o sombrero con forma de paraguas, himenio con láminas y estípite o pie, la forma también puede ser clavarioide, bejines o estriados como los Nidulariaceae; crecen en climas tropicales hasta templados (Barrios-Yepes et al., 2024; Money, 2016). Ecológicamente, los basidiomicetos agaricoides desempeñan un papel importante, ya que son descomponedores primarios de materia orgánica muerta; además, pueden formar redes micorrízicas subterráneas esenciales, contribuyen a la función de los ecosistemas forestales, secuestran carbono y sostienen la fertilidad del suelo (Pérez-Moreno y Read, 2004).
En México, las regiones biogeográficas Neártica y Neotropical reflejan una gran diversidad biológica. Esta convergencia favorece a una variedad de hongos, aunque el reporte sobre cuerpos fructíferos pileados y estipitados aún es escaso (Ramírez-Cruz et al., 2022). Dentro de la superficie territorial mexicana se estima un total de 200,000 especies de hongos clasificados en diferentes filos, de las cuales sólo se han descrito 7,000 (García-Saldaña et al., 2019; Guzmán-Dávalos, 2000). En el estado de Chiapas se han documentado 61 géneros actuales del orden Agaricales, los cuales poseen gran importancia ecológica, económica y cultural, que habitan en ecosistemas como manglares, bosques y selvas (tabla 1). Algunos géneros son Agaricus L., Pleurotus (Fr.) P. Kumm, Marasmius Fr., Amanita Pers. y Psilocybe (Fr.) P. Kumm (p. ej., Chanona-Gómez et al., 2007; Cifuentes y Guzmán, 1981; Cortés-Pérez et al., 2015; Herrera y Guzmán, 1972; López-Guzmán et al., 2017; Palestina-Villa et al., 2020; Robles-Porras et al., 2006; Ruan-Soto, 2018, 2021).
| Género | Tipo de vegetación |
|---|---|
| Laccaria Berk. y Broome | Bosque de Quercus spp. y bosques mixtos de Pinus spp. y Quercus spp. |
| Amanita Pers. | Bosque de pino, encino y mesófilo de montaña |
| Hygrocybe (Fr.) P. Kumm. | Bosque de pino, encino y mesófilo de montaña Selva alta perennifolia |
| Cotylidia P. Karst. | Bosque tropical subperennifolio, bosque tropical perennifolio, bosque mesófilo de montaña, bosque de liquidámbar y Quercus spp. |
| Agaricus L. | Bosque tropical subperennifolio, bosque tropical perennifolio y bosque mesófilo de montaña Bosque de liquidámbar Bosque templado Selva tropical |
| Psathyrella (Fr.) Quél. | Bosque tropical subperennifolio, bosque tropical perennifolio bosque mesófilo de montaña, bosque de liquidámbar y Quercus spp. Selva alta perennifolia Bosque mesófilo de montaña y bosque de pino-encino |
| Hypholoma (Fr.) P. Kumm. | Sin especificar |
| Panaeolus (Fr.) Quél | Sin especificar |
| Armillaria (Fr.) Staude | Bosque mesófilo de montaña y bosque de pino-encino Bosque templado |
| Collybia (Fr.) Staude | Sin especificar |
| Tricholoma (Fr.) Staude | Bosque de pino, encino y mesófilo de montaña Bosque tropical perennifolio y bosque tropical de encino |
| Lepiota (Pers.) Gray | Bosque tropical perennifolio |
| Pluteus Fr. | Bosque tropical perennifolio |
| Macrolepiota Singer | Bosque tropical subperennifolio, bosque tropical perennifolio, bosque mesófilo de montaña, bosque de liquidámbar y Quercus spp. |
| Psilocybe (Fr.) P. Kumm | Bosque tropical subperennifolio, bosque tropical perennifolio, bosque mesófilo de montaña Bosque de pino-encino |
| Leucocoprinus Pat. | Sin especificar |
| Bolbitius Fr. | Sin especificar |
| Pleurotus (Fr.) P. Kumm | Selva alta perennifolia |
| Lepista (Fr.) W.G. Sm. | Sin especificar |
| Schizophyllum Fr. | Selva alta perennifolia |
| Galerina Earle | Bosque tropical subperennifolio, bosque tropical perennifolio, bosque mesófilo de montaña |
| Agrocybe Fayod | Sin especificar |
| Conocybe Fayod | Sin especificar |
| Coprinus Pers. | Bosque mesófilo de montaña y bosque de pino-encino |
| Cortinarius (Pers.) Gray | Bosque de pino, encino y mesófilo de montaña |
| Crepidotus (Fr.) Staude | Bosque mesófilo de montaña y selva alta perennifolia |
| Gymnopilus P. Karst. | Bosque tropical subperennifolio, bosque tropical perennifolio, bosque mesófilo de montaña |
| Inocybe (Fr.) Fr. | Bosque mesófilo de montaña y bosque de pino-encino |
| Entoloma (Fr.) P. Kumm. | Bosque de pino, encino y mesófilo de montaña Bosque tropical perennifolio y bosque tropical de encino |
| Limacella Earle | Selva alta perennifolia |
| Volvariella Speg. | Selva alta perennifolia |
| Clitocybe (Fr.) Staude | Selva alta perennifolia |
| Crinipellis Pat. | Sin especificar |
| Flammulina P. Karst. | Sin especificar |
| Hygrophorus Fr. | Bosque mesófilo de montaña y bosque de pino-encino |
| Marasmiellus Murrill | Bosque de pino-encino y bosque mesófilo de montaña |
| Omphalina Quél | Sin especificar |
| Oudemansiella Speg. | Sin especificar |
| Xeromphalina Kühner y Maire | Bosque mesófilo de montaña y bosque de pino-encino |
| Clavulinopsis Overeem | Bosque mesófilo de montaña |
| Parasola Redhead, Vilgalys y Hopple | Bosque de pino-encino y bosque mesófilo |
| Pholiota (Fr.) P. Kumm | Bosque mesófilo y bosque de pino-encino |
| Favolaschia (Pat.) Pat. | Bosque tropical |
| Gloiocephala Massee | Bosque tropical |
| Micromphale Gray | Bosque tropical |
| Cyathus Haller | Selva alta perennifolia |
| Crucibulum Tul. y C. Tul. | Selva alta perennifolia |
| Rhodoarrhenia Singer | Sin especificar |
| Clavaria Vaill.ex L. | Bosque mesófilo de montaña y bosque de pino-encino |
| Ramariopsis (Donk) Corner | Bosque mesófilo de montaña |
| Lycoperdon Pers. | Bosque tropical subperennifolio, bosque mesófilo de montaña y bosque de pino-encino |
| Tetrapyrgos E. Horak | Bosque tropical húmedo |
| Filoboletus Henn. | Bosque tropical húmedo |
| Gymnopus (Pers.) Gray | Bosque tropical subperennifolio, bosque mesófilo de montaña y bosque de pino-encino |
| Lentinula Earle | Selva alta perennifolia |
| Coprinelus P. Karst. | Bosque mesófilo de montaña y bosque de pino-encino |
| Pterula Fr. | Selva alta perennifolia |
| Tricholomopsis Singer | Sin especificar |
| Tricholosporum Guzmán | Bosque tropical perennifolio, bosque mesófilo de montaña y bosque tropical subperennifolio Bosque de liquidámbar y Quercus spp. |
| Marasmius Fr. | Bosque de pino-encino y bosque mesófilo de montaña |
| Mycena (Pers.) | Bosque tropical subperennifolio y bosque mesófilo de montaña Bosque tropical perennifolio Bosque de pino-encino |
En el municipio de Simojovel, localizado en los Altos de Chiapas, se ubican depósitos con ámbar procedentes de 2 especies extintas del género Hymenaea L.: H. mexicana Poinar y Brown y H. allendis Calvillo-Canadell et al. (Calvillo-Canadell et al., 2010; Poinar y Brown, 2002). El depósito de ámbar de Chiapas es considerado uno de los más importantes del mundo por su abundancia, riqueza y diversidad de inclusiones orgánicas que incluyen artrópodos (Huys et al., 2016; Riquelme et al., 2014; Solórzano, 2007), plantas (Alvarado-Cárdenas et al., 2025; Calvillo-Canadell et al., 2010; Estrada-Ruiz, 2023; Estrada-Ruiz y Gómez-Acevedo, 2023; Juárez-Martínez et al., 2026; Miranda, 1963; Poinar y Brown, 2002) y algunos vertebrados (Carbot-Chanona et al., 2006; Ferrusquía-Villafranca, 2006; Lazell, 1965). Guo et al. (2024) hicieron una compilación sobre las inclusiones de organismos fúngicos, en ella señalan que el orden Agaricales cuenta con 14 especímenes en el mundo desde el Cretácico Inferior (ca. 115 Ma.) hasta el Mioceno temprano (ca. 23-16 Ma.), mientras que en México no existía registro fósil previo sobre este orden.
La evidencia fósil de hongos sigue siendo incipiente y no todos los linajes cuentan con una evidencia paleontológica (Luo et al., 2023). A nivel mundial se han documentado nuevos taxones en los linajes: Chytridiomycota Doweld, Blastocladiomycota T.Y. James, Glomeromycota C. Walker y A. Schüßler, Zygomycetes G. Winter, Ascomycota Caval.-Sm. y Basidiomycota (Halbwachs et al., 2021; Taylor et al., 2015). En México, se han documentado hongos fósiles con base en esporas en sedimentos de la época Eoceno-Oligoceno (ca. 33.9 Ma.) en el área de El Bosque y Huitiupán (Tomasini-Ortiz y Martínez-Hernández, 1984); además, Palacios-Chávez (1982) estudió sedimentos al norte de Chiapas, entre los límites de los estados de Tabasco y Veracruz pertenecientes al Mioceno temprano (23-16 Ma.) al Mioceno Medio (16-11 Ma.), donde describió varios géneros con base en ascosporas relacionadas con un bosque tropical húmedo de clima tropical y templado. En el ámbar de Chiapas se han documentado algunas inclusiones con hongos, Poinar (2001) define Lycoperdites tertiarius Poinar conocidos como “puffball”; más tarde, Poinar (2003) documentó Asteromites mexicanus Poinar. Recientemente, Vršanský et al. (2011) notaron la presencia de un micelio de un hongo parásito cubriendo el cuerpo de una cucaracha, aunque el artículo se centra en la descripción del insecto y no en la morfología del hongo. El trabajo más reciente que nos habla de una interacción paleoecológica es el de Arroyo-Sánchez et al. (2025), quienes presentaron el primer trabajo formal sobre los hongos entomopatógenos que emergieron del tórax y abdomen de una termita cf. Mastotermes Froggatt.
En el presente trabajo se documenta el primer registro en el ámbar de Chiapas de un hongo agarical pileoestipitado con forma de sombrilla, el cual representa un avance significativo para uno de los grupos más diversos del reino Fungi, como es el filo Basidiomycota. Asimismo, los estudios paleomicológicos en México forman parte de la reconstrucción del paleoambiente en el Mioceno temprano.
Materiales y métodos
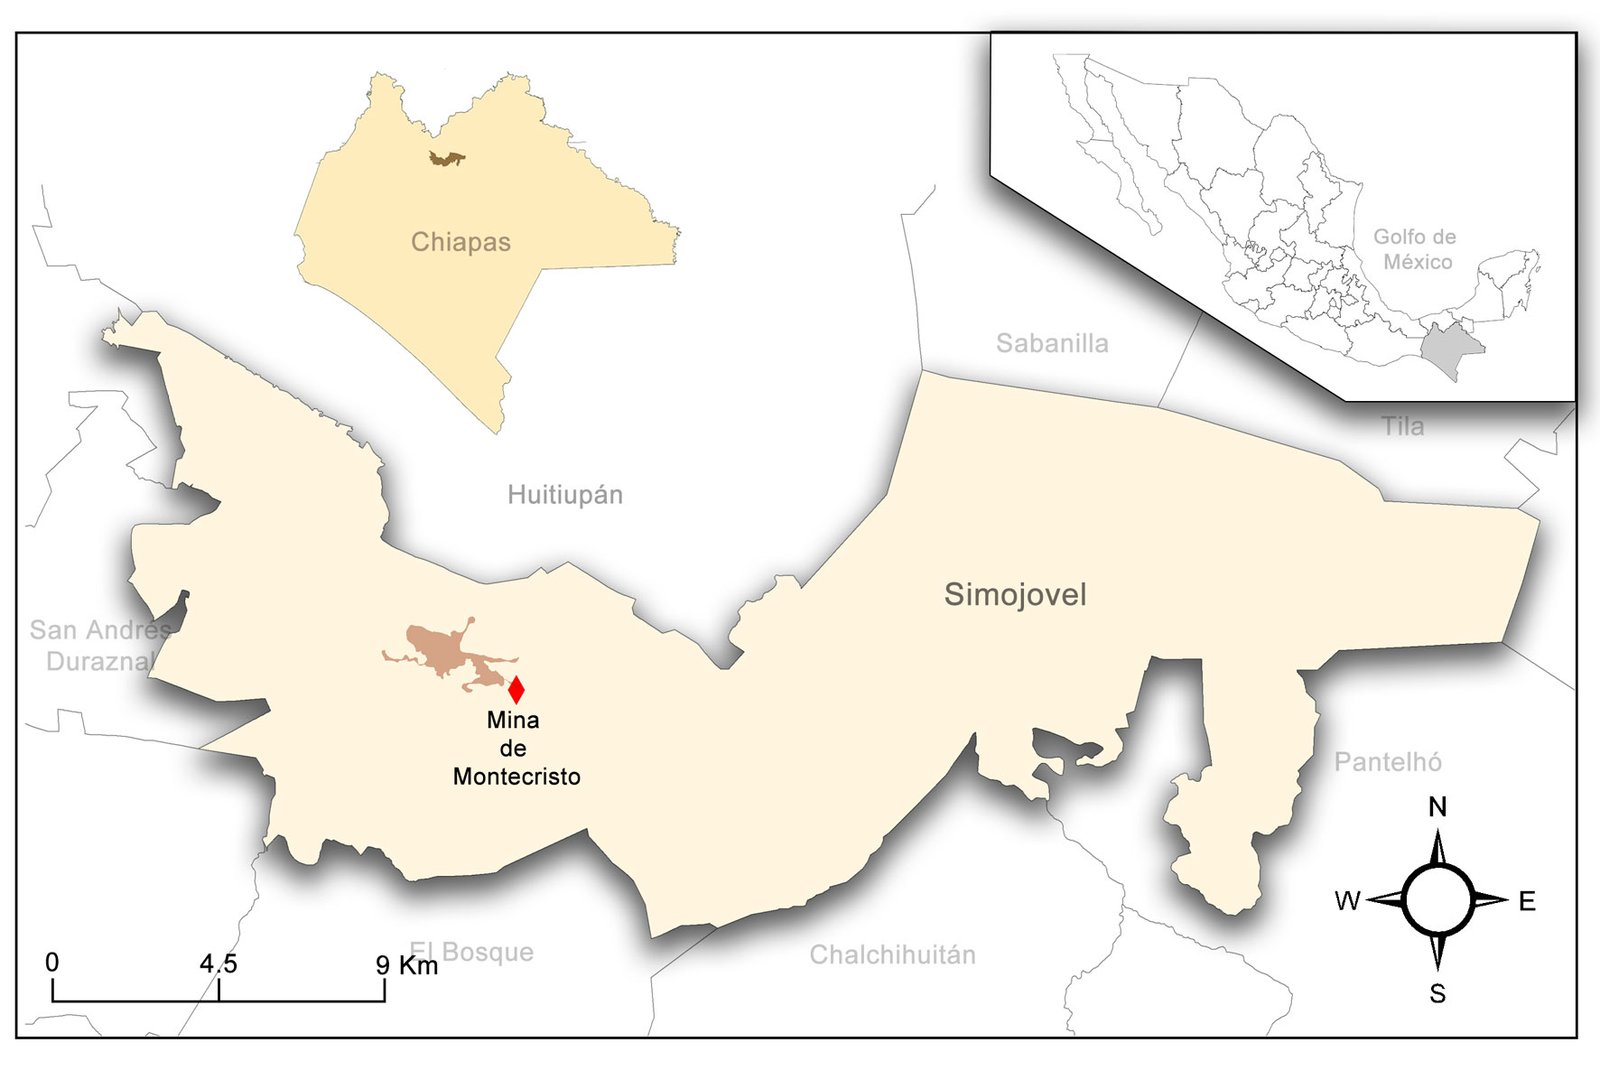
El ámbar se extrae principalmente de minas que se encuentran dentro de los estratos de la Formación Simojovel, la cual se caracteriza por una secuencia de rocas sedimentarias intercaladas con areniscas de grano grueso a fino, limolitas y calizas arenosas, y lutitas a menudo alternadas con capas de lignito derivadas de restos de plantas y suelos descompuestos (Estrada-Ruiz, 2023; Riquelme et al., 2025) (fig. 1). Respecto a su edad, se ha propuesto un rango del Oligoceno tardío al Mioceno, con base en la bioestratigrafía de la fauna coralina y de moluscos (Frost y Langenheim, 1974; Serrano-Sánchez et al., 2015; Vega et al., 2009). Recientemente, los análisis de datación con U-Pb de circones recuperados de los estratos portadores de ámbar indicaron una edad deposicional entre 23 y 16 Ma, correspondiente al Mioceno temprano (Riquelme et al., 2025). El ambiente de depósito es considerado como un estuario de plataforma somera en un ecosistema tropical cercano a una línea de costa (Hernández-Hernández et al., 2020; Perrilliat et al., 2010).
Para la observación e identificación se utilizaron 2 microscopios estereoscópicos: un Olympus SZX10 y un ZEISS Axio Zoom.V16; las fotomicrografías se obtuvieron con una cámara digital AxioCam MRc de ZEISS. La muestra de ámbar del presente estudio fue donada por la Colección de Ámbar de Chiapas Elena Estrada Millán a la Colección de Paleontología (IPN-PAL), Escuela Nacional de Ciencias Biológicas, Instituto Politécnico Nacional, Ciudad de México, México.
Descripción
Sistemática paleontológica
Filo Basidiomycota Moore, 1980
Clase Agaricomycetes Doweld, 2001
Orden Agaricales Underw., 1899
Familia Incertae sedis
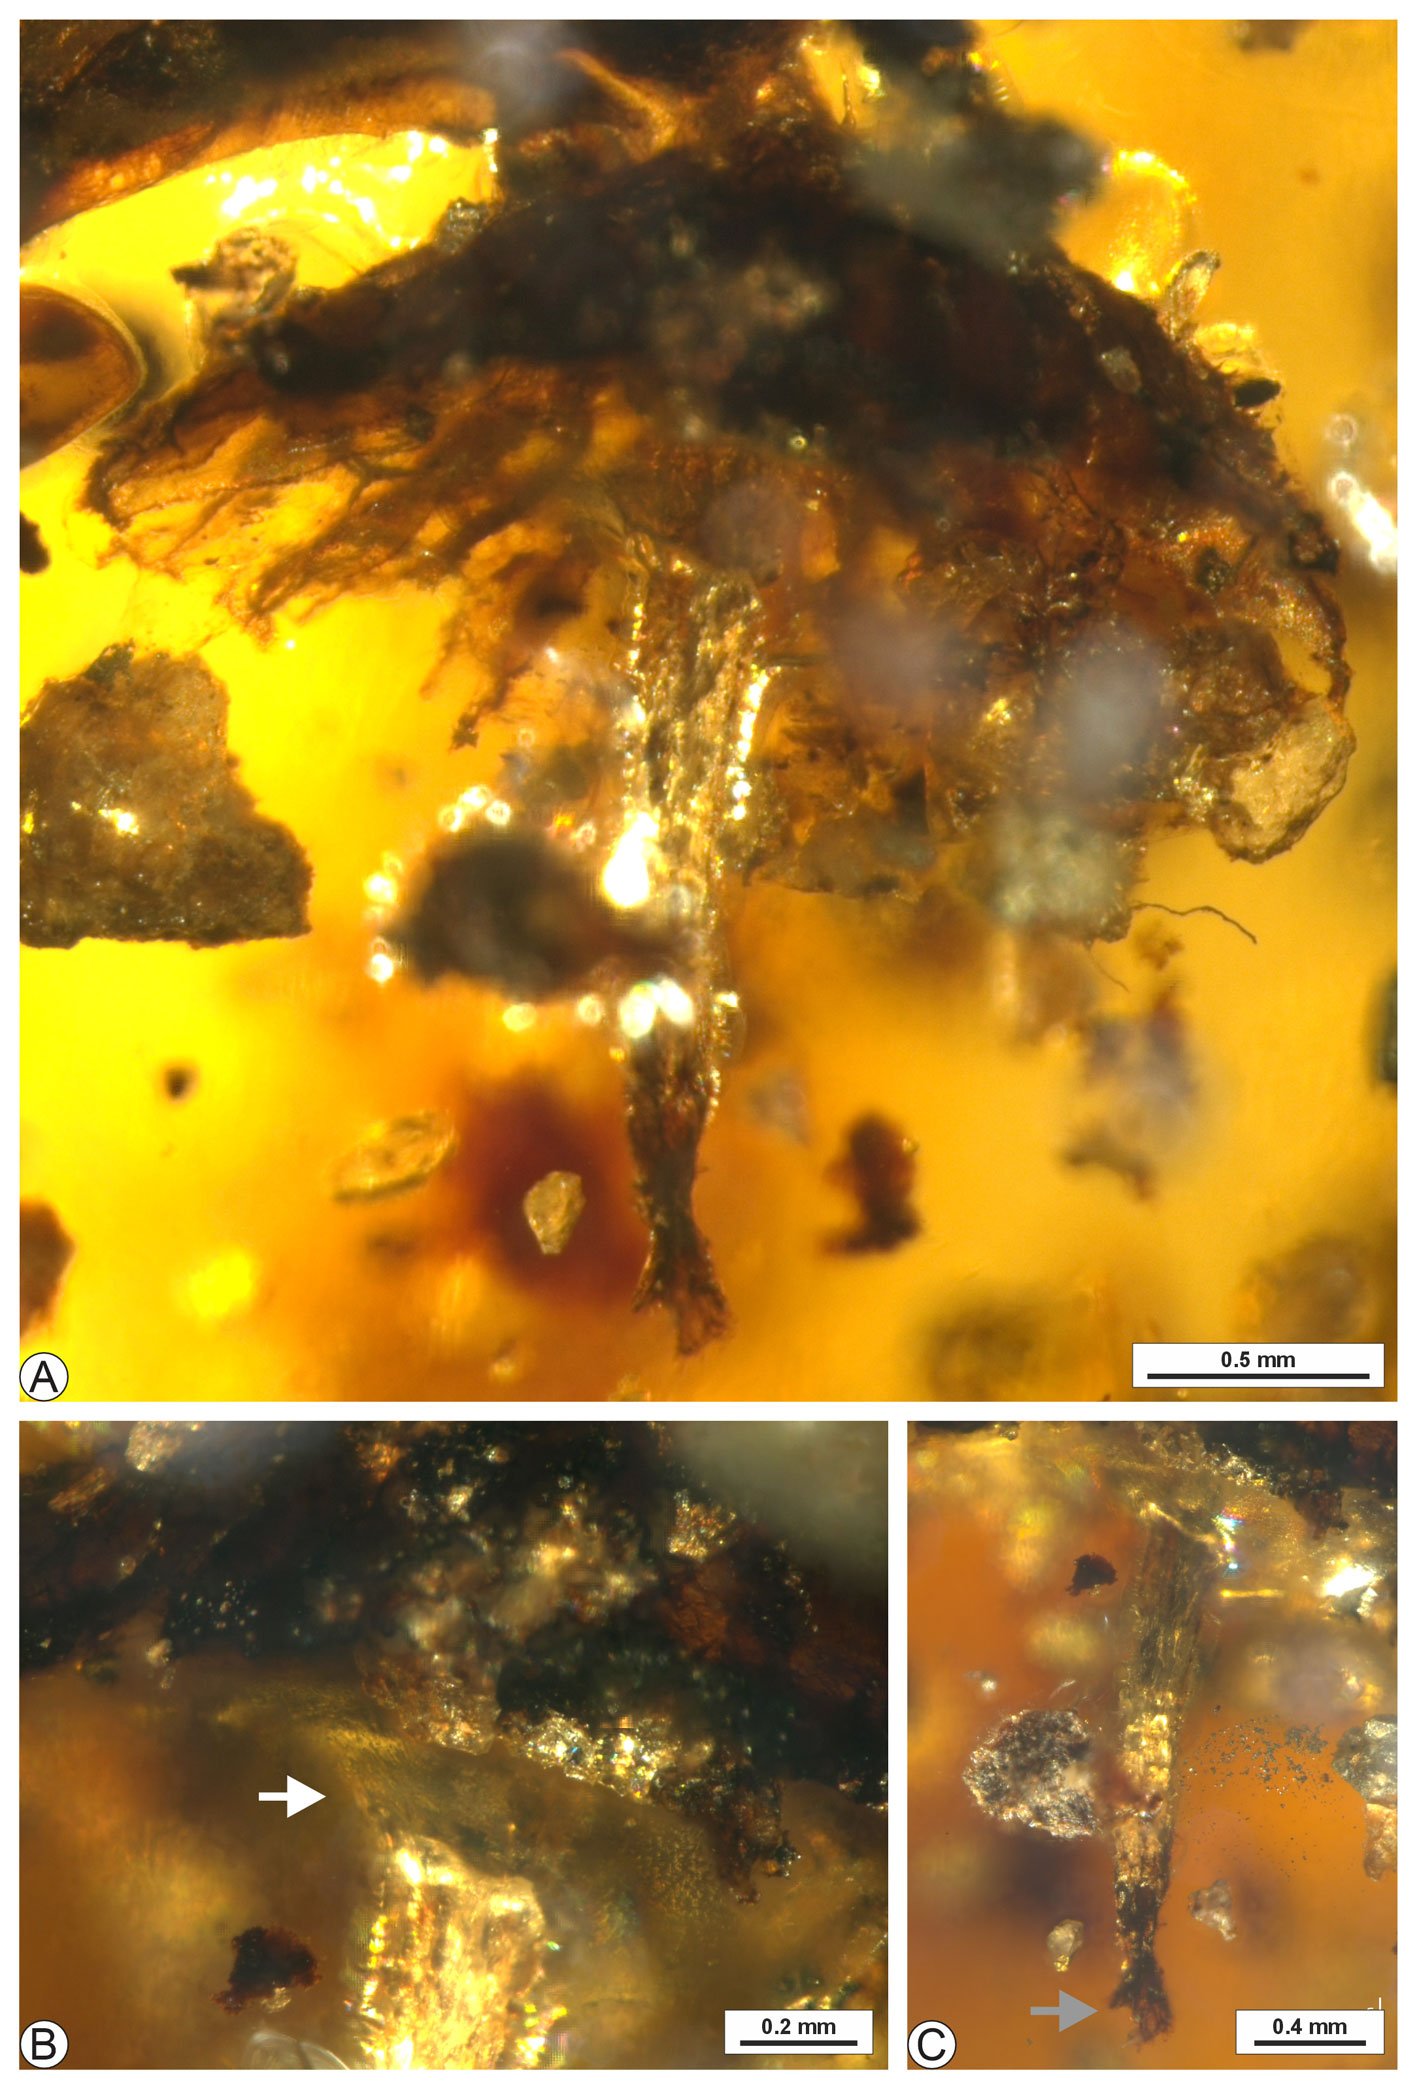
Descripción. Basidioma simple, 2.7 × 3.0 mm; píleo 3.0 × 0.9 mm, mamilado (umbo), marrón oscuro, con el margen entero a ligeramente ondulado, traslúcido-estriado, sin brillo, seco (árido), rimoso; láminas atestadas, que se extienden desde la región central hacia el margen del píleo, la parte final de este último de color anaranjado claro; estípite 1.7 × 0.2 mm, central, base rota, ausencia del sustrato al que se adhiere, cilíndrico de grosor uniforme, reticulado, fibroso, hueco; hábito de crecimiento solitario, anaranjado claro (fig. 2).
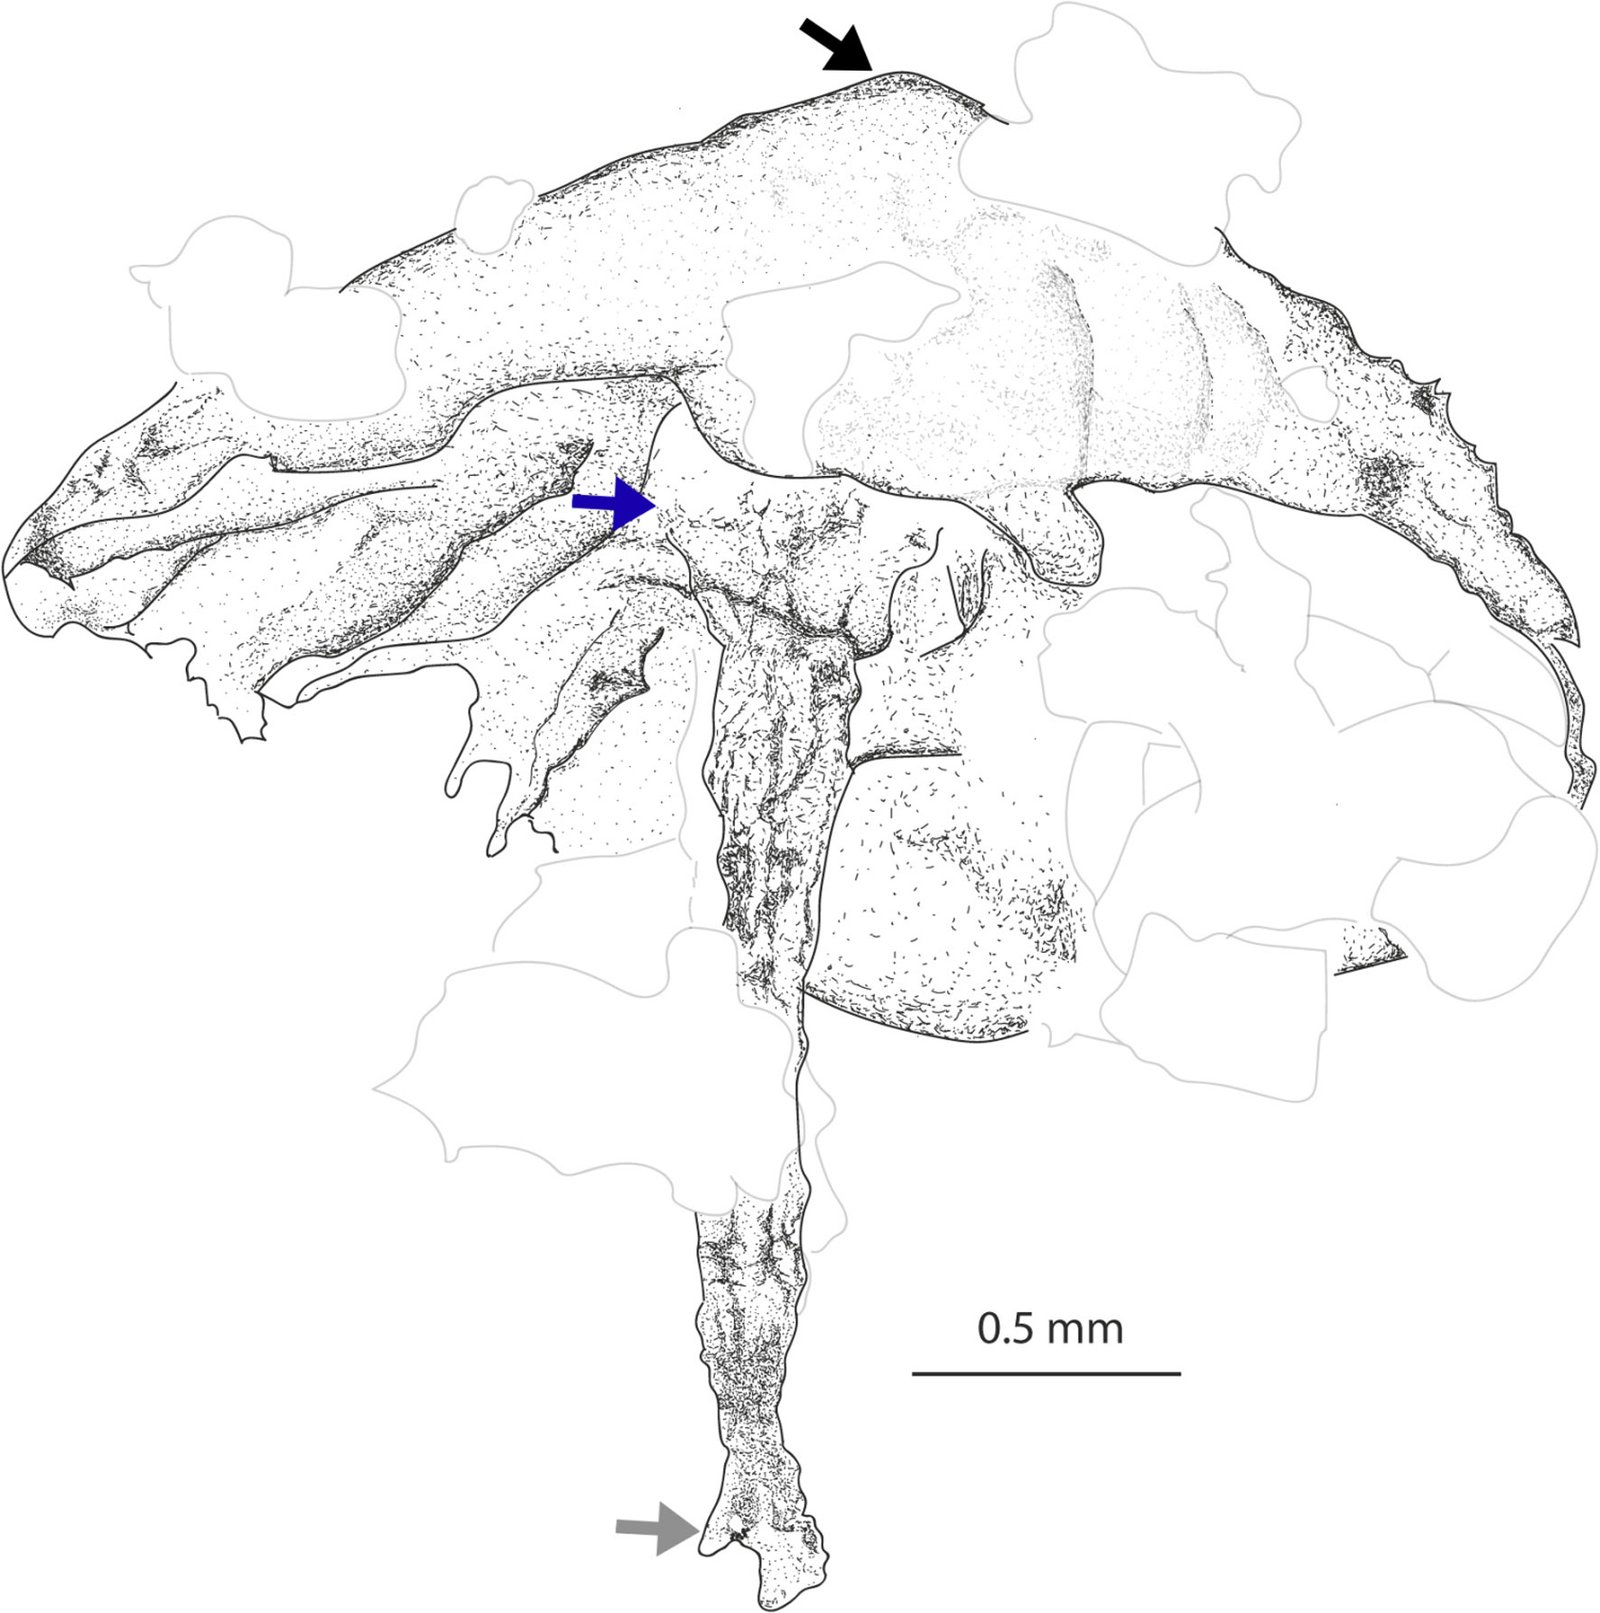
La ilustración permite apreciar con mayor claridad la morfología del basidioma, mientras que la materia orgánica no se detalla. El píleo es degradado con umbo en la parte apical, presenta himenóforo, estípite central y láminas que se distinguen al ser distantes (fig. 3).
Resumen taxonómico
Material. Minas Montecristo, municipio de Simojovel, Chiapas. Número de acceso de la colección IPN-PAL 11, ENCB, IPN.
Discusión
La inclusión del hongo de Chiapas está constituida por una serie de caracteres como la presencia de un píleo o sombrero, himenio y estípite o pie, con base en estos caracteres se comparó con los basidiomas fósiles y actuales del orden Agaricales. En particular, es complejo asignarlo directamente a una familia, puesto que las esporas no son distinguibles, pero la presencia de umbo, plano convexo, láminas distantes, color opaco y estípite central son características que se encuentran en el orden Agaricales. Aunque la carencia de esporas es importante para una asignación segura, se prefiere no relacionarla con una familia en específico.
A pesar de la rareza de los organismos fúngicos fósiles, se han documentado algunas muestras que se comparan con la inclusión de Chiapas. Hibbett et al. (1997) describen un basidioma fósil en el ámbar de Nueva Jersey de la Formación Raritan (Turoniano: 94-90 Ma.), cuenta con características de un cuerpo fructífero pileado, denominado Archaeomarasmius legetti Hibbett et al., pero difiere con el ejemplar fósil de Chiapas por la presencia del umbo en el píleo, así como en la textura del estípite al ser fibroso y el tamaño del estípite de A. legetti es menor con medidas de 1.7 × 0.2 mm.
Por otro lado, en el ámbar del Cretácico Inferior (105-99 Ma.) de Myanmar, Poinar y Buckley (2007) documentaron la interacción del micoparasitismo e hiperparasitismo en el píleo de Palaeoagaracites antiquus Poinar y Buckley. Aun cuando el basidioma no preservó el estípite, cuenta con un píleo parcialmente degradado en forma convexa, piloso y radialmente surcado, margen ligeramente incurvado, presencia de basidiosporas e hifas, pero no posee umbo y el diámetro de P. antiquus es más pequeño con una medida de 2.2 mm, por lo que difiere con el ejemplar fósil de Chiapas. Siguiendo con el ámbar de Myanmar, Cai et al. (2017) reportan 4 ejemplares (llamados taxones A-D); el taxón C es el único incompleto por no poseer estípite. El diámetro del píleo (taxones A-D) varía entre 2.6 y 3.9 mm, son ligeramente plano-convexos y radialmente sulcados, en cuanto al hongo fósil de Chiapas, tiene un diámetro de 3 mm y en la superficie se encuentra un umbo; el taxón C dispone de láminas cerradas y el fósil chiapaneco se identifica por las láminas separadas, mientras que el taxón D se caracteriza por el estípite corto, robusto y submarginal, nuestro ejemplar fósil es fibroso, de 2 colores, anaranjado claro a marrón oscuro. Estos fósiles fúngicos de Myanmar, al no presentar estructuras microscópicas como las basidiosporas, se describen con base en las características macroscópicas. Los autores relacionan a los taxones A y B con géneros actuales de la familia Marasmiaceae Roze ex Kühner: Marasmius Fr., Marasmiellus Murrill y Crinipellis Pat., pero no detallan dicha relación morfológica. Del mismo modo, explican que los basidiomas pertenecientes a la familia Marasmiaceae se preserven en el ámbar debido a que estos hongos pueden resistir a las sequías y cuando hay nuevamente humedad, vuelven a hidratarse. Este proceso se expone con el género actual Marasmius, como lo refieren Singer (1986), Warren (1992) y Ramírez et al. (2021).
Poinar (2016a) describe un hongo nombrado Gerontomyces lepidotus Poinar en el ámbar báltico (Eoceno: ca. 54 Ma.). No obstante, el estípite está roto de la base y no se presentan las basidiosporas, este basidiocarpo con láminas anchas, píleo acampanado y convexo no tiene una clasificación precisa en cuanto a la familia, además el basidioma se encuentra rodeado de escamas, estructuras que en la inclusión de Chiapas no aparecen.
Finalmente, a partir del Mioceno temprano (ca. 23-16 Ma.), todos los ejemplares descritos pertenecen al ámbar de República Dominicana, Poinar y Singer (1990) describieron tanto características macroscópicas como microscópicas. Con base en las primeras, los autores presentan un basidioma con un píleo que mide 3.5 mm, convexo, escamuloso-pectinado, pero con una pequeña depresión en el centro y el margen curvado hacia adentro, relacionado con el género actual Coprinus Pers., por lo que decidieron llamarlo Coprinites dominicanus Poinar y Singer. Se diferencia de la inclusión fósil de Chiapas, principalmente, por la forma del píleo, aunque los 2 sean convexos, el de Chiapas tiene un umbo en la parte superficial, mientras que el píleo de C. dominicanus está hundido o presenta una pequeña depresión. Por otra parte, el basidioma Protomycena electra que describen Hibbett et al. (1997) es pálido; el diámetro es de 5 mm y posee lamélulas; en nuestro basidioma el diámetro es mayor y las lamélulas están ausentes. También, Hibbett et al. (2003) explican que el cuerpo fructífero de Aureofungus yaniguaensis Hibbett et al. tiene un píleo de 3 mm de diámetro, convexo con un centro elevado y amplio, por lo que se descarta que pertenezca al mismo género que el dominicano. Por último, el trabajo de Boucot y Poinar (2010) hacen mención del basidioma inmaduro del género Favolaschia Boucot y Poinar (Mycenaceae Overeem) y lo asocia como saprótrofo (hongo-planta); sin embargo, no describen sus características morfológicas, más que el tamaño con 2.3 mm de diámetro. Posteriormente, Poinar (2016b) señala que Favolaschia está identificado provisionalmente, teniendo similitud con el género actual sin tener descripciones detalladas en el píleo, himenio y estípite sobre el ejemplar fósil.
En el año 2017, hubo un hallazgo diferente al ámbar, Heads et al. (2017) describieron un hongo nombrado Gondwanagaricites magnificus Heads et al. de la Formación Crato del Cretácico Inferior (105-99 Ma.) en Brasil. Debido a su preservación, como reemplazo mineralizado, no fue posible la visualización de basidiosporas y, por ende, no tuvo clasificación taxonómica a nivel familia, aunque G. magnificus posee unas estrías longitudinales en el estípite que podrían ser similares al aspecto fibroso del ejemplar de Chiapas; sin embargo, en G. magnificus no están completas, el ancho es mayor a la inclusión de México y no hacen mención alguna sobre el aspecto del estípite, a causa de la composición química por la sustitución de minerales de los basidiomas sobre las rocas.
A través del tiempo, la información sobre las características morfológicas de los hongos se ha incrementado en la paleomicología, pues los registros de los Agaricales más antiguos provenientes del periodo Cretácico Inferior (105-99 Ma.) mencionados anteriormente no presentan ningún cambio morfológico con los organismos actuales, como son el píleo, himenio y estípite, estructuras que se incluyen en este orden de acuerdo con Fries (1821-1832, 1835) y Singer (1962). Si bien, definir las características morfológicas del ancestro común de este grupo es incierto, con base en datos moleculares, los investigadores Varga et al. (2019) refieren que el orden Agaricales tuvo una radiación evolutiva durante el periodo Jurásico (182-160 Ma.), cuando el supercontinente Pangea se fragmentó y, como consecuencia, aparecieron bosques tropicales y subtropicales con el desarrollo de gimnospermas, teniendo así un posible mutualismo con los hongos. Durante el periodo Cretácico, los hongos adquirieron la morfología pileoestipitada como lo muestran los basidiomas fósiles del Cretácico Inferior (105-99 Ma.), convirtiéndose en una de las morfologías dominantes para esparcir sus esporas y continuar con su ciclo de vida. Garnica et al. (2007) revelan que estas estructuras microscópicas cumplen una función importante para inferir las relaciones evolutivas, como las basidiosporas pigmentadas con paredes gruesas, que tienen mayor resistencia ante las condiciones ambientales para poder colonizar otro tipo de sustrato como el estiércol, por lo que se deduce que gracias a las basidiosporas de los Agaricales, pudieron haberse diversificado.
Con base en Padilla-Velarde et al. (2016), las recolectas micológicas en México son principalmente en bosques de pino o encino con climas cálidos tropicales y subtropicales, pero la mayor cantidad de estudios están documentados en bosques templados (de la Fuente et al., 2024). Si se consideran la forma agaricoide y el tamaño del basidioma fósil de Chiapas menor a 5 mm tanto de largo como de ancho, en México se han documentado especies actuales de la familia Mycenaceae, que poseen un tamaño pequeño o menor a 10 mm. Por ejemplo, Cortés-Pérez et al. (2015) describen 5 taxones del género Mycena, diferenciados por la presencia o ausencia de querocitos y caulocistidios con espínulas; Pérez-Ramírez et al. (2014) exponen a Favolaschia que, aunque no presente las distinguidas láminas, posee un himenio poroide, similar a un panal, y descartan cualquier parecido con el fósil. Por otra parte, Ekinci et al. (2025) explican que Mycena tiene un píleo frágil, con numerosas, finas y frágiles estrías con tonalidades oscuras y brillantes, el fósil no adquiere las abundantes estrías. Otra de las familias en donde se mencionan agaricoides con un tamaño pequeño es el de Marasmiaceae, Zhang et al. (2023) mencionan que el género Marasmius dispone de laminillas collariadas, estípite nervudo e insiticio (en su mayoría) y trama dextrinoide o inamiloide; aunque su jerarquía taxonómica ha sido compleja, la definición es a través de esporas y pruebas moleculares. Antonín y Noordeloos (1993) citan la presencia de pileipellis y capacidad de marcescencia. Igualmente, Kirk et al. (2008) indican que los marasmioides se distribuyen en bosques tropicales. Adicionalmente, sobre el género Gloiocephala, Antonín et al. (2007) informan que el píleo es membranoso, delgado y con colores claros o translúcidos, estípite delgado y central con láminas reducidas hasta el margen del píleo y el aspecto del himenóforo es casi liso; en comparación con el cuerpo fructífero fósil, el estípite es distinto, puesto que en el borde del píleo, las láminas son distantes y no reducidas.
Como se expuso anteriormente, en la muestra fósil de Chiapas, el estípite del basidiocarpo presenta una rotura en la base, por lo que se desconoce el tipo de sustrato con el que estuvo asociaciado. Con base en estudios micológicos actuales, Nagy et al. (2025) documentan un amplio enfoque sobre el estudio de los basidiomicetos, en donde 70% del orden Agaricales tiene mayor representatividad dentro de la clase Agaricomycetes y cumple roles en el ecosistema como descomponedores, simbiontes micorrícicos, parásitos de plantas y hongos; el tipo de hábito ecológico depende de factores evolutivos, genéticos, fisiológicos y ecológicos —por ejemplo, la podredumbre de la madera al ser blanca (posee enzimas hidrolíticas) o marrón (carece de la mayoría de enzimas). Los descomponedores de hojarasca se especializan en distintos componentes de ésta. Su estrategia de descomposición determina el nicho ecológico del hongo, lo cual condiciona los recursos y sustratos que éste coloniza dentro del ecosistema al ocupar diferentes estratos o capas del suelo. En función de ello, se incluyen géneros de la familia Marasmiaceae, los cuales suelen ser simbiontes de hormigas y termitas. Por otro lado, los primeros fósiles de la simbiosis ectomicorrícica aparecen en el Eoceno (hace 48.7 Ma), aunque su origen posiblemente sea muy anterior. Al respecto, Watkinson (2016) describe, con base en estudios moleculares y fósiles, que esta asociación mutualista entre hongos del suelo y raíces de plantas leñosas apareció hace 100 millones de años, coincidiendo con la época en que se diversificaron las angiospermas y gimnospermas. Uno de los hongos más estudiados es Laccaria, con radiaciones recientes y una estrategia ecológica en diversos linajes de hongos, mientras que Martin et al. (2016) documentan que esta asociación requiere de doble nicho (suelo y raíz de hospedero) y los genes de Agaricales se van perdiendo en la síntesis de toxinas, además de poder manipular la fisiología del hospedero. Nagy et al. (2025) también mencionan que los fitopatógenos y parásitos son descendientes de los saprobios, que al ser raros pueden destruir bosques templados como el género Armillaria. Así mismo, Cho et al. (2025) informan que el género Mycena, además de ser bioluminiscente, se encuentra de manera saprófita con asociaciones parasitarias o ectomicorrícicas.
Tanto el grosor como el color verde oscuro del ámbar de Chiapas impiden observar estructuras microscópicas como las basidiosporas, lo que dificulta la observación detallada e interpretación de las estructuras del basidioma. Al carecer de características microscópicas, sugerimos que el basidioma fósil se clasifique a categoría de familia y como incertae sedis dentro del orden Agaricales. A pesar del tamaño, que no supera los 3 mm, toleró las condiciones ambientales para preservarse en la resina vegetal fosilizada, por tanto, representa información relevante sobre la presencia de estos cuerpos fructíferos laminares en el Mioceno temprano (ca. 23-16 Ma.) y mayor comprensión sobre la diversidad, morfología y reconstrucción de ambientes antiguos.
Se describe una nueva inclusión de un hongo del orden Agaricales en la Formación Simojovel del Mioceno temprano (ca. 23-16 Ma.), con base en el píleo, himenio y estípite se asigna al orden Agaricales. Dadas las condiciones ambientales adecuadas, la preservación nos indica una de las evidencias para comprender su evolución, cómo se desarrolló y formó parte de ecosistemas complejos asociado a bosques tropicales-subtropicales con manglares, compartiendo una posible interacción ecológica para absorber compuestos orgánicos del medio en el estado de Chiapas, donde albergaba una gran diversidad ecológica aún por descubrir. Este tipo de hallazgos fósiles son poco comunes, puesto que el hongo tuvo las condiciones adecuadas para su desarrollo y formar el basidioma, así como estar expuesto ante depredadores; es posible que tuvo asociación paleoecológica en la época del Mioceno como saprobio, ectomicorrícico o parásito y estar cercano a un árbol productor de la resina en donde el frágil basidioma pudo preservar las finas láminas, tolerar las condiciones anóxicas de la ambarización y ser sepultado durante millones de años.
El describir un ejemplar fósil fúngico, rodeado de materia orgánica y otros organismos como artrópodos y plantas, dificulta su clasificación taxonómica para llegar a familia debido a que el acomodo del basidioma no permite diferenciar las esporas, el color del ámbar dificulta su observación, sin embargo, representa una pieza clave para el conocimiento de los hongos fósiles en México.
Agradecimientos
A Susana Guzmán por la asistencia en las fotomicrografías, del Laboratorio Nacional de Biodiversidad, Instituto de Biología, Universidad Nacional Autónoma de México (UNAM). Un especial agradecimiento a los revisores, cuyos comentarios permitieron mejorar el artículo. Este trabajo fue desarrollado gracias al apoyo de la Secretaría de Ciencia, Humanidades, Tecnología e Innovación (Secihti) con una beca de posgrado a DKAS. También fue apoyado por la Secretaría de Ciencia, Humanidades, Tecnología e Innovación (CBF-2026-329) y por la Secretaría de Investigación y Posgrado, Instituto Politécnico Nacional (20260359) de E.E.R.
Referencias
Aguirre-Acosta, C. E. y Pérez-Silva, E. (1978). Descripción de algunas especies del género Laccaria (Agaricales) de México. Boletín de la Sociedad Mexicana de Micología, 12, 33–58.
Alvarado-Cárdenas, L. O., Centeno-González, N. K., Islas-Hernández, C. S. y Estrada-Ruiz, E. (2025). A new genus and species of Apocynaceae (Gentianales) seed macrofossil from the Early Miocene amber of Simojovel de Allende, Chiapas, Mexico. Palaeoworld, 34, 200983. https://doi.org/10.1016/j.palwor.2025.200983
Andrade-Gallegos, R. H. y Sánchez-Vázquez, J. E. (2023). Los hongos macroscópicos del Tacaná, el Soconusco, Chiapas, México. San Cristóbal de Las Casas: El Colegio de la Frontera Sur.
Antonín, V. (2007). Monograph of Marasmius, Gloiocephala, Palaeocephala and Setulipes in tropical Africa. Meise: National Botanic Garden (Belgium).
Antonín, V. y Noordeloos, M. E. (1993). A monograph of Marasmius, Collybia and related genera in Europe. Part. 1: Marasmius, Setulipes, and Marasmiellus. Eching: IHW-Verlag.
Arroyo-Sánchez, D. K., Víctor, J., Córdova-Tabares, V. M., Hernández-Damián, A. L. y Estrada-Ruiz, E. (2025). Entomopathogenic fungi (Ascomycota: Hypocreales) on a termite (Blattodea: Mastotermitidae) trapped in Miocene Amber from Chiapas, Mexico. Historical Biology, 37, 113–119. https://doi.org/10.1080/08912963.2023.2291769
Bandala-Muñoz, V. M., Guzmán, G. y Montoya-Bello, L. (1988). Especies de macromicetos citadas de México, VII. Agaricales, Parte II (1972-1987). Revista Mexicana de Micología, 4, 205–250.
Barrios-Yepes, A., Abaunza-Suárez, C. F., Luna-Fontalvo, J. A. y Negritto, M. A. (2024). Catálogo de hongos Agaricales de Unimagdalena. Santa Marta: Unimagdalena. https://doi.org/10.21676/9789587466973
Bhunjun, C. S., Niskanen, T., Suwannarach, N., Wannathes, N., Chen, Y. J., McKenzie, E. H. C. et al. (2022). The numbers of fungi: Are the most speciose genera truly diverse? Fungal Diversity, 114, 387–462. https://doi.org/10.1007/s13225-022-00501-4
Boucot, A. J. y Poinar, Jr. G. O. (2010). Fossil behavior compendium. Boca Raton: CRC Press. https://doi.org/10.1201/9781439810590
Cai, C., Leschen, R. A. B., Hibbett, D. S., Xia, F. y Huang, D. (2017). Mycophagus rove beetles highlight diverse mushrooms in the Cretaceous. Nature Communications, 8, 14894. https://doi.org/10.1038/ncomms14894
Calvillo-Canadell, L., Cevallos-Ferriz, S. R. S. y Rico-Arce, L. (2010). Miocene Hymenaea flowers preserved in amber from Simojovel de Allende, Chiapas, Mexico. Review of Palaeobotany and Palynology, 160, 126–134. https://doi.org/10.1016/j.revpalbo.2010.02.007
Carbot-Chanona, G., Hernández-García, E., Coutiño, M. A. y Milani, I. (2006). El primer registro de una rana fósil en Chiapas. En Memorias del X Congreso Nacional de Paleontología y Libreto Guía excursión a Tepexi de Rodríguez, Puebla. Instituto de Geología, Facultad de Ingeniería, UNAM, Ciudad de México.
Chanona-Gómez, F., Andrade-Gallegos, R. H., Castellanos-Albores, J. y Sánchez, J. E. (2007). Macromicetos del Parque Educativo Laguna Bélgica, municipio de Ocozocoautla de Espinosa, Chiapas, México. Revista Mexicana de Biodiversidad, 78, 369–381. https://doi.org/10.22201/ib.20078706e.2007.002.408
Cho, M., Yoo, Y., Lee, S. H., Kwon, D. Y., Kim, C., Kwon, S. L. et al. (2025). Six unrecorded species of Agaricales (Agaricomycetes, Basidiomycota) from Mudeungsan National Park in Korea. Mycobiology, 53, 421–434. https://doi.org/10.1080/12298093.2025.2517905
Cifuentes, J. y Guzmán, G. (1981). Descripción y distribución de hongos tropicales (Agaricales) no conocidos previamente en México. Boletín de la Sociedad Mexicana de Micología, 16, 35–61.
Cortés-Pérez, A., Ramírez-Guillén, F. y Guzmán, G. (2015). Nuevos registros de Mycena Sección Sacchariferae (Basidiomycota) para México. Revista Mexicana de Micología, 41, 79–87.
de la Fuente, J. I., Contreras-de la Rosa, P. A., Pinzón, J. P., García-Jiménez, J. y Ibarra-Garibay, L. E. (2024). Primer registro de Marasmius multiceps Berk. & M. A. Curtis (Marasmiaceae, Agaricales) en México. Funga Latina, 2, 2024. https://doi.org/10.5281/zenodo.13651516
Ekinci, F., Ugurlu G., Ozcan, G. S., Acici, K., Asuroglu, T., Kumru, E. et al. (2025). Classification of Mycena and Marasmius species using deep learning models: an ecological and taxonomic approach. Sensors, 25, 1642. https://doi.org/10.3390/s25061642
Estrada-Ruiz, E. (2023). A new species of winged fruits of Podopterus (Caryophyllales, Polygonaceae) from the Miocene amber, Chiapas, Mexico. Palaeoworld, 32, 188– 195. https://doi.org/10.1016/j.palwor.2022.06.005
Estrada-Ruiz, E. y Gómez-Acevedo, S. (2023). New fossil species of Entada genus (Fabaceae, Caesalpinioideae, mimosoid clade) from the Miocene amber of Chiapas, Mexico. Journal of South American Earth Sciences, 129, 104499. https://doi.org/10.1016/j.jsames.2023.104499
Ferrusquía-Villafranca, I. (2006). The first paleogene mammal record of middle America: Simojovelhyus pocitosense (Helohyidae, Artiodactyla). Journal of Vertebrate Paleontology, 26, 989–1001. https://doi.org/10.1671/0272-4634(2006)26[989:TFPMRO]2.0.CO;2
Fries, E. (1821–1832). Systema mycologicum: sistens fungorum ordines, genera et species huc usque cognitas, quas ad normam methodi naturalis determinavit, desposuit atque descripsit (Vols. I-111). Lund: Ex Officina Berlingiana. https://doi.org/10.5962/bhl.title.5378
Fries, E. (1935). Corpus florarum provincialium Sueciae. I. Floram scanicam. Uppsala: Typis Palmblad, Sebell & Co. https://doi.org/10.5962/bhl.title.47083
Frost, S. H. y Langenheim, Jr. R. L. (1974). Cenozoic reef biofacies. Tertiary larger Foraminifera and Scleractinian corals from Chiapas, Mexico. DeKalb: Northern Illinois University, Press.
García-Saldaña, L. C., Garza-Ocañas, F., Sobal, M., Torres-Aquino, M. y Hernández-Ríos, I. (2019). Diversidad de macromicetos en el bosque templado del Valle de Poanas, Durango. Scientia Fungorum, 49, e1240. https://doi.org/10.33885/sf.2019.49.1240
Garnica, S., Weiss, M., Walther, G. y Oberwinkler, F. (2007). Reconstructing the evolution of agarics from nuclear gene sequences and basidiospore ultrastructure. Mycological Research, 111,1019–29. https://doi.org/10.1016/j.mycres.2007.03.019
Gómez-Daza, F. (2014). Características generales de los hongos e infecciones sistémicas y oportunistas de las micosis tropicales. Ciudad de México: Editorial Médica Panamericana.
Guo, S., Deng, X., Ma, Z., Mao, N. y Huang, W. (2024). Two new species of suspected mushrooms of the suborder Marasmiineae from mid-Cretaceous Burmese amber (Basidiomycota, Agaricales). Cretaceous Research, 164, 105968. https://doi.org/10.1016/j.cretres.2024.105968
Guzmán-Dávalos, L. (2000). Los estudios sobre Agaricales en México. Boletín del Instituto de Botánica, 6, 279–295.
Halbwachs, H., Harper, C. J. y Krings, M. (2021). Fossil Ascomycota and Basidiomycota, with notes on fossil lichens and nematophytes. En O. Zaragoza y A. Casadevall (Eds.), Enciclopedia of Micology (pp. 378–195). Oxford: Elsevier. https://doi.org/10.1016/B978-0-12-819990-9.00048-2
Heads, S. W., Miller, A. N., Crane, J. L., Thomas, M. J., Ruffatto, D. M., Methven, A. S. et al. (2017). The oldest fossil mushroom. Plos One, 12, e0178327. https://doi.org/10.1371/journal.pone.0178327
Hernández-Hernández, M. J., Cruz, J. A. y Castañeda-Posadas, C. (2020). Paleoclimatic and reconstruction of the miocene southern Mexico using fossil flowers. Journal of South American Earth Sciences, 104, 102827. https://doi.org/10.1016/j.jsames.2020.102827
Herrera, T. y Guzmán, G. (1972). Especies de macromicetos citadas de México, III. Agaricales. Boletín de la Sociedad Mexicana de Micología, 6, 61–99.
Hibbett, D. S., Binder, M., Wang, Z. y Goldman, Y. (2003). Another fossil agaric from Dominican amber. Mycologia, 95, 685–687. https://doi.org/10.1080/15572536.2004.11833071
Hibbett, D. S., Grimaldi, D. y Donoghue, M. J. (1997). Fossil mushrooms from Miocene and Cretaceous ambers and the evolution of Homobasidiomyctes. American Journal of Botany, 84, 981–991. https://doi.org/10.2307/2446289
Huys, R., Suárez-Morales, E., Serrano-Sánchez, M. L., Centeno-García, E. y Vega, F. J. (2016). Early Miocene amber inclusions from Mexico reveal antiquity of mangrove associated copepods. Scientific Reports, 6, 34872. https://doi.org/10.1038/srep34872
Juárez-Martínez, C., Córdoba-Tavares, V. M., Delgadillo-Moya, C. y Estrada-Ruiz, E. (2026). Diversity of Frullania (Frullaniaceae, Marchantiophyta) from the Early Miocene amber of Chiapas, Mexico. Review of Palaeobotany and Palynology, 350, 105568. https://doi.org/10.1016/j.revpalbo.2026.105568
Kirk, P. M., Canon, P. F., Minter, D. W. y Stalpers, J. A. (2008). Ainsworth & Bisby Dictionary of the Fungi. Wallingford: CABI.
Kong, A., Montoya, A., García-de Jesús, S., Ramírez-Terrazo, A., Andrade, R., Ruan-Soto, F. et al. (2018). Hongos ectomicorrizógenos del Parque Nacional Lagunas de Montebello, Chiapas. Revista Mexicana de Biodiversidad, 89, 741–756. https://doi.org/10.22201/ib.20078706e.2018.3.2527
Lazell, Jr., J. D. (1965). An Anolis (Sauria, Iguanidae) in amber. Journal of Paleontology, 39, 379–382.
López-Guzmán, L. M., Chacón, S. y Bautista-Gálvez, A. (2017). Adiciones al conocimiento sobre la diversidad de los hongos (macromicetes) de Chiapas, México. Scientia Fungorum, 45, 27–35. https://doi.org/10.33885/sf.2017.0.1165
Luo, C., Haelewaters, D. y Krings, M. (2023). Fossils of parasitic Fungi. Authorea. https://doi.org/10.22541/au.166696714.49994889/v2
Martin, F., Kohler, A., Murat, C., Veneault-Fourrey, C. y Hibbet, D. S. (2016). Unearthing the roots of ectomycorrhizal symbioses. Nature Reviews Microbiology, 14, 760–773. https://doi.org/10.1038/nrmicro.2016.149
Martínez-Camilo, R. (2014). Diagnóstico sobre el conocimiento actual de la biodiversidad de la Reserva de la Biósfera El Triunfo, Chiapas, México. Universidad de Ciencias y Artes de Chiapas. Informe final SNIB-Conabio, proyecto No. JN010. Ciudad de México.
Miranda, F. (1963). Two plants from the amber of the Simojovel, Chiapas, Mexico, Area. Journal of Paleontology, 37, 611–614.
Money, N. P. (2016). Fungal diversity. En S. C. Watkinson, L. Boddy y N. P. Money (Eds.), The Fungi. 3rd Edition (pp. 1–36). Oxford: Academic Press. https://doi.org/10.1016/B978-0-12-382034-1.00001-3
Nagy, L. G., Branco, S., Floudas, D., Hibbet, D. S., Lofgren, L., Martin, F. et al. (2025). The biodiversity, genomics, ecology and evolution of mushroom-forming fungi. Nature Reviews Biodiversity, 2, 24–39. https://doi.org/10.1038/s44358-025-00107-z
Padilla-Velarde, E. E., Zarco-Velazco, G., Guzmán-Dávalos, L. y Cuevas-Guzmán, R. (2016). Primera contribución al conocimiento de macromicetes de la vertiente norte del cerro El Chipil, en la costa sur de Jalisco. Acta Botanica Mexicana, 114, 137–167. https://doi.org/10.21829/abm114.2016.1105
Palacios-Chávez, R. (1982). Las fungosporas del Mioceno inferior y medio del norte de Chiapas (México). Scientia Fungorum, 2, 33–42.
Palestina-Villa, E. N., Parra-Sánchez, L. A., Villegas, M., Garibay-Orijel, R. y Mendel-Ortiz, R. (2020). The known species of Agaricus (Agaricales, Agaricaceae) in Mexico, an updated and nomenclatural review. Scientia Fungorum, 50, e1269. https://doi.org/10.33885/sf.2020.50.1269
Pérez-Moreno, J. y Read, D. J. (2004). Los hongos ectomicorrízicos, lazos vivientes que conectan y nutren a los árboles en la naturaleza. Interciencia, 29, 239–247.
Pérez-Ramírez, L., Cifuentes-Blanco, J., Capello-García, S. y Villarruel-Ordaz, J. L. (2014). Favolaschia roldana (Agaricales: Mycenaceae), una especie nueva para México. Revista Mexicana de Biodiversidad, 85, 1019–1023. https://doi.org/10.7550/rmb.35244
Perrilliat, M. C., Vega, F. J. y Coutiño, M. A. (2010). Miocene mollusks from the Simojovel area in Chiapas, southwestern Mexico. Journal of South American Earth Sciences, 30, 111–119. https://doi.org/10.1016/j.jsames.2010.04.005
Poinar, Jr. G. O. (2001). Fossil puffballs (Gasteromycetes: Lycoperdales) in Mexican amber. Historical Biology, 15, 219–222. https://doi.org/10.1080/10292380109380593
Poinar, Jr. G. O. (2003). Coelomycetes in Dominican and Mexican amber. Mycological Research, 107, 117–122. https://doi.org/10.1017/S0953756202007001
Poinar, Jr. G. O. (2016a). A gilled mushrrom, Gerontomyces lepidotus gen. et sp. nov. (Basidiomycota: Agaricales), in Baltic amber. Fungal Biology, 120, 1090–1093. https://doi.org/10.1016/j.funbio.2016.06.008
Poinar, Jr. G. O. (2016b). Fossil fleshy Fungi (“mushrooms”) in amber. Fungal Genomics Biology, 6. https://dx.doi.org/10.4172/2165-8056.1000142
Poinar, Jr. G. O. y Brown, A. E. (2002). Hymenaea mexicana sp. nov. (Leguminosae: Caesalpinioideae) from Mexican amber indicates Old World connections. Botanical Journal of the Linnean Society, 139, 125–132. https://doi.org/10.1046/j.1095-8339.2002.00053.x
Poinar, Jr. G. O. y Buckley, R. (2007). Evidence of mycoparasitism and hypermycoparasitism in Early Cretaceous amber. Mycological Research, 111, 503–506. https://doi.org/10.1016/j.mycres.2007.02.004
Poinar, Jr. G. O. y Singer, R. (1990). Upper Eocene gilled mushroom from the Dominican Republic. Science, 248, 1099–1101. https://doi.org/10.1126/science.248.4959.1099
Ramírez, N. A., de Madrignac, B. R. y Niveiro, N. (2021). Marasmius magnus (Marasmiaceae, Basidiomycota) en Argentina. Darwiniana, Nueva Serie, 9, 273–281. https://doi.org/10.14522/darwiniana.2021.92.957
Ramírez-Cruz, V., Cabarroi-Hernández, M., Villalobos-Arámbula, A. R., Castro-Jauregui, O., Cortés-Pérez, A., Ramírez-Guillén, F. et al. (2022). Records of lignicolous agaricoid fungi (Agaricales, Basidiomycota) from Mexico. Lilloa, 59, 219–271. https://doi.org/10.30550/j.lil/2022.59.S/2022.09.23
Riquelme, F., Ortega-Flores, B., Estrada-Ruiz, E. y Córdova-Tabares, V. (2025). Zircon U-Pb ages of the Chiapas amber-lagerstätte in the Uppermost Simojovel Formation, Southeastern Mexico. Canadian Journal of Earth Sciences, 62, 1088–1103. https://doi.org/10.1139/cjes-2024-0100
Riquelme, F., Piedra-Jiménez, D. F., Córdova-Tabares, V. y Luna-Castro, B. (2014). A new chernetid pseudoscorpion from the Miocene Chiapas – amber lagerstätte, Mexico. Canadian Journal of Earth Sciences, 51, 902–908. https://doi.org/10.1139/cjes-2014-0087
Robles-Porras, L., Ishiki-Ishihara, M. y Valenzuela, R. (2006). Inventario preliminar de los macromicetos en los Altos de Chiapas, México. Polibotánica, 21, 89–101.
Ruan-Soto, F. (2018). Recolección de hongos comestibles silvestres y estrategias para el conocimiento de especies tóxicas entre los tsotsiles de Chamula, Chiapas, México. Scientia Fungorum, 48, 1–13. https://doi.org/10.33885/sf.2018.48.1179
Ruan-Soto, F., Cifuentes, J., Pérez-Ramírez, L., Ordaz-Velázquez, M. y Caballero, J. (2021). Hongos macroscópicos de interés cultural en los Altos de Chiapas y la selva Lacandona, México. Revista Mexicana de Biodiversidad, 92, e923525. https://doi.org/10.22201/ib.20078706e.2021.92.3525
Serrano-Sánchez, M. L., Hegna, T. A., Schaaf, P., Pérez. L., Centeno-García, E. y Vega, F. J. (2015). The aquatic and semiaquatic biota in Miocene amber from the Campo La Granja mine (Chiapas, Mexico): paleoenvironmental implications. Journal of South American Earth Sciences, 62, 243–256. https://doi.org/10.1016/j.jsames.2015.06.007
Singer, R. (1962). The Agaricales in modern taxonomy (2nd Edition). Weinheim: J. Cramer.
Singer, R. (1986). The Agaricales in modern taxonomy (4th Edition). Koenigstein: Koeltz Scientific Books.
Solórzano, M. M. (2007). Systematic, palaeoecology, and palaeobiogeography of the insect fauna from Mexican amber. Palaeontographica, 282, 1–133. https://doi.org/10.1127/pala/282/2007/1
Taylor, T., Krings, M. y Taylor, E. (2015). Fossil Fungi. London: Academic Press.
Tomasini, A. C. y Martínez-Hernández, E. (1984). Palinología del Eoceno-Oligoceno de Simojovel, Chiapas. Paleontología Mexicana, 50, 1–63. https://doi.org/10.22201/igl.05437652e.1984.0.50.333
Varga, T., Krizsán, K., Földi, C., Dima, B., Sánchez-García, M., Sánchez-Ramírez, S. et al. (2019). Megaphylogeny resolves global patterns of mushrooms evolution. Nature Ecology and Evolution, 3, 668–678. https://doi.org/10.1038/s41559-019-0834-1
Vega, F. J., Nyborg, T., Coutiño, M. A., Solé, J. y Hernández-Monzón, O. (2009). Neogene Crustacea from Southeastern Mexico. Bulletin of the Mizunami Fossil Museum, 35, 51–69.
Vršanský, P., Cifuentes-Ruiz, P., Vidlička, L. Čiampor, F. y Vega, F. J. (2011). Afro-Asian cockroach from Chiapas amber and the lost Tertiary American entomofauna. Geologica Carpathica, 62, 463–475. https://doi.org/10.2478/v10096-011-0033-8
Warren, L. J. (1992). Revival of metabolism in rehydrated Marasmius oreades (Tesis). College of Saint Benedict/ Saint John’s University. Minnesota, EUA.
Watkinson, S. C. (2016). Molecular ecology. En S. C. Watkinson, L. Boddy y N. P. Money (Eds.), The Fungi, 3rd Ed. (pp. 189–204). Oxford: Academic Press.
Zhang, Q. Y., Si, J. y Li, H. J. (2023). A new Marsmius species (Agaricales, Marasmiaceae) with sessile basidiomata growing on wood, from Yunnan, China. Phytotaxa, 578, 169–179. https://doi.org/10.11646/phytotaxa.578.2.3