Martha Isabel Vilchis a, *, Ileana Ortegón-Aznar a, Mariana Álvarez-Rocha a, Armin Tuz-Sulub a, María del Carmen Galindo-de Santiago b, Nuno Simões b, c, Juan P. Pinzón a y Alain Duran d
a Universidad Autónoma de Yucatán, Departamento de Botánica, Km 15.5 Carretera Mérida-Xmatkuil, Apartado postal 4-116 Itzimna, 97000 Mérida, Yucatán, México
b Universidad Nacional Autónoma de México, Unidad Multidisciplinaria de Docencia e Investigación-Sisal, Facultad de Ciencias, Puerto de Abrigo, 97135 Sisal, Yucatán, México
c Conahcyt, Laboratorios Nacionales, Laboratorio Nacional de Resiliencia Costera, 97356 Sisal, Yucatán, México
d Florida International University, Institute for Water and Environment, Department of Biological Sciences and Center for Coastal Ocean Research, Owa Ehan, 148, 11960 SW 11th St, Miami, Florida 33199, EUA
Recibido: 14 de diciembre de 2023; aceptado: 12 de junio de 2024
Resumen
Los ambientes insulares de la zona de transición biótica del Atlántico mexicano son de los más diversos en cuanto a macroalgas se refiere, esto a pesar de que solo existe información florística para 2 de los 80 elementos insulares reportados para el área. En este trabajo se presenta, por primera vez, la diversidad taxonómica de 3 ambientes insulares de la zona. Se realizaron diversas recolectas de macroalgas marinas bentónicas en los arrecifes Bajos de Diez, Madagascar y Serpientes. Los especímenes recolectados fueron identificados morfológicamente con la finalidad de obtener la composición florística de cada arrecife y su riqueza específica. Se calculó la similitud entre la flora de los 3 arrecifes empleando un análisis de agrupamiento UPGMA bajo el índice de Jaccard. Se presenta un listado de 119 especies de macroalgas marinas bentónicas para los 3 arrecifes estudiados, de las cuales 9 constituyen nuevos registros para Yucatán. El arrecife con mayor diversidad taxonómica fue Bajos de Diez (78 spp.), seguido de Madagascar (53 spp.) y Serpientes (24 spp.). Bajos de Diez y Serpientes presentaron la mayor similitud florística entre sí. Exploraciones futuras de ambientes insulares desconocidos conducirán, con seguridad, al aumento de la diversidad florística en el área.
Palabras clave: Arrecifes; Ficoflora; Nuevos registros; Península de Yucatán
Benthic marine macroalgae from insular environments in the biotic transition zone of the Mexican Atlantic
Abstract
The island environments of the biotic transition zone of the Mexican Atlantic are among the most diverse in terms of macroalgae, this, despite the fact that there is only floristic information for 2 of the 80 island environments reported for the area. In this work, the taxonomic diversity of 3 island environments in the area are presented for the first time. Various collections of benthic marine macroalgae were carried out in the Bajos de Diez, Madagascar y Serpientes. The collected specimens were morphologically identified to obtain the floristic composition for each reef, as well as its specific richness. The similarity between the flora of the 3 reefs was calculated using UPGMA clustering analysis based on the Jaccard index. A checklist of 119 benthic marine macroalgae is presented for the 3 reefs studied, 9 of them are new records for Yucatán. The reef with the highest taxonomic diversity was Bajos de Diez (78 spp.), followed by Madagascar (53 spp.) and Serpientes (24 spp.). Bajos de Diez and Serpientes presented the greatest floristic similarity between them. Future explorations of unknow island environments will surely lead to increased floristic diversity in the area.
Keywords: Reefs; Phycoflora; New records; Yucatán Peninsula
Introducción
Las macroalgas marinas bentónicas son uno de los grupos más representativos dentro de los ecosistemas marinos costeros e insulares (Dreckmann, 1998; Pedroche y Sentíes, 2020). En México, su estudio se ha incrementado considerablemente en la última década, sobre todo en temas florísticos, taxonómicos y sistemáticos (García-García et al., 2020, 2021; Núñez-Resendiz et al., 2017; Pedroche y Sentíes, 2020). Sin embargo, este conocimiento se ha sesgado hacia ambientes marinos continentales, siendo pocos los trabajos enfocados en el estudio de la diversidad macroalgal insular (Carranza-Ramírez et al., 2023; González-Solis et al., 2018; Ortegón-Aznar y Aguilar-Perera, 2014; Robledo et al., 2003). La importancia de estudiar la biota de ambientes insulares radica en que sus procesos ecológicos y dinámicas evolutivas son muy particulares debido a su aislamiento, tamaño y origen, siendo los ecosistemas con mayor riqueza de especies en el mundo, muchas de ellas endémicas o provenientes de distintas regiones biogeográficas, cuyas poblaciones son altamente vulnerables (INEGI, 2015; Whittaker y Fernández-Palacios, 2007).
La zona de transición biótica del Atlántico mexicano abarca toda la región marítima del estado de Yucatán y se denomina así por ser el punto de encuentro entre las biotas marinas del golfo de México y el mar Caribe, esto hace que potencialmente sus ambientes insulares sean de los más biodiversos del país (Vilchis et al., 2018). En cuanto a macroalgas se refiere, resulta paradójico que a pesar de ser una de las zonas de mayor riqueza específica (García-García et al., 2020; Tapia-Silva et al., 2015; Vilchis et al., 2018), tan solo se tenga conocimiento ficoflorístico de 2 de los 80 elementos insulares (islas, arrecifes y cayos) registrados por el INEGI (2015) para el área, los cuales son Arrecife Alacranes y Cayo Arenas. Lo anterior es evidencia de los vacíos de información que existen sobre la diversidad de macroalgas en estos ecosistemas ubicados en una región biogeográficamente compleja (Tapia-Silva et al., 2015; Vilchis et al., 2018).
En consecuencia, el objetivo de este trabajo fue contribuir al conocimiento de las macroalgas marinas bentónicas de ambientes insulares, presentando la composición taxonómica de 3 arrecifes de la zona de transición biótica del Atlántico mexicano, cuya ficoflora hasta el momento se desconoce.
Materiales y métodos
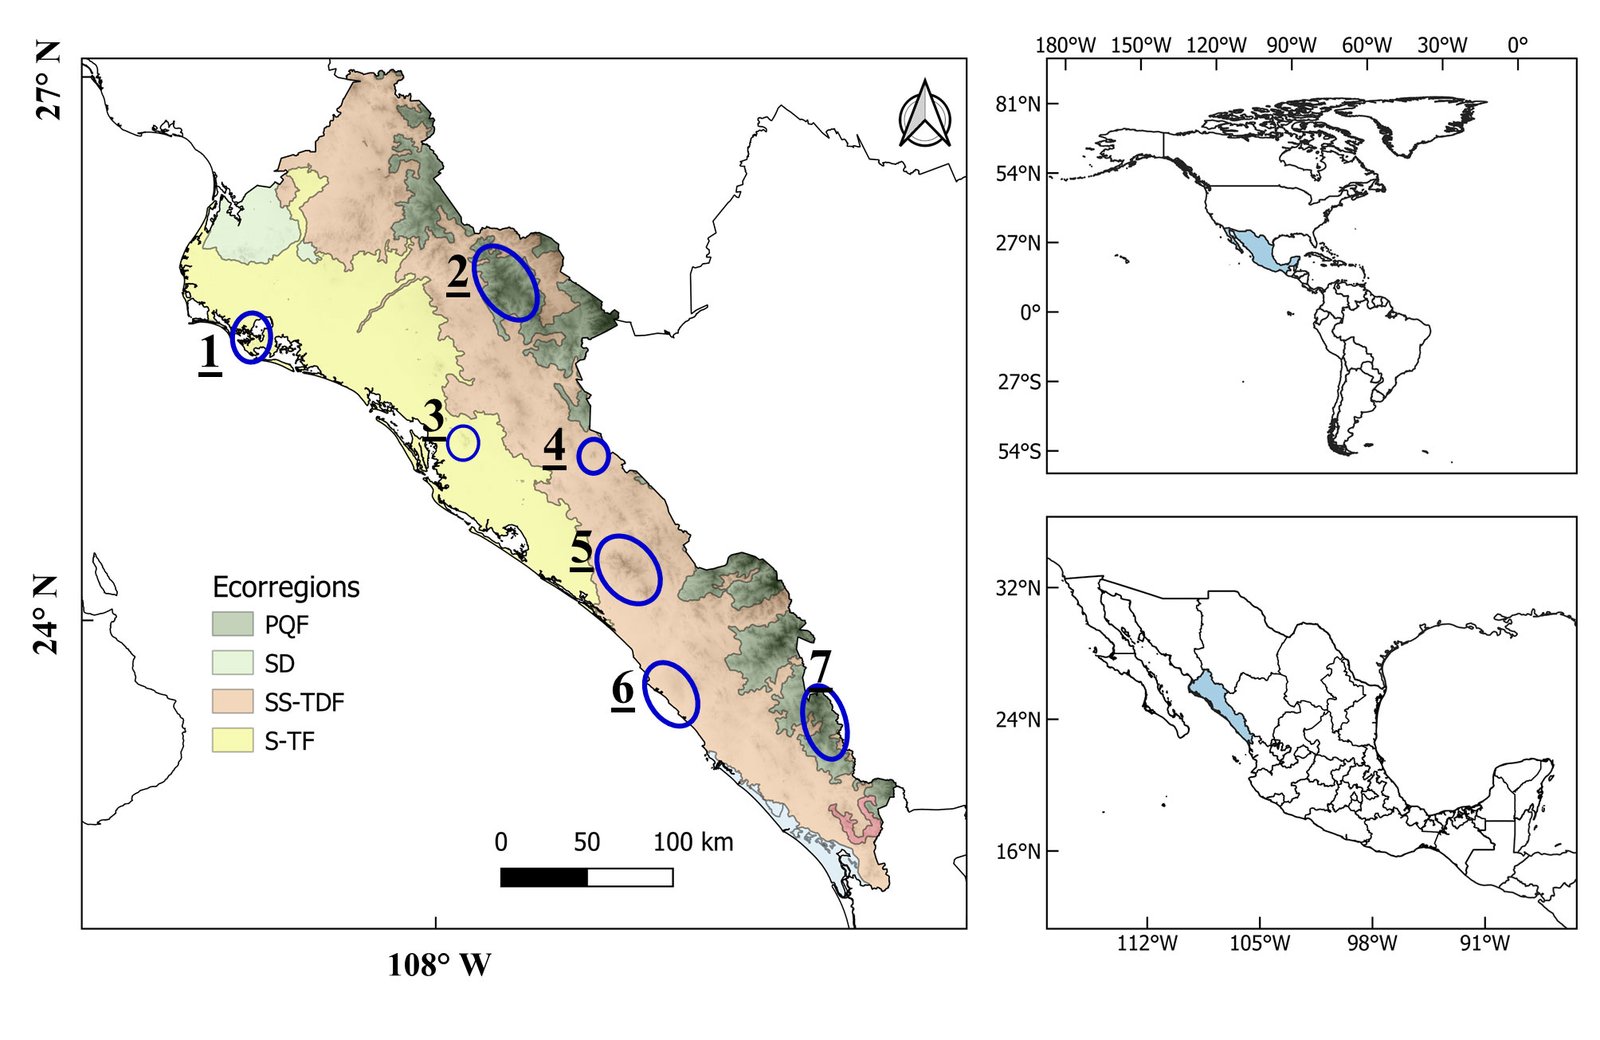
Los arrecifes explorados fueron Bajos de Diez, Madagascar y Serpientes, los cuales pertenecen al Sistema Arrecifal Sisal, Yucatán (fig. 1). Todos ellos son someros y presentan un fondo mayormente carbonatado (Zarco-Perelló et al., 2013). Están ubicados al noroeste de la península de Yucatán entre las coordenadas 21°20’ N, 90°14’ O y 21°14’ N, 89°50’ O (Winfield et al., 2020).
Bajos de Diez es el más cercano a la costa (23 km), tiene el área más grande (0.67 km2) y profundidades de 2 a 10 m, predominan las llanuras arenosas y varios arrecifes segregados. Madagascar es una sola estructura arrecifal (0.21 km2) que se encuentra a 40 km de la costa, con profundidades de 4 a 13 m. Serpientes, el más pequeño de todos (0.17 km2), se ubica a 54 km del continente con profundidades de 7 a 13 m y cuenta con 2 unidades de arrecife separadas por 2.5 km (Zarco-Perello y Simões 2017; Zarco-Perelló et al., 2013).
Tabla 1
Coordenadas y fechas de muestreo de cada estructura arrecifal estudiada de Sisal.
Estructura arrecifal
Estación
Coordenadas
Fecha/ estacionalidad
Bajos de Diez
B. D. 1
21°21’12.6” N
90°09’27.5” O
Diciembre 2012 (secas), 2013, abril 2017 y julio 2019 (lluvias)
B. D. 2
21°21’6.32” N
90°09’23.4” O
B. D. 3
21°20’59.53” N
90°09’21.7” O
B. D. 4
21°50’52.2” N
90°08’56.4” O
Madagascar
MAD1
21°26’26.1” N
90°16’55.2” O
Agosto y septiembre 2007 (lluvias)
MAD2
21°26’19.2” N
90°16’56.5” O
MAD3
21°26’19.2” N
90°16’42.3” O
MAD4
21°26’29.6” N
90°17’36.1” O
Serpientes
SER1
21°26’05.2” N
90°27’23.1” O
Julio 2017 (lluvias)
SER2
21°26’21.7” N
90°28’22.5” O
Se realizaron en total 6 buceos SCUBA en diversos sitios de los arrecifes de Sisal durante los años 2007 (arrecife Madagascar), 2012 a 2019 (Bajos de Diez) y 2017 (Serpientes) para la recolecta de macroalgas marinas bentónicas (tabla 1). Es importante resaltar que el esfuerzo de muestreo fue más intensivo en Bajos de Diez, con un mayor número de recolectas (tabla 1). Los especímenes fueron recolectados a mano, desprendiéndolos del sustrato rocoso con ayuda de una espátula y colocados en bolsas herméticas con agua de mar. Cada ejemplar fue identificado mediante observaciones morfológicas macro y microscópicas, siguiendo las obras de Dawes y Mathieson (2008), Littler y Littler (2000), Taylor (1960) y Wynne (2022). La nomenclatura fue verificada en la base de datos Algaebase (Guiry y Guiry, 2024). Las muestras se preservaron individualmente en húmedo con formalina al 4%, posteriormente fueron depositadas en el Herbario Alfredo Barrera Marín de la Universidad Autónoma de Yucatán (UADY).
Figura 1. Ubicación geográfica de los arrecifes de Sisal estudiados en este trabajo. 1, Serpientes; 2, Madagascar; 3, Bajos de Diez.
La diversidad taxonómica para cada arrecife se obtuvo contabilizando el número de familias, géneros y especies presentes en ellos. Además, se calculó la frecuencia relativa (fi) de cada especie en los 10 sitios de muestreo (4 en Bajos de Diez, 4 en Madagascar y 2 en Serpientes), con la finalidad de conocer cuáles eran las más frecuentes en los 3 arrecifes estudiados (tabla 1).
La similitud florística entre las 3 estructuras arrecifales estudiadas se evaluó realizando una matriz de presencia-ausencia de las especies en cada sitio, la cual fue sometida a un análisis de agrupamiento bajo el índice de Jaccard (IJ) y el algoritmo por ligamiento promedio no ponderado (UPGMA, por sus siglas en inglés) en el programa PAST v4.7b (Hammer et al., 2001). El análisis resumió los resultados en un fenograma.
Resultados
Se presenta un listado de 119 especies de macroalgas marinas bentónicas para los 3 arrecifes estudiados, las cuales se distribuyen en 32 familias y 59 géneros (tabla 2): 41 especies pertenecen a Chlorophyta (algas verdes), 51 a Rhodophyta (algas rojas) y 24 a Ochrophyta (Phaeophyceae, algas pardas). Nueve especies corresponden a nuevos registros para Yucatán (tabla 2), señalados con un asterisco, 2 son algas verdes (Udotea abbottiorum D.S. Littler et Littler, Microdictyon marinum (Bory) P.C. Silva), 2 algas pardas (Padina perindusiata Thivy, Sargassum platycarpum Montagne) y 5 algas rojas (Dictyurus occidentalis J. Agardh, Gracilaria cuneata Areschoug, Corynomorpha clavata (Harvey) J. Agardh, Platoma gelatinosum (M. Howe) C.W. Schneider, McDevit, G.W. Saunders et C.E. Lane, Ceratodictyon variabile (J. Agardh) R.E. Norris), algunas de estas se muestran en la figura 2.
Figura 2. Fotografías de 6 de las macroalgas que integran el listado presentado, 5 de ellas corresponden a los nuevos registros. A, Platoma gelatinosum; B, Udotea abbottiorum; C, Cladophora prolifera; D, Microdictyon marinum; E, Dictyota dichotoma; F, Corynomorpha clavata.
Las familias mejor representadas por su número de especies fueron: Caulerpaceae (11), Dictyotaceae (18), Halimedaceae (17) y Rhodomelaceae (13). La estructura arrecifal que presentó mayor diversidad taxonómica fue Bajos de Diez, seguida de Madagascar y por último Serpientes (fig. 3). Las divisiones predominantes en los 3 arrecifes fueron Chlorophyta y Rhodophyta (fig. 4).
Figura 3. Diversidad taxonómica en cada estructura arrecifal muestreada.
Figura 4. Predominancia de las divisiones algales en 3 arrecifes de Sisal. Las cifras en cada barra corresponden al número de especies por cada división.
Las especies que fueron registradas en los 3 arrecifes fueron 5: Caulerpa verticillata J. Agardh, Halimeda incrassata (J. Ellis) J. V. Lamouroux, Penicillus dumetosus (J. V. Lamouroux) Blainvillea, Dictyopteris delicatula J.V. Lamouroux y Asparagopsis taxiformis (Delile) Trevisan. En cuanto a la frecuencia relativa (fi, material suplementario: S1), Asparagopsis taxiformis fue la especie más frecuente en las 3 estructuras arrecifales (fi = 80%), seguida de Codium isthmocladum, Halimeda incrassata, Halimeda sp., Dictyopteris delicatula, Dictyota sp., Hypnea spinella y Dictyurus occidentalis (fi = 60%). La mayor parte de las especies (82) se presentaron una sola vez, 49 en Bajos de Diez, 26 en Madagascar y 7 en Serpientes.
El fenograma resultado del análisis de agrupamiento, muestra de manera general 2 grupos con una similitud florística de aproximadamente 7% (fig. 5); el primer grupo integra a los arrecifes de Bajos de Diez y Serpientes, similares en su composición florística de especies en aproximadamente 15% y el segundo grupo, solo formado por las estaciones muestreadas en arrecife Madagascar. Los porcentajes de similitud revelan que la composición florística de los arrecifes explorados, en realidad, son disímiles entre sí.
Figura 5. Fenograma resultante del análisis de agrupamiento. Los nombres en cada rama terminal son las abreviaciones empleadas para nombrar y numerar las estaciones muestreadas en cada arrecife. BD: Bajos de Diez; Mad: Madagascar; Ser: Serpientes. La línea punteada señala el porcentaje de similitud entre los 2 grupos principales formados en el fenograma.
Tabla 2
Listado de macroalgas marinas bentónicas de los arrecifes de Sisal, Yucatán, México. * Registros nuevos para Yucatán.
Especie
Bajos de Diez
Madagascar
Serpientes
Ochrophyta
Dictyotaceae
Canistrocarpus cervicornis (Kützing) De Paula y De Clerck
X
X
Canistrocarpus crispatus (J.V. Lamouroux) De Paula et De Clerck
X
X
Dictyopteris delicatula J.V. Lamouroux
X
X
X
Dictyopteris jamaicensis W.R. Taylor
X
Dictyopteris justii J.V. Lamouroux
X
Dictyopteris plagiogramma (Montagne) Vickers X95
X
Dictyopteris polypodioides (De Candolle) J.V. Lamouroux
X
X
Dictyota ciliolata Sonder ex Kützing
X
Dictyota dichotoma (Hudson) J.V. Lamouroux
X
X
Dictyota mertensii (C. Martius) Kützing
X
Dictyota pinnatifida Kützing
X
Dictyota pulchella Hörning et Schnetter
X
Lobophora variegata (J.V. Lamouroux) Womersley ex E.C. Oliveira
X
X
Padina boergesenii Allender et Kraft
X
Padina pavonica (Linnaeus) Thivy
X
Padina perindusiata Thivy *
X
Padina sanctae-crucis Børgesen
X
X
Spatoglossum schroederi (C. Agardh) Kützing
X
Sphacelariaceae
Sphacelaria rigidula Kützing
X
Chordariaceae
Cladosiphon occidentalis Kylin
X
Nemacystus howei (W.R.Taylor) Kylin
X
Scytosiphonaceae
Colpomenia sinuosa (Mertens ex Roth) Derbès et Solier
X
X
Sargassaceae
Sargassum furcatum Kützing
X
Sargassum hystrix J. Agardh
X
Sargassum platycarpum Montagne *
X
Sargassum pteropleuron Grunow
X
Sargassum sp. C. Agardh
X
Sporochnaceae
Sporochnus pedunculatus (Hudson) C. Agardh
X
Rhodophyta
Corallinaceae
Jania capillacea Harvey
X
Jania cubensis Montagne ex Kützing
X
Discusión
De acuerdo con los resultados, las algas rojas son el grupo taxonómico con mayor número de especies, su predominancia en ambientes insulares, costeros y lagunares tropicales es algo común, y ya reportado por varios autores para las costas de Yucatán (Dreckmann, 1998; Ortegón-Aznar y León-Tejera, 2022; Pedroche y Sentíes, 2020). A nivel de familia, los datos también son coincidentes con lo que existe en la literatura para la zona (Dreckmann, 1998; García-García et al., 2022; Mendoza-González et al., 2016; Ortega et al., 2001; Ortegón-Aznar y León-Tejera, 2022; Pedroche y Sentíes, 2020; Vilchis et al., 2018) y específicamente para ambientes insulares (González-Solis et al., 2018); Caulerpaceae, Halimedaceae, Dictyotaceae y Rhodomelaceae son las familias con mayor riqueza específica. En cuanto a las macroalgas que habitan los arrecifes, en Bajos de Diez y Serpientes se registraron más clorofitas, mientras que en Madagascar rodofitas. La predominancia de las algas verdes en los 2 primeros arrecifes probablemente puede estar correlacionado con el tipo de sustrato presente en ellos, ya que sus estructuras coralinas y rocosas segregadas promueven la existencia de fondos carbonatados y grandes llanuras arenosas, que son donde las algas verdes encuentran mejores condiciones para su desarrollo y distribución. En consecuencia, esto también explicaría el hecho de que Caulerpaceae y Halimedaceae son las familias con más representantes en estos arrecifes, al establecerse las especies de la primera preferentemente en suelos arcillo-arenosos, y en carbonatados las de la segunda, al ser fijadoras de calcio en su pared celular (Garduño-Solórzano et al., 2005).
La similitud florística entre los 3 arrecifes se encuentra por debajo de 15%, lo cual es bajo si se considera que forman parte del mismo sistema arrecifal y que la similitud entre localidades aumenta con la cercanía entre ellas (Nekola y White, 1999). Sin embargo, la ubicación geográfica e historia geológica tan compleja de la península de Yucatán ha dado lugar a una gran heterogeneidad de hábitats, lo que promueve una elevada riqueza de especies, muchas veces adaptadas a microambientes específicos y conlleva, a su vez, a diferencias notables en la composición biológica de localidades cercanas entre sí, además, es importante considerar que esta parte del territorio nacional es una zona de convergencia biótica, derivada también de su historia geológica (Vilchis et al., 2018). Ahora bien, haciendo una comparación florística, de manera general, entre los arrecifes analizados en este estudio y los ya explorados, es posible saber que de las 119 especies reportadas aquí, 9 son exclusivas del Sistema Arrecifal de Sisal, mientras que el resto ya se ha registrado en Arrecife Alacranes y Cayo Arenas.
Los nuevos registros que se incorporan a la ficoflora de Yucatán ya han sido reportados antes para el Atlántico. Cladophora prolifera y Ceratodictyon variabile son especies pantropicales presentes tanto en el Pacífico como en el Atlántico mexicano. Corynomorpha clavata, Dictyurus occidentalis, Gracilaria cuneata, Microdictyon marinum, Padina perindusiata y Udotea abbottiorum son macroalgas con afinidad a las aguas tropicales del mar Caribe, algunas llegando a introducirse en la región sur del golfo de México. De estas especies resaltan los casos de C. clavata y G. cuneata, la primera solo había sido reportada para el litoral de Campeche y Quintana Roo, lo que significa que este nuevo registro es también el primero para ambientes insulares mexicanos y Yucatán; G. cuneata, hasta antes de este trabajo solo formaba parte de la flora insular de Quintana Roo, ahora se sabe que extiende su área de distribución hasta arrecifes de Sisal. Por último, la presencia de Platoma gelatinosum en Yucatán refuerza el único reporte que hay en México, un ejemplar colectado en la costa de Campeche por Huerta-Múzquiz y Garza-Barrientos (1966), producto de una recolecta en arribazón y, por ende, su ubicación puntual no era conocida. Las diferentes afinidades biogeográficas que muestran los nuevos registros podrían estar evidenciando que los elementos insulares del Sistema Arrecifal Sisal son un mosaico compuesto de especies de diferente origen biótico, lo que sustentaría lo propuesto por Vilchis et al. (2018); sin embargo, sería importante realizar un estudio más detallado sobre el tema, considerando la distribución de todas las especies presentes en estos arrecifes.
Asparagopsis taxiformis fue la especie con mayor frecuencia relativa (material suplementario: S1), presente en 8 de las 10 estaciones, en listados florísticos previos no había sido reportada para el área de estudio; sin embargo, Ortegón-Aznar et al. (2008) señalaron que era una especie abundante en arrecife Madagascar. En general, A. taxiformis, así como las otras 7 especies con alta frecuencia relativa, son macroalgas que se encuentran típicamente en ambientes arrecifales, además de que algunas han sido consideradas como invasoras (Littler y Littler, 2000). Como ya se había mencionado con anterioridad, en la zona de transición biótica del Atlántico mexicano el conocimiento ficoflorístico que se tiene de ambientes insulares es escaso, centrado principalmente en Arrecife Alacranes y sus alrededores, y aunque la información se encuentre dispersa en artículos, catálogos, colecciones de herbario, monografías y proyectos de instituciones públicas, se sabe de manera general que de las 386 especies de macroalgas reportadas para la región, aproximadamente 243 se distribuyen en ambientes insulares (Ortegón-Aznar y León-Tejera, 2022); este número representa casi el doble de las 119 registradas en este trabajo, lo cual resulta coherente si se toma en cuenta que el área de los arrecifes de Sisal es considerablemente menor (~ 1 km2) a la de Arrecife Alacranes (~ 326 km2); evidenciando la relación especies-área, cuya premisa es que, a mayor tamaño de área de una isla, mayor será el número de especies que pueda albergar (MacArthur y Wilson, 1967). Dicha relación también se cumple entre los 3 arrecifes de Sisal: Bajos de Diez (78 spp. / 0.67 km2), Madagascar (53 spp. / 0.21 km2) y Serpientes (24 spp. / 0.17 km2); sin embargo, se debe considerar que el esfuerzo de muestreo no fue el mismo para los 3 arrecifes. En este sentido, también es importante resaltar que, aunque hasta antes de este trabajo solo se conocía la ficoflora insular de Arrecife Alacranes y sus alrededores, Yucatán ocupaba y sigue ocupando uno de los primeros lugares en la lista de los ambientes insulares más diversos del Atlántico mexicano, superado tan solo por Quintana Roo (García-García et al., 2020; González-Solis et al., 2018; Tapia-Silva et al., 2015; Vilchis et al., 2018). Los arrecifes contiguos del estado de Campeche, aunque en número son más los que se han estudiado, su diversidad máxima registrada es de 12 especies (González-Solis et al., 2018).
En la ficología, la publicación de los listados y composición florística sigue siendo muy relevante, sobre todo en un país como México, donde las exploraciones han sido discontinuas y sesgadas hacia ambientes costeros continentales, y donde existe una gran cantidad de elementos insulares aún sin explorar (Ortegón-Aznar y Aguilar-Perera, 2014; Robledo et al., 2003), así como especies reportadas una sola vez y en un solo sitio. La importancia de trabajos como el que se presenta aquí, no solo radica en proveer información fundamental para el conocimiento de la riqueza de especies y diversidad de estos ambientes, sino también que representan los datos primarios para otro tipo de trabajos de índole biológico como los taxonómicos, sistemáticos, biogeográficos y ecológicos, que en un futuro proporcionarán criterios para la protección y conservación de estos ecosistemas, cuyas poblaciones naturales son altamente vulnerables a las actividades antropogénicas principalmente relacionadas con el turismo, desastres naturales, cambios climáticos globales y a la introducción de especies exóticas, razones primordiales del deterioro de la biodiversidad, desaparición de especies, deterioro de hábitats, contaminación y sobreexplotación de especies comerciales o económicamente importantes.
Agradecimientos
El primer autor agradece al Consejo Nacional de Humanidades, Ciencias y Tecnologías por la beca otorgada a través del programa de Estancias Posdoctorales por México (CVU: 566380). Los autores agradecen el apoyo de los proyectos de investigación PAPIME-PE207210; Semarnat-Conacyt 108285, UNAM, México; y la Harte Charitable Foundation, a través de Harte Research Institute for the Gulf of Mexico Studies, Texas A&M University at Corpus Christi y la Comisión Nacional para el Conocimiento y Uso de la Biodiversidad (CONABIO-NE018). Así mismo, se agradece a Fernando Mex, Alfredo Gallardo, Quetzalli Hernández, Diana Ugalde, Efraín Chávez y, en especial, a Catarina Cucio por su ayuda en el trabajo de campo.
Referencias
Carranza-Ramírez, A., Calva-Benítez, L. G. y Núñez-Resendiz, M. L. (2023). Taxonomic composition and substrate affinity of conspicuous marine macroalgae of the Parque Nacional Arrecifes de Cozumel, Quintana Roo, México. Acta Botanica Mexicana, 130, e2249. https://doi.org/10.21829/abm130.2023.2249
Dawes, C. J. y Mathieson, A. C. (2008). The seaweed of Florida. Florida: University Press of Florida.
Dreckmann, K. M. (1998). Clasificación y nomenclatura de las macroalgas marinas bentónicas del Atlántico mexicano. Ciudad de México: Comisión Nacional para el Conocimiento y Uso de la Biodiversidad.
García-García, A. M. E., Cabrera-Becerril, E., Núñez-Resendiz, M. L., Dreckmann, K. M. y Sentíes, A. (2020). Actualización taxonómica de las algas rojas (Rhodophyta) marinas bentónicas del Atlántico mexicano. Acta Botanica Mexicana, 127, e1677. https://doi.org/10.21829/abm127.2020.1677
García-García, A. M. E., Cabrera-Becerril, E., Núñez-Resendiz, M. L., Dreckmann, K. M. y Sentíes, A. (2021). Actualización taxonómica de las algas pardas (Phaeophyceae, Pchrophyta) marinas bentónicas del Atlántico mexicano. Acta Botanica Mexicana, 128, e1968. https://doi.org/10.21829/abm128.2021. 1968
Garduño-Solórzano, G., Godínez, J. L. y Ortega, M. M. (2005). Distribución geográfica y afinidad por el sustrato de las algas verdes (Chlorophyceae) bénticas de las costas mexicanas del Golfo de México y Mar Caribe. Boletín de la Sociedad Botánica de México, 76, 61–78. https://doi.org/ 10.17129/botsci.1705
González-Solis, A., Torruco, D. y Torruco-González, A. D. (2018). Biodiversidad de macroalgas en arrecifes coralinos de la Sonda de Campeche, el Caribe Mexicano y Belice. Gayana Botanica, 75, 501–511. https://doi.org/10.4067/S0717-66432018000100501
Guiry, M. D. y Guiry, G. M. (2024). AlgaeBase. World-wide electronic publication, National University of Ireland, Galway. Recuperado el 15 de enero, 2024 de: https://www.algaebase.org/
Hammer, Q., Harper, D. A. T. y Ryan, P. D. (2001). PAST: Paleontological statistics software package for education and data analysis. Palaeontology Electronic, 4, 1–9.
INEGI (Instituto Nacional de Estadística y Geografía). (2015). Catálogo del territorio insular mexicano. Ciudad de México: Instituto Nacional de Estadística y Geografía.
Huerta-Múzquiz, L. y Garza-Barrientos, A. M. (1966). Algas marinas del litoral del estado de Campeche. Ciencia, 24, 193–200.
Littler, D. S. y Littler, M. M. (2000). Caribbean reef plants. An identification guide to the reef plants of the Caribbean, Bahamas, Florida and Gulf of Mexico. Washington, D.C.: OffShore Graphics.
MacArthur, R. H. y Wilson, E. O. (1967). The theory of island biogeography. Monographs in population. New Jersey: Princeton University Press.
Mendoza-González, A. C., Mateo-Cid, L. E., Acosta-Calderón, J. A., Vázquez-Rodríguez, A., Hernández-Casas, C. M. y Garduño-Acosta, G. A. (2016). Marine seaweeds of the Yucatán Peninsula: diversity, economic importance and conservation. En R. Riosmena-Rodríguez (Ed.), Marine benthos: biology, ecosystem functions and environmental impact (pp. 39–80). New York: Nova Science Publishers, Inc.
Núñez-Resendiz, M. L., Sentíes, A., Dreckmann, K. M. y León-Tejera, H. (2017). Biodiversidad de Solieriaceae (Gigartinales, Rhodophyta) en México. Cymbella, 3, 21–31.
Ortega, M. M., Godínez, J. L. y Garduño-Solórzano, G. (2001). Catálogo de algas bénticas de las costas mexicanas del golfo de México y mar Caribe. Ciudad de México: Instituto de Biología, Universidad Nacional Autónoma de México.
Ortegón-Aznar, I. y Aguilar-Perera, A. (2014). Distribución de macroalgas en áreas naturales protegidas de la costa norte de la península de Yucatán, México. Revista de Investigaciones Marinas, 34, 1–12.
Ortegón-Aznar, I., León-Tejera, M., Gold-Morgan, M. y Ramírez-Miss, N. (2008). Preliminary results in marine algae of Madagascar reef, Yucatán, México: a functional group approach. Proceedings of the 11th International Coral Reef Symposium, Ft. Lauderdale, Florida, 7-11 July 2008.
Pedroche, F. y Sentíes, A. (2020). Diversidad de macroalgas marinas en México. Una actualización florística y nomenclatural. Cymbella, 6, 4–55.
Robledo, D., Freile-Peregrín, Y. y Sánchez-Rodríguez. I. (2003). Marine benthic algae from the Campeche Banks, México. Proceedings of the XVII International Seaweed Symposium, Cape Town, South Africa. Oxford University Press, Oxford.
Tapia-Silva, F. O., Hernández, O. E., Vilchis, M. I., Sentíes, A. y Dreckmann, K. M. (2015). Mapping of algae richness using spatial data interpolation. The International Archives Photogrammetry, Remote Sensing and Spatial Information Sciences, 40, 1005–1008. https://doi.org/10.5194/isprsarchi ves-XL-7-W3-1005-2015
Taylor, W. R. (1960). Marine algae of the eastern Tropical and Subtropical coasts of the Americas. Ann Arbor: University of Michigan Press.
Vilchis, M. I., Dreckmann, K. M., García-Trejo, E. A., Hernández, O. E. y Sentíes, A. (2018). Patrones de distribución de las grandes macroalgas en el golfo de México y el Caribe mexicano: una contribución a la biología de la conservación. Revista Mexicana de Biodiversidad, 89, 183–192. https://doi.org/10.22201/ib.20078706e.2018.1.2226
Whittaker, R. J. y Fernández-Palacios, J. M. (2007). Biogeo- graphy: Ecology, evolution, and conservation. Nueva York: Oxford University Press.
Winfield, I., Muciño-Reyes, M., Cházaro-Olvera, S., Ortiz, M. y Lozano-Aburto, M. (2020). Anfípodos bentónicos (Crustacea: Peracarida) del Sistema Arrecifal Sisal y línea de costa, noroeste de la península de Yucatán, Golfo de México. Revista Mexicana de Biodiversidad, 91, e903071. https://doi.org/10.22201/ib.20078706e.2020.91.3071
Wynne, M. J. (2022). A checklist of benthic marine algae of the tropical and subtropical Western Atlantic: fifth revision. Nova Hedwigia Beiheft, 159, 1–80.
Zarco-Perelló, S. M. y Simões, N. (2017). High resolution spatial interpolation of a coral reef sessile community: inverse distance weighting vs ordinary Kriging. PeerJ, 5, e4078. https://doi.org/10.7717/peerj.4078
Zarco-Perelló, S., Mascaró, M., Garza-Pérez, R. y Simões, N. (2013). Topography and coral community of the Sisal reefs, Campeche Bank, Yucatán, México. Hidrobiológica, 23, 28–41
Santiago Zaragoza-Caballero a, Sara López-Pérez b, *, Mireya González-Ramírez a, Geovanni M. Rodríguez-Mirón b, Viridiana Vega-Badillo c, Ishwari G. Gutiérrez-Carranza a, Daniel E. Domínguez-León a, Paulina Cifuentes-Ruiz a, Miriam Aquino-Romero a y Oscar Pérez-Flores d
a Universidad Nacional Autónoma de México, Instituto de Biología, Departamento de Zoología, Apartado postal 70-153, 04510 Ciudad de México, México
b Universidad Nacional Autónoma de México, Facultad de Estudios Superiores Zaragoza, Museo de Zoología, Colección Coleopterológica, Av. Batalla del 5 de mayo s/n, Ejército de Oriente, 09230 Ciudad de México, México
c Instituto de Ecología A.C., Colección Entomológica IEXA “Dr. Miguel Ángel Morón Ríos”, Instituto de Ecología A.C., Carretera Antigua a Coatepec Núm. 351, El Haya, 91073 Xalapa, Veracruz, México
d Universidad Nacional Autónoma de México, Escuela Nacional de Estudios Superiores Unidad Morelia, Laboratorio Nacional de Análisis y Síntesis Ecológica, Antigua Carretera a Pátzcuaro Núm. 8701, 58190 Morelia, Michoacán, México
*Autor para correspondencia: slopez.p@hotmail.com (S. López-Pérez)
Recibido: 11 abril 2024; aceptado: 05 agosto 2024
Resumen
Se presenta información de las luciérnagas presentes en Tamaulipas, Veracruz, Tabasco, Campeche, Yucatán y Quintana Roo, México, región que se denominó golfo-Caribe. Se provee la diagnosis de las especies presentes en esta región y que no se presentan en trabajos previos, así como una clave taxonómica a subfamilia, tribu y género. Se describe una especie nueva del género Magnoculus McDermott y 15 nuevas del género Photinus Laporte, con lo cual el número de especies de luciérnagas en México aumenta a 301. Para las especies nuevas se ilustran los hábitos dorsales y ventrales, así como los genitales de los machos. Para las especies ya descritas y que no se han abordado en trabajos anteriores, se muestran fotografías de los hábitos dorsales y ventrales. Asimismo, se presentan registros nuevos estatales para Photinus anagabrielae Zaragoza-Caballero y Gutiérrez-Carranza y P. hymenodrilus Zaragoza-Caballero y Gutiérrez-Carranza. Adicionalmente, se proponen los siguientes cambios nomenclaturales: Photinus albolimbatus Gemminger, 1870 comb. rest. = P. ivanovitschi Zaragoza-Caballero, Zurita-García y Ramírez-Ponce, 2023, syn. nov.
Fireflies of the Gulf-Caribbean region of Mexico and description of 16 new species
Abstract
The fireflies occurring in Tamaulipas, Veracruz, Tabasco, Campeche, Yucatán, and Quintana Roo, Mexico are documented, which is designated Gulf-Caribbean region. The diagnoses of the species that occur in this region, and not presented in previous works, are provided, as well as a taxonomic key for subfamilies, tribes, and genera. A new species of Magnoculus McDermott and 15 new species of Photinus Laporte are described, increasing the number of firefly species in Mexico to 301. The dorsal and ventral views and the male genitalia of the new species are illustrated. For the species already described, but not addressed in previous works, photographs of their dorsal and ventral habitus are shown. New state records for Photinus anagabrielae Zaragoza-Caballero and Gutiérrez-Carranza, and P. hymenodrilus Zaragoza-Caballero and Gutiérrez-Carranza are provided. In addition, the following nomenclatural changes are proposed: Photinus albolimbatus Gemminger, 1870, comb. rest. = P. ivanovitschi Zaragoza-Caballero, Zurita-García y Ramírez-Ponce, 2023, syn. nov.
Keywords: Amydetinae; Coleoptera; Lampyridae; Magnoculus; New records; Veracruz
Introducción
En el mundo se conocen cerca de 2,500 especies de luciérnagas que ocupan una variedad de hábitats y su distribución no es limitada a áreas específicas (Martin et al., 2019; Zaragoza-Caballero et al., 2020). En México se encuentra más de 10% de las luciérnagas y se estima que pueden existir alrededor de 367 especies (Zaragoza-Caballero et al., 2022). En los últimos años se han descrito cerca de 100 especies distribuidas en las zonas centro y norte-occidente del país (Zaragoza-Caballero et al., 2020; Zaragoza-Caballero, López-Pérez et al., 2023), lo cual coloca a México como el segundo país de mayor riqueza de luciérnagas. Las últimas descripciones de nuevas luciérnagas forman parte del proyecto “Luciérnagas de México”, que se lleva a cabo con los objetivos de combatir los déficits linneano y wallaceano, y de contribuir al conocimiento de la taxonomía de estos insectos (Hortal et al., 2015). Durante los últimos estudios realizados, se han descrito mayoritariamente especies del género Photinus Laporte,lo que sugiere a México como su centro de diversificación debido a eventos geológicos y paleoclimáticos, que han ocurrido a lo largo de muchos años (Zaragoza-Caballero et al., 2023).
Los estados del país que colindan con el golfo de México se encuentran entre los más diversos del planeta, pues presentan una variedad de ambientes costeros templados, subtropicales y tropicales (Toledo, 2005). Estos estados son Tamaulipas, Veracruz, Tabasco y Campeche; Yucatán y Quintana Roo también colindan con el golfo, asimismo son parte del mar Caribe. En la zona golfo-Caribe existen pocos trabajos relacionados con las luciérnagas, el trabajo de Zaragoza-Caballero (1995) proporciona información relacionada con las luciérnagas que se encuentran en Los Tuxtlas, Veracruz. Con excepción de este trabajo, no se ha registrado algún otro en la zona golfo-Caribe. En el presente estudio se describen 16 especies nuevas de luciérnagas para los estados mencionados, se ilustran hábitos dorsales y ventrales, así como las distintas vistas de los edeagos. Además, se presenta una clave taxonómica para la separación de géneros.
Materiales y métodos
Este estudio se limita a las especies distribuidas en Tamaulipas, Veracruz, Tabasco, Campeche, Yucatán y Quintana Roo, que forman la región golfo-Caribe (fig. 1). Las nuevas especies se reconocieron a partir del estudio morfológico de 36 ejemplares machos depositados en la Colección Nacional de Insectos (CNIN) del Instituto de Biología, UNAM, igual que el resto de los ejemplares pertenecientes a las especies ya descritas. Todos los ejemplares quedaron depositados en la CNIN.
Para las especies previamente registradas en la región y que no aparecen en la publicación de Zaragoza-Caballero et al. (2020) y Zaragoza-Caballero, López-Pérez et al. (2023), se ilustra el hábito en vista dorsal y ventral, asimismo se muestra un ejemplo de los genitales masculinos para aquellos géneros que se encuentran en la región y que tampoco aparecen en los trabajos antes mencionados. De las especies ya antes registradas en la región: Amydetesfastigiata Illiger, 1807, Aspisoma lepidum (Gorham, 1881), A. yucatanum Olivier, 1908, Bicellonycha facialis (Gorham, 1881), Cratomorphus leoneli Lima et al. 2021, Lucidota diaphanura Gorham, 1881, Phaenolismexicana McDermott, 1958, Photinoidesbidenticauda (McDermott, 1958), Photuristrivittata Lloyd y Ballantyne, 2003, Photinus affinis Gorham, 1880, P. albicauda Gorham, 1881, P. ampliatus Olivier, 1907, P. cordovae Gorham, 1881, P. parvulus Gorham, 1881, Pyractomenastriatella Gorham, 1880, P. vexillaria Gorham, 1881 y Vestathoracica (Olivier, 1790), no se ilustran en fotografías debido a la falta de material; las diagnosis y datos de éstas se recuperaron de las descripciones originales. Para las especies nuevasse ilustra su hábito dorsal y ventral, así como los genitales masculinos. Para la revisión de los ejemplares, la separación del edeago en machos y la toma de medidas se utilizó un microscopio estereoscopio Carl Zeiss™ Discovery V8; las medidas se expresan en mm. Todas las especies de Photinus fueron medidas en el largo y ancho total (LT, AT), largo y ancho del pronoto (LP, AP), largo y ancho de los élitros (LE, AE), largo de las antenas (LA), distancia interocular (DI), distancia interantenal (DIA) y largo y ancho del ojo (LO, AO). Asimismo, se obtuvieron las proporciones largo y ancho de los élitros (LE/AE) y largo de los élitros y largo del pronoto (LE/LP). Los datos anteriores permiten establecer las categorías: chica, corta, mediana, larga y grande en las especies (Zaragoza-Caballero, López-Pérez et al., 2023).
Figura 1. Región golfo-Caribe de México, número de especies previas en la región de acuerdo con Pérez-Hernández et al. (2022).
La información del resumen taxonómico se estandarizó mostrando primero el estado donde se registra la especie, la localidad y posteriormente la fecha; la información restante se presenta de acuerdo con la etiqueta. Para separar información de distintas etiquetas se utilizó “|”. Las fotografías digitales se tomaron en el Laboratorio de Microscopía y Fotografía de la Biodiversidad del Instituto de Biología de la Universidad Nacional Autónoma de México (UNAM), con un microscopio estereoscópico Carl Zeiss™ Axio Zoom V16, equipado con una cámara Zeiss Axiocam MRc5 y con el software ZEN™ = Zeiss Efficient Navigation pro-2012. Las diagnosis de los géneros y especies, así como la distribución, se estructuraron a partir de las descripciones originales y otras fuentes como Gorham (1880a, b, 1881, 1884), Illiger (1807), Laporte (1833), Lima et al. (2021), McDermott (1963, 1964, 1966), Zaragoza-Caballero (1989, 1993, 1995, 1996), Pérez-Hernández et al. (2022), Zaragoza-Caballero et al. (2020), y Zaragoza-Caballero, López-Pérez et al. (2023). Para las distribuciones también se utilizaron ejemplares depositados en la CNIN. Se agrega un asterisco a los géneros y especies que han sido comentados anteriormente en Zaragoza-Caballero et al. (2020) y Zaragoza-Caballero, López-Pérez et al. (2023). El arreglo de los géneros obedece al orden de aparición en la clave para la separación de subfamilias, tribus y géneros, las especies aparecen en orden alfabético. A todos los ejemplares de las especies nuevas se les extrajo el aparato reproductor masculino, siguiendo el protocolo de Gutiérrez-Carranza (2023).
Resultados
Previo a este trabajo, en la región golfo-Caribe de México se tenía el registro de 3 subfamilias, 16 géneros y 90 especies, con esta contribución se adicionan 2 registros estatales nuevos de especies y 16 especies nuevas, por lo que la riqueza de luciérnagas de la región aumentó a 108 (fig. 1, apéndice) y el total de especies mexicanas a 301 (apéndice). El total de las especies presentes en la región representa 30% de las especies de luciérnagas del país. Además, se aportan nuevos registros estatales para Photinus anagabrielae y P. hymenodrilus.
Clave para las subfamilias, tribus y géneros de Lampyridae de la región golfo-Caribe de México
1. Cabeza parcialmente cubierta por el pronoto; clípeo generalmente indistinto, soldado a la frente; sutura frontoclipeal apenas marcada; mandíbulas falcadas 2
1’. Cabeza totalmente cubierta por el pronoto; clípeo bien diferenciado, libre o soldado a la frente; sutura frontoclipeal generalmente membranosa; mandíbulas falcadas o modificadas; con o sin aparato luminoso……………………………………………………………………………………….Lampyrinae 6
2(1). Cabeza horizontal cuando está retraída; mandíbulas sin sedas basales; fositas tentoriales visibles; suturas gulares paralelas o fusionadas; ojos separados; último palpómero labial acuminado; antenas bi o uni-ramosas, con 11 o más antenómeros; pronoto con o sin tubérculos: con o sin aparato luminoso; patas cortas; uñas simples……………………………………………………………………………………….Amydetinae 3
2’. Cabeza vertical cuando está retraída; mandíbulas con sedas basales; fositas tentoriales no visibles; suturas gulares divergentes; ojos juntos o separados; último palpómero labial generalmente triangular; antenas filiformes, de 11 antenómeros; pronoto sin gibas; con o sin aparato luminoso; patas largas; uñas simples o modifica- das……………………………………………………………………………………….Photurninae 5
3(2). Antenas largas o cortas con 11 o más antenómeros, uni-ramosas, ramas antenales cortas o largas; ojos grandes o reducidos, separados…………………………………………………………Amydetini 4
3’. Antenas largas con 11 antenómeros, sobrepasando la mitad del cuerpo, ramas antenales cortas y rectas; ojos grandes, no contiguos; mandíbulas largas, fuertemente falcadas; base del pronoto emarginado, ángulos posteriores agudos; segmentos abdominales prominentemente angulados………Vestini Vesta Laporte
4(3). Antenas con 11 antenómeros, ramas antenales largas en abanico; ojos reducidos; pronoto con 2 gibas (tubérculos); órgano luminoso ocupando casi toda el área de los esternitos 6° y 7° Magnoculus McDermott
4’. Antenas con al menos 23 antenómeros; ramas antenales largas en abanico; ojos grandes; pronoto semilunar, sin tubérculos; órgano luminoso ocupando desde 1/2 de longitud y anchura hasta totalidad del área de esternitos 6° y 7° Amydetes Hoffmannsegg
5(2’). Uñas internas y externas bífidas en los machos, simples en las hembras; aparato luminoso presente o ausente, en machos ocupa esternitos 5° y 6°, en hembras la parte media del 5º; edeago con lóbulos laterales casi libres en base dorsal *Bicellonycha Motschulsky
5’. Solo las uñas externas divididas tanto en machos como hembras; aparato luminoso presente, en machos ocupa esternitos 5° y 6° y en hembras el esternito 5°; edeago con lóbulos laterales largos y dorsalmente separados, con 2 largos procesos laterales *Photuris Dejean
6(1). Cuerpo generalmente paralelo; antenas filiformes o serradas y comprimidas; clípeo libre, membranoso; mandíbulas falcadas, expuestas; órganos luminosos generalmente presentes; hembras en ocasiones braquípteras o áp- teras…………………………………………………………………………………….Photinini 13
6’. Cuerpo generalmente ancho, escutiforme; antenas de forma variada; clípeo indistinto; mandíbulas modificadas, con base cónica, expuestas o no, ápice reducido a dentículo desnudo y agudo; hembras aladas; con o sin aparato luminoso 7
7(6). Tarsos anchos, 4° tarsómero largo, sobrepasando mitad del 5°; hembras con o sin aparato luminoso 9
7’. Tarsos angostos, 4° tarsómero corto, alcanzando casi mitad del 5°; hembras sin aparato luminoso…………………….. …………………………………………………………………………………………..Pleotomini 8
8(7’). Antenas cortas de 13 o 14 antenómeros, del 3-12 ó 13 birrámicas, ramas antenales cortas y lanceoladas; ojos muy grandes; último esternito con borde posterior mucronado *Pleotomus LeConte
8’. Antenas cortas de 11 antenómeros, del 3-10 birrámicas, ramas antenales largas y angostas; ojos reducidos; último esternito dividido en 2 proyecciones apicalmente redondeadas; machos con 2 pequeñas manchas luminosas Phaenolis Gorham
9(7). Cuerpo de forma diversa; ojos grandes cercanos; antenas filiformes, longitud variable; espiráculos abdominales dorsales; hembras con aparato luminoso………………………….Cratomorphini 10
10’. Pronoto con manchas translúcidas; antenas cortas, no rebasando lo largo del pronoto, filiformes; ojos muy grandes, contiguos, ocupando casi toda la cabeza; vertex profundamente excavado *Cratomorphus Motschulsky
11(10). Cuerpo alargado, casi paralelo; pronoto ojival, con o sin quilla longitudinal 12
11’. Cuerpo escutiforme; pronoto trapezoidal; antenas cortas filiformes; ojos grandes, separados; élitros con epipleura ancha, sin costillas; aparato luminoso en machos ocupa toda la superficie de esternitos 5° y 6°, reducido en hembras.. *Aspisoma Laporte
12(11). Pronoto alargado, ojival, paralelo en mitad basal, con quilla longitudinal; aparato luminoso en machos ocupa esternitos 5° y 6°, en hembras reducido *Pyractomena (LeConte)
12’. Pronoto corto, sin quilla; aparato luminoso en machos ocupa esternitos 5° y 6°, en hembras reducidas a par de manchas sobre los mismos segmentos *Aspisomoides Zaragoza-Caballero
13(6). Cuerpo hasta de 12 mm, largo, casi paralelo; ojos grandes o reducidos; pronoto semicircular; élitros con un tipo de pubescencia; con o sin aparato luminoso; edeago sin excrecencias dorso-basales 14
13’. Cuerpo de talla y forma variable, ancho, escutiforme o largo y casi paralelo; ojos de tamaño variable; pronoto semielíptico u ojival; élitros con 2 tipos de pubescencia; con o sin aparato luminoso presente; edeago con o sin excrecencias dorso-basales *Photinus Laporte
14’Sin aparato luminoso; clípeo parcialmente visible, sutura frontoclipeal incompleta; 4° metatarsómero bilobulado; esternitos no superpuestos, séptimo del macho tan largo como precedente no mucronado; lóbulo medio del edeago comprimido, cubierto por lóbulos laterales, éstos ventralmente soldados *Pyropyga Motschulsky
15(14). Ojos grandes; sutura frontoclipeal membranosa, clípeo libremente articulado; aparato luminoso presente en machos ocupa esternitos 5° y 6°, y en hembras el 5º; séptimo esternito alargado; lóbulos laterales del edeago soldados basalmente *Photinoides McDermott
15’ Ojos reducidos; sutura frontoclipeal indistinta, clípeo soldado a frente; aparato luminoso reducido o ausente; esternitos foliados, séptimo del macho mucronado; lóbulo medio del aparato reproductor cubierto por lóbulos laterales, éstos con proyección terminal *Lucidota Laporte
Macho: cuerpo alargado, subparalelo, sin aparato luminoso; pronoto ojival, con ángulos posteriores prominentes, borde posterior ligeramente emarginado; élitros alargados, con costillas. Cabeza: parcialmente cubierta por pronoto; espacio interocular plano, frente amplia; antenas contiguas, alcanzando mitad de cuerpo, unirramosas, con 11 antenómeros, del 3 al 10 con ramas cortas y anchas, el último lameliforme; ojos ligeramente grandes, enteros, dorsal y ventralmente separados; clípeo soldado a frente, sutura frontoclipeal indistinta; mandíbulas largas, falcadas, dirigidas hacia delante, expuestas; último palpómero maxilar robusto, ovoide; palpómero labial securiforme. Tórax: pronoto ampliamente explanado a los lados; eplipleura angosta; patas medianamente robustas, primer metatarsómero tan largo como 2 siguientes juntos, cuarto mediano, bífido, cubriendo parcialmente al quinto; uñas simples.Abdomen: con 7 esternitos visibles, imbricados, terguitos con ángulos posteriores agudos, pigidio con borde posterior cóncavo; último esternito mucronado, edeago largo, lóbulos laterales soldados dorso-basalmente, casi triangulares, con proyección filiforme, lóbulo medio alargado, rebasando a lóbulos laterales, orificio medio casi terminal. Hembras con último esternito triangular y hendido.
Vesta thoracica (Olivier, 1790)
Lampyris thoracica Olivier, 1790: 81
Cuerpo oscuro; antenas oscuras, comprimidas, un poco más cortas que pronoto; pronoto amarillo, sin manchas; élitros oscuros; edeago similar al de Lucidota, que tiene larga proyección en lóbulos laterales.
Distribución: México: Veracruz. Martin et al. (2019) ubican al género en incertae sedis.
Magnoculus McDermott, 1964
Especie tipo: Megalophthalmus benneti Gray, 1832: 371
Macho: cuerpo alargado, paralelo; con 1-2 esternitos luminosos; pronoto transverso, con 2 gibas, ángulos posteriores prominentes, borde posterior bisinuado; élitros alargados, con costillas muy evidentes. Cabeza: parcialmente cubierta por pronoto; espacio interocular plano, frente amplia; antenas separadas, cortas, unirramosas, con 11 antenómeros, primero largo, del 3 al 10 casi 2 tercios del primero, con ramas lameladas largas y anchas 6 veces tan largas como antenómero correspondiente; ojos reducidos, enteros, dorsal y ventralmente separados; sutura frontoclipeal indistinta; clípeo transversal; mandíbulas largas, fuertemente curvadas, dirigidas hacia adelante, expuestas; último palpómero maxilar y labial robustos, ojivales. Tórax: pronoto ampliamente explanado a los lados; eplipleura angosta; patas cortas, no comprimidas, primer metatarsómero más o menos semejante a 2 siguientes juntos, cuarto reducido, no cubriendo al quinto; uñas simples.Abdomen: con 7 esternitos visibles, imbricados, ángulos posteriores agudos, pigidio trilobulado; último esternito mucronado; edeago con lóbulos laterales un tanto bifurcados, lóbulo medio curvado y apicalmente ensanchado. Hembras desconocidas.
Magnoculus tlaloque Zaragoza-Caballero y Gutiérrez-Carranza, sp. nov.
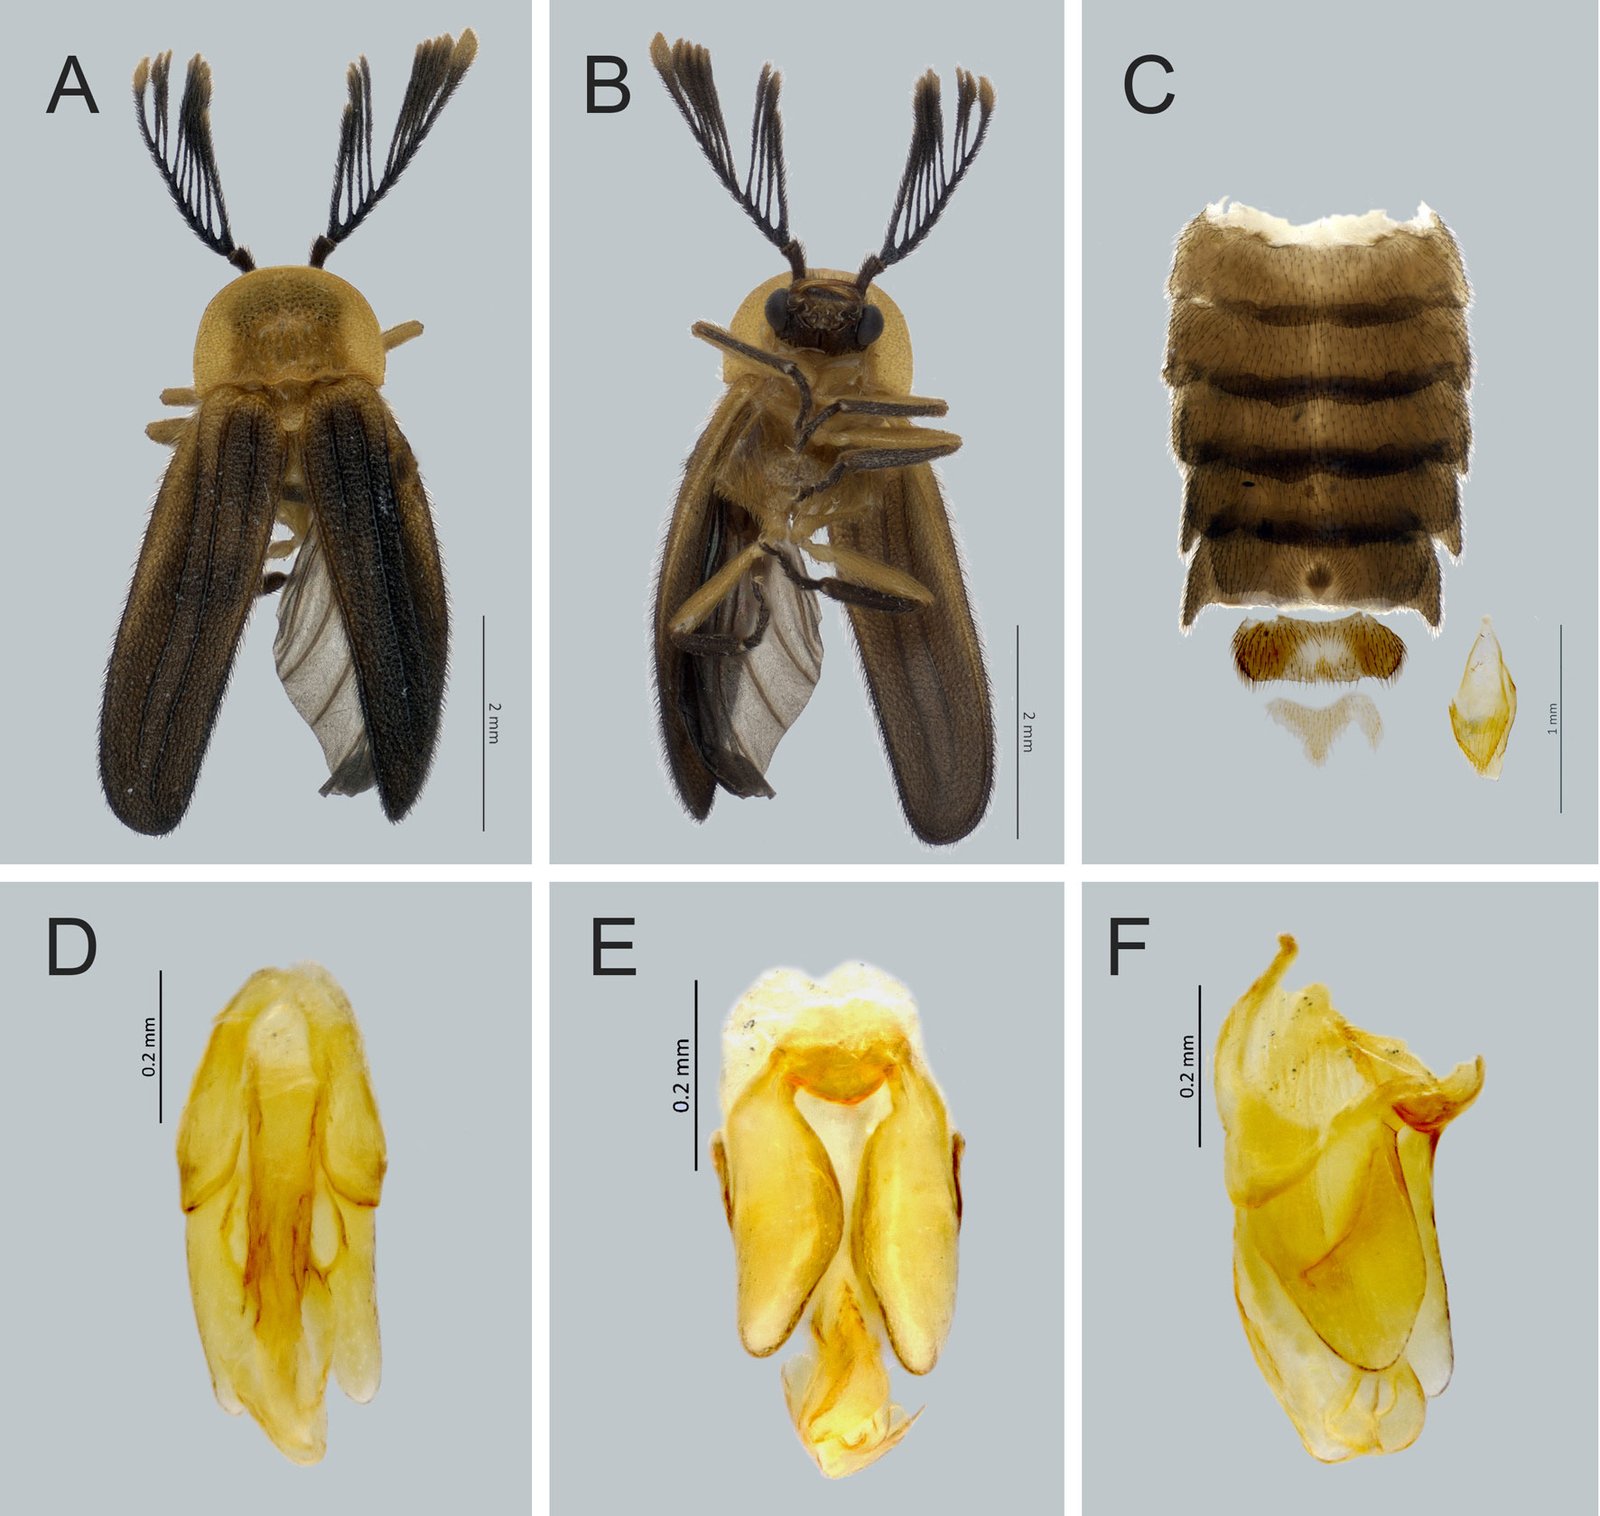
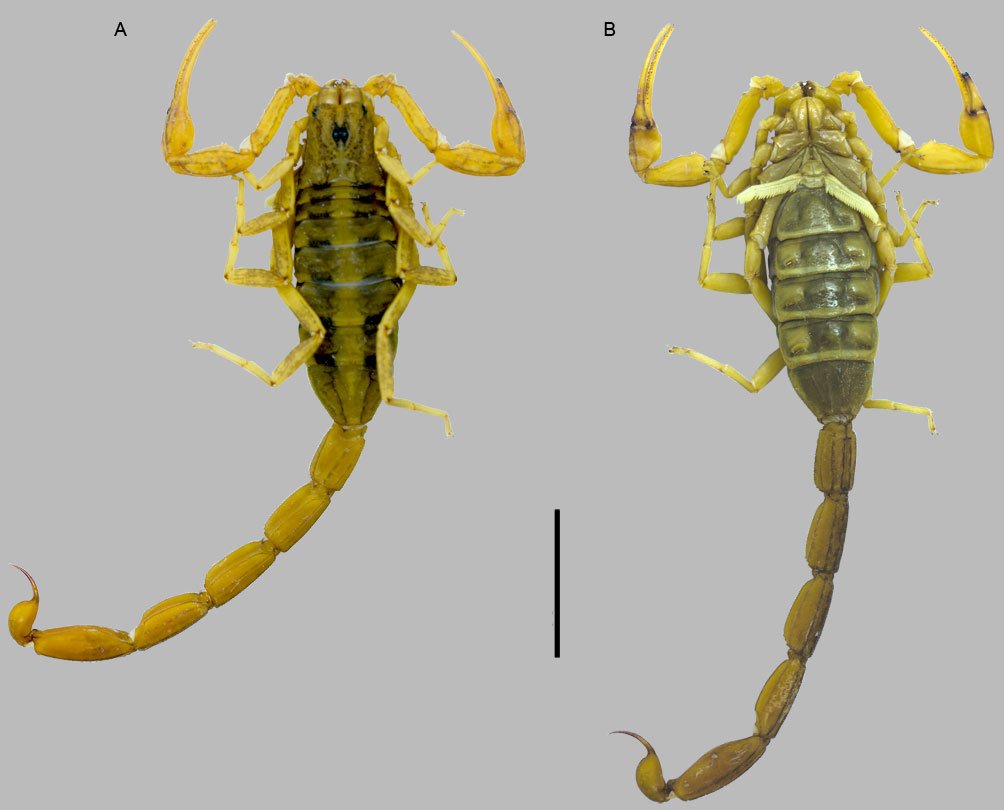
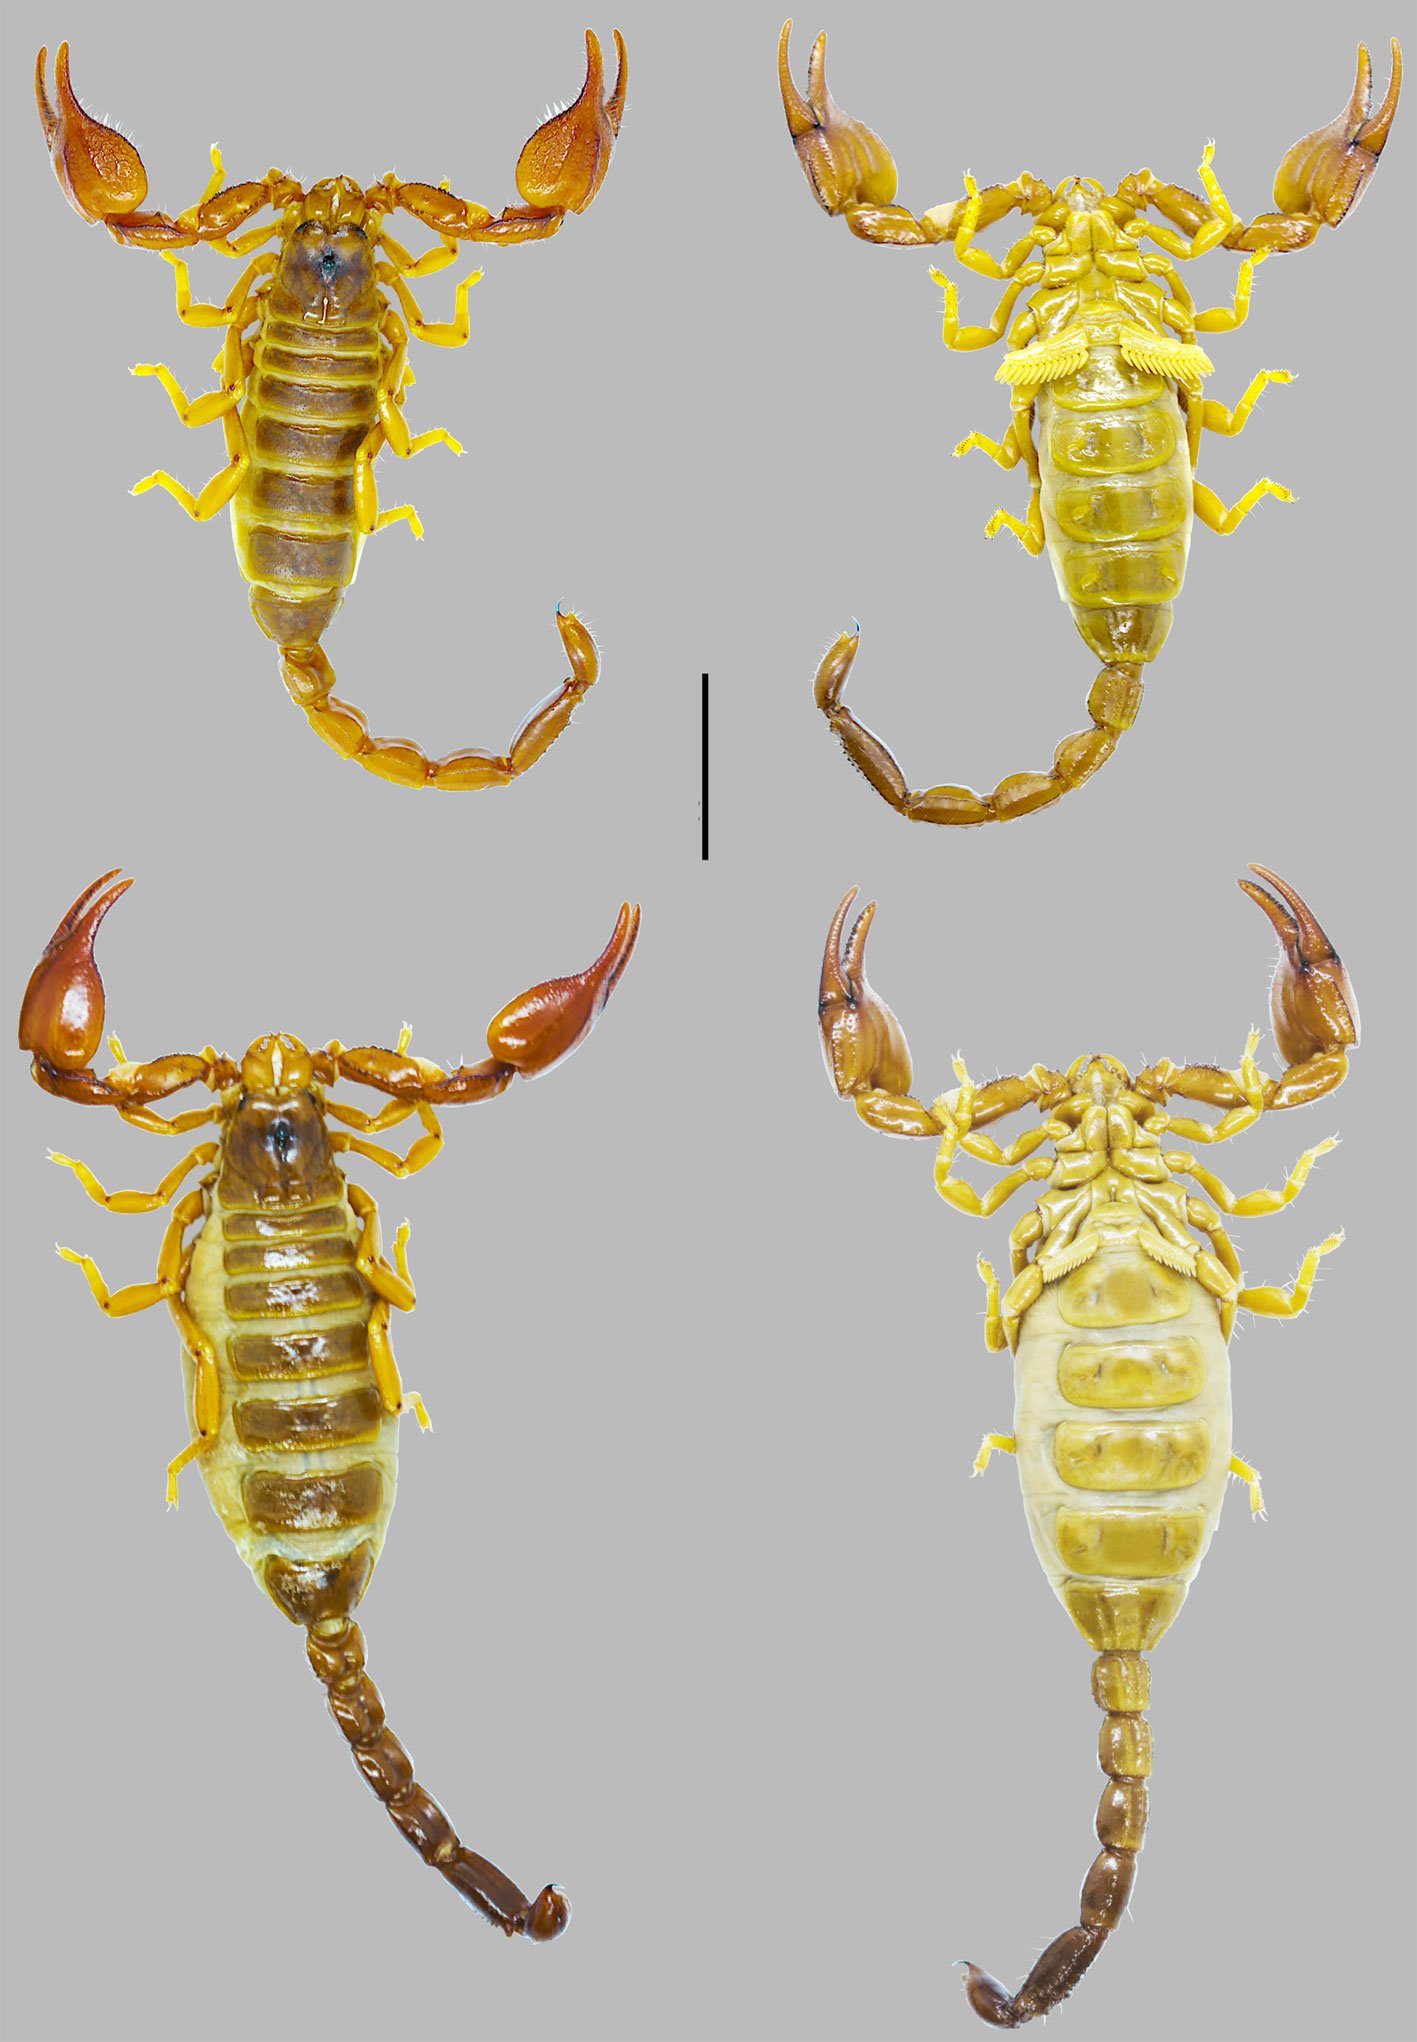
Macho. Talla: largo 5.6 mm, ancho 2.2 mm. Color castaño oscuro a excepción del ápice de lamelas de antenómeros 3-11, pronoto, escutelo, margen humeral y primer tercio de márgenes laterales de élitros, coxas, trocánteres y fémures amarillos; metepisterno y metasterno castaño ámbar; mandíbulas y uñas ambarinas; esternito 7 blanco cremoso. Sin aparato luminoso, con una mácula lútea en el esternito 6. Cabeza: espacio interocular (0.78 mm) cóncavo, integumento brillante, punteado y espaciadamente piloso; frente oblicua; ojos finamente facetados, reducidos, ovoides, en vista lateral más largos (0.42 mm) que anchos (0.32 mm); distancia interantenal (0.42 mm) 3 veces lo ancho de fosita antenal (0.14 mm); antenas uniflabeladas y largas (2.7 mm), cerca de 3 veces más largas que pronoto (1.05 mm), sobrepasa coxas posteriores, escapo claviforme, casi 2 veces más largo (0.36 mm) que 2 antenitos anteriores juntos (0.2 mm), segundo muy corto (0.04 mm), tercero más largo que siguientes (0.16 mm), cuarto y quinto de 0.12 mm, sexto al décimo de 0.1 mm y undécimo de 1.4 mm, apicalmente ensanchado, tercero a décimo con una lamela apicalmente ensanchada, longitud similar al undécimo antenómero [longitud de las lamelas: 1a = 1.2 mm, 2a = 1.56 mm, 3a-5a = 1.6 mm, 6a = 1.5 mm, 7a = 1.4 mm y 8a = 1.36 mm]; sutura frontoclipeal indistinta; clípeo soldado a la frente con borde distal convexo y cuspidado en medio, superficie glabra escasamente punteada, bordes con sedas largas; labro membranoso, triangular; mandíbulas falcadas, esbeltas, angularmente arqueadas, con sedas en su base externa; palpos maxilares con 4 palpómeros; palpos labiales con 3, palpómeros apicales fusiformes; presenta sutura gular y una fosita tentorial. Tórax: pronoto semicircular, más ancho (1.75 mm) que largo (1.05 mm), borde posterior bisinuado, ángulos posteriores agudos, disco quillado, bituberculado, explanaciones laterales anchas y acanaladas; márgenes con poros glandulares, más abundantes en la región anterior, superficie brillante con pilosidad abundante y decumbente; escutelo espatulado con borde posterior redondeado, superficie plana, brillante, gruesamente punteada y con pilosidad escasa y decumbente; élitros ligeramente aovados, dehiscentes, 4 veces más largos (4.55 mm) que anchos (1.1 mm), presentan 3 costillas, costilla cercana a sutura alcanza ½ de la longitud de los élitros, las 2 externas se extienden y se unen en la parte posterior, integumento rugosamente punteado, brillante y piloso, con pilosidad decumbente, epipleura reducida y gradualmente disminuye al ápice; espiráculos respiratorios mesotorácicos no tubulares, orbiculares, poco esclerosados y con su base proyectada transversalmente; patas cortas y esbeltas, semejantes entre sí pero sucesivamente más largas: longitud de profémures de 1.1 mm y protibias de 1.04 mm, mesofémures de 1.2 mm y mesotibias de 1.1 mm, metafémures de 1.26 mm y metatibias de 1.2 mm, fémures fusiformes, lateralmente aplanados, tibias aplanadas, no acanaladas, rectas, con borde externo crenulado y margen apical redondeado, sin espinas tibiales, tarsómeros lateralmente comprimidos, primer metatarsómero más largo (0.34 mm) que 2 siguientes juntos (0.21 + 0.08 mm), cuarto bífido, uñas simples. Abdomen (fig. 2C): esternitos sin puntuaciones estigmatiformes, de longitud semejante, 1-4 de 0.39 mm, presentan borde posterior ondulado y ángulos posteriores rectos y redondeados, parte media de esternitos 1-3 cóncava y del 4 recta, esternito 5 de 0.3 mm con borde posterior ondulado, parte media recta y ángulos posteriores romos, adicionalmente, presenta un cúmulo de sedas que forman un cono, esternito 6 de 0.3 mm con borde posterior ligeramente ondulado, parte media recta y ángulos posteriores romos, presenta una mácula lútea con superficie glabra, esternito 7 de 0.25 mm con borde posterior ondulado y distintamente acuminado en su parte media, el esternito 8 de 0.25 mm, ojival, con la superficie convexa y el ápice redondo; terguitos 3-6 con proyecciones triangulares agudas en los ángulos posteriores, pigidio trilobulado; edeago (fig. 2D-F): pieza basal simétrica, está presente como una placa dorsal bilobulada, más corta (0.28 mm) que lóbulos laterales (0.32 mm), margen posterior marcadamente hendido; lóbulo medio asimétrico y largo (0.53 mm), cilíndrico con ápice ensanchado, en vista lateral curvado, poco esclerosado, orificio medio abierto ventralmente; lóbulos laterales simétricos (0.32 mm), fusionados ventro-basalmente, en vista lateral triangulares y con ápice romo, superficie interna con un diente. Hembra desconocida.
Figura 2. Magnoculus tlaloque Zaragoza-Caballero y Gutiérrez-Carranza, sp. nov. A) Vista dorsal, B) vista ventral, C) abdomen en vista ventral, D) vista dorsal edeago, E) vista ventral edeago, F) vista lateral edeago.
Variación: en algunos ejemplares se registró que solamente la porción apical de la lamela del antenómero 11 es el que presenta la coloración amarilla, mientras que las lamelas de los antenómeros 3-10 son enteramente marrones oscuros, por otra parte, el paratipo proveniente de la localidad de Adolfo Ruiz Cortines en general es de coloración castaño oscuro, con excepción del pronoto.
Resumen taxonómico
Etimología. El nombre específico corresponde a la palabra en náhuatl “tlälòquè”; en la mitología mexica es el nombre con que se refiere a los ayudantes de la deidad “Tláloc”, encargados de repartir la lluvia. Género neutro. En reconocimiento a la narrativa tradicional de algunos sitios de avistamiento de luciérnagas en donde se asocia la presencia de “tlaloques” con la temporada de lluvias y, por tanto, el surgimiento de estos insectos luminosos.
Tabla 1
Características de Magnoculus guatemalae y M. tlaloque, sp. nov.
Carácter
M. guatemalae
M. tlaloque
Talla
largo: ≥ 8 mm, ancho: ≥ 3 mm
largo: 5.6 mm, ancho: 2.2 mm
Ojos
grandes: 2/3 de la cabeza
reducidos: 2/5 de la cabeza
Ápice de las lamelas de los antenómeros 3-11
negro
amarillo
Color del pronoto
amarillo, con máculas rojizas
amarillo, sin máculas rojizas
Color de los élitros
margen humeral y lateral: castaño oscuro
margen humeral y lateral: amarillo
Trocánteres, fémures y tibias
ferruginosos
amarillos
Mácula lútea
en el borde posterior del esternito 4
en la superficie media del esternito 6
Material examinado. Holotipo. Macho: México, Veracruz, E.B.T., 18°21’03.0’’ N, 95°02’38’’ O, 24-VII-2013 al 16-VIII-2013, 128 m snm, Jardín Botánico Acahual de B.T.P., C5 Malaise 11, Col. M. Madora | COL.TIP-03938. Paratipos: 6 machos. Uno con los mismos datos que el holotipo; 1, Estación de Biología “Los Tuxtlas”, 12-VIII-1985, 160 m snm, Col. A. Ibarra; 1, misma localidad, 15-VIII-1986, 180 m snm, Col. A. Ibarra; 1, El Vigía, 01-VIII-1986, 480 m snm, T.M., Col. E. Ramírez; 1, 17-IX-1989, Col. E. Barrera; 1, Adolfo Ruiz Cortines, 07-VI-2018, Cols. P.C.R., V.V.B. y S.L.P. | COL.TIP-03939-03944.
Comentarios taxonómicos
Zaragoza-Caballero (1995) ubicó a esta especie como cercana a M. guatemalae; sin embargo, este especimen se comparó con fotos del ejemplar tipo depositado en el Museo de Historia Natural de Londres y se reconocieron características que permiten segregarla de M. guatemalae (tabla 1).
Amydetes Illiger, 1807
Especie tipo: Amydetes fastigiata Illiger, 1807: 342
Cuerpo alargado, pequeño, paralelo; con 2 esternitos luminosos; pronoto transverso, borde posterior bisinuoso, ángulos posteriores agudos; élitros alargados, submembranosos, con costillas evidentes. Cabeza: parcialmente cubierta por pronoto; espacio interocular plano, frente amplia; antenas contiguas, medianas, con 20 o más antenómeros, a partir del tercero con ramas largas en abanico, último similar a ramas; ojos muy grandes, enteros, dorsal y ventralmente separados; sutura frontoclipeal indistinta; mandíbulas dirigidas hacia delante, expuestas; último palpómero maxilar y labial robustos, ovalados. Tórax: pronoto ampliamente explanado lateralmente; eplipleura angosta; patas delgadas, primer tarsómero más largo que 2 siguientes juntos, cuarto reducido, quinto en gran parte libre, uñas simples.Abdomen: no lobulado, ángulos posteriores romos; pigidio trilobulado; último esternito truncado o ligeramente escotado. Hembra desconocida.
Amydetes fastigiata Illiger, 1807
Cuerpo alargado, negro; pronoto blanquecino, disco con una mancha negra y 2 pequeñas manchas oblicuas anaranjadas; élitros oscuros, posteriormente ensanchados, con margen lateral y sutural blanquecino; parte media de esternitos 5-6 con manchas luminosas; edeago con pieza basal reducida, lóbulos laterales cortos, lóbulo medio largo y cilíndrico.
Para Silveira y Mermudes (2014), A. plumicornis Latreille, 1811, es sinónimo de A. fastigiata Illiger, 1807.
Distribución: México: Yucatán.
*Bicellonycha Motschulsky,1853
Especie tipo: Bicellonycha albilatera Gyllenhal, 1817: 21
Macho. Talla: largo 10.2 mm; ancho 2.96 mm. Cuerpo ovoide, pronoto negro con margen amarillo y élitros negros con margen amarillo y una tenue banda oblicua amarilla; ojos grandes; clípeo unidentado; aparato luminoso presente en los esternitos 5-6 más largos que precedentes, con puntuaciones laterales, borde posterior del 7 mucronado; edeago corto, lóbulos laterales paralelos, cubriendo dorsalmente al lóbulo medio provisto de 2 dientes dorsolaterales.
Distribución: México: Oaxaca, Veracruz.
*Bicellonycha amoena (Gorham, 1880b). En Zaragoza-Caballero et al. (2020).
Photuris amoena Gorham, 1880b: 108
Distribución: Chiapas, Colima, Guerrero, Hidalgo, Jalisco, Estado de México, Guanajuato, Morelos, Michoacán, Nayarit, Oaxaca, Puebla, San Luis Potosí, Tamaulipas y Veracruz.
*Bicellonycha collaris (Gorham, 1880b). En Zaragoza-Caballero et al. (2020).
Photuris collaris Gorham, 1880:107
Distribución: Chiapas, Estado de México, Morelos, Puebla y Veracruz.
Bicellonycha crassa (Gorham, 1884)
Photuris crassa Gorham, 1884: 274
Figs. 3B, 4A
Macho. Talla: largo 9.17 mm, ancho 3.33 mm. Cuerpo casi paralelo, pronoto amarillo, con una mancha negra alargada; élitros amarillos con una banda longitudinal ancha que va desde escutelo a parte media uniéndose con una mancha negra; ojos medianos; clípeo con 3 dientes; aparato luminoso presente en esternitos 5-6, éstos tan largos como precedentes, sin puntuaciones laterales; borde posterior del 7 mucronado con ápice redondeado; edeago corto, lóbulos laterales anchos y espatulados, lóbulo medio con una quilla triangular.
Distribución: México: Chiapas, Oaxaca y Veracruz.
*Bicellonycha discicollis (Gorham, 1881). En Zaragoza-Caballero et al. (2020).
Photuris discicollis Gorham, 1881: 57.
Distribución: Chiapas, Hidalgo, Estado de México, Morelos, Nayarit, Oaxaca y Veracruz.
Bicellonycha facialis (Gorham, 1881)
Photuris facialis Gorham, 1881: 59
Macho. Talla: largo 7.99 mm; ancho 2.99 mm. Cuerpo paralelo, castaño, pronoto con una pequeña mancha negra basal; élitros rojizos, marginados; ojos pequeños, ovoides; clípeo con 3 dientes; aparato luminoso presente en esternitos 5-6, éstos tan largos como precedentes, sin puntuaciones laterales; esternito 7 con un mucrón largo y apicalmente agudo; edeago corto, cilíndrico, lóbulos laterales anchos y espatulados, lóbulo medio con 3 dientes dorsales.
Distribución: Veracruz.
*Bicellonycha gorhami Zaragoza-Caballero, 1989. En Zaragoza-Caballero et al. (2020).
Distribución: Estado de México, Guerrero, Jalisco, Morelos y Veracruz.
*Bicellonycha limbata Pic, 1924. En Zaragoza-Caballero et al. (2020).
Distribución: Chiapas, Jalisco, Morelos, Oaxaca, Puebla y Veracruz.
*Bicellonycha mexicana (Gorham, 1880b). En Zaragoza-Caballero et al. (2020).
Photuris mexicana Gorham, 1880: 108
Distribución: Estado de México, Morelos, Puebla y Veracruz.
*Bicellonycha ruficollis (Gorham, 1880b). En Zaragoza-Caballero et al. (2020).
Photuris ruficolli Gorham, 1880: 107
Distribución: Estado de México, Hidalgo, Morelos y Veracruz.
*Bicellonycha stigmatica (Olivier, 1886). En Zaragoza-Caballero et al. (2020).
Photuris stigmatica Olivier, 1886: 245
Distribución: Chiapas, Oaxaca, Puebla y Veracruz.
*Photuris Dejean, 1833
Especie tipo: Lampyris versicolor Fabricius, 1798: 125 designado por Barber, 1951:11
*Photuris fulvipes (Blanchard, 1846). En Zaragoza-Caballero et al. (2020).
Lampyris fulvipes Blanchard, 1846: 115
Distribución: Estado de México, Hidalgo, Morelos y Veracruz.
*Photuris lugubris Gorham, 1881. En Zaragoza-Caballero et al. (2020, 2023).
Distribución: Ciudad de México, Guerrero, Jalisco, Morelos, Oaxaca y Tamaulipas.
Photuris mollis Gorham, 1880
Figs. 3C, 4B
Macho. Talla: largo 7.00-8.00 mm, ancho 1.71 mm. Cuerpo alargado, paralelo, castaño, pronoto blanquecino con una pequeña mancha negra piriforme; ojos grandes, reniformes; clípeo transverso; élitros marrones, márgenes sutural y laterales amarillos; aparato luminoso ocupando esternitos 5-6; edeago transparente, con pieza basal muy corta, lóbulos laterales largos con proyección lateral aún más larga, lóbulo medio largo y apicalmente comprimido.
Distribución: México: Oaxaca y Veracruz.
*Photuris tenuisignathus Zaragoza-Caballero, 1995. En Zaragoza-Caballero et al. (2023).
Distribución: Chiapas, Oaxaca, San Luis Potosí y Veracruz.
Photuris trivittata Lloyd y Ballantyne, 2003
Figs. 3D, 4C
Macho. Talla: largo 14 mm; ancho 6 mm. Cuerpo ovoide, amarillo, pronoto con una mancha negra longitudinalmente dividida; élitros amarillos con 3 o 4 bandas oscuras; ojos grandes, reniformes; clípeo pentagonal; aparato luminoso presente en esternitos 5-6, éstos, más largos que precedentes; esternito 7 con un mucrón mediano y romo; edeago con pieza basal muy corta, lóbulos laterales largos con una proyección lateral aún más larga, lóbulo medio largo y comprimido.
Distribución: México: Chiapas, Quintana Roo, Tabasco y Veracruz.
*Photuris versicolor (Fabricius, 1798)
Lampyris versicolor Fabricius, 1798: 125
Photuris quadrifulgens Barber, 1951
Especie citada por Zaragoza-Caballero (1995a) y Zaragoza-Caballero et al. (2020) como P. trilineata (Say, 1835).
Distribución: Puebla, Oaxaca y Veracruz.
*Pleotomus LeConte, 1861
Especie tipo: Pleotomus pallens LeConte, 1866: 88
Blackwelder y Arnett (1974: 1), Gorham (1880a: 10), Green (1948: 69, 1959: 91), LeConte (1861: 184, 1881: 38), McDermott (1964: 20; 1966: 20), Olivier (1907: 10, 1911: 42), Zaragoza-Caballero (2002: 325), Zaragoza-Caballero et al. (2020: 56) y Zaragoza-Caballero, López-Pérez et al. (2023: 8). Diagnosis en Zaragoza et al. (2020) y Zaragoza-Caballero, López-Pérez et al. (2023).
*Pleotomus pallens LeConte, 1866. En Zaragoza et al. (2020) y Zaragoza-Caballero, López-Pérez et al. (2023).
Distribución: Durango, Jalisco, Michoacán, Nayarit, Nuevo León, Oaxaca, Puebla, San Luis Potosí, Sinaloa, Tamaulipas y Veracruz.
*Phaenolis Gorham, 1880
Especie tipo: Phaenolislaciniatus Gorham, 1880a: 10
*Phaenolis alboterminatus Zaragoza-Caballero, 1995. En Zaragoza-Caballero et al. (2020)
Distribución: Morelos y Veracruz.
Phaenolis mexicana McDermott, 1958
Macho. Talla: largo 12.6 mm, ancho 4.75mm. Cuerpo ovoide, color negro, pronoto totalmente amarillo con una mancha cuadrangular castaño; élitros negros, con 3 costillas; sin aparato luminoso; esternitos 5-6, marrones, sin puntuaciones laterales; esternito 7 corto, emarginado y amarillento; esternito 8 bilobulado y amarillento; pieza basal del edeago asimétrica, lóbulos laterales asimétricos, dorsalmente soldados, más cortos que lóbulo medio, éste, claramente curvado.
Distribución: México: Puebla y Veracruz.
Phaenolis ustulata Gorham, 1880
Figs. 3E, 4D
Macho. Talla: largo 11.18-16.14 mm; ancho 5.45-5.73 mm. Cuerpo ovoide, pronoto amarillento, con una mancha negra variable; élitros con mitad anterior amarillenta y apical negra; sin aparato luminoso; esternitos 5-6, tan largos como precedentes, sin puntuaciones laterales, borde posterior del 7 bicóncavo, borde posterior del 8 ojival; pieza basal del edeago asimétrica, lóbulos laterales asimétricos, dorsalmente soldados, más cortos que lóbulo medio, éste, claramente curvado.
Distribución: México: Chiapas, Oaxaca y Veracruz.
*Tenaspis LeConte, 1881
Especie tipo: Hyas angularis Gorham, 1880a: 7
Blackwelder (1945: 355), Blackwelder y Arnett (1974: 1), Gorham (1884: 250), Green (1948: 68, 1959: 93), LeConte (1881: 33), McDermott (1964: 23, 1966: 26), Olivier (1885b: 135, 1907: 22, 1911: 67); Zaragoza-Caballero (1995: 23), Zaragoza-Caballero, López-Pérez et al. (2023: 9). Diagnosis en Zaragoza-Caballero, López-Pérez et al. (2023).
Tenaspis gonzalenzis Zaragoza-Caballero, 1995
Figs. 3F, 4E
Macho. Talla: largo 11.32 mm, ancho 6 mm. Cuerpo escudiforme, color negro, pronoto amarillo rojizo, con 3 manchas negras, élitros negros, sin aparato luminoso; esternitos 5-6, más largos que precedentes, sin puntuaciones laterales, borde posterior del 7 cóncavo, 8 profundamente emarginado, ángulos posteriores de terguitos muy prominentes; pieza basal del edeago simétrica, tan larga como lóbulos laterales, éstos, en vista lateral casi cuadrangulares, con una proyección curvada, lóbulo medio membranoso, más largo que lóbulos laterales.
Distribución: México: Chiapas y Veracruz.
*Cratomorphus Motschulsky, 1853
Especie tipo: Photinus fabricii Laporte, 1840: 258; designación original.
*Cratomorphus concolor (Perty, 1830). En Zaragoza-Caballero et al. (2020) y Zaragoza-Caballero, López-Pérez et al. (2023).
Lampyris concolor Perty, 1830: 30
Distribución: Campeche, Chiapas, Estado de México, Hidalgo, Puebla, Quintana Roo, San Luis Potosí, Tabasco, Veracruz y Yucatán.
Cratomorphus leoneli Lima et al., 2021. Ver fotografías en Lima et al. (2021)
Macho. Talla: largo 11.7 mm; ancho 2.4 mm. Cuerpo escudiforme, color amarillo obscuro, pronoto castaño, márgenes amarillos, manchas translúcidas reniformes; élitros amarillo oscuro, con 2 costillas longitudinales, aparato luminoso ocupando parte de esternitos 5-6, éstos tan largos como precedentes, sin puntuaciones laterales, borde posterior del 7 cóncavo, con 2 puntos blanquecinos, 8 semicircular; pieza basal del edeago asimétrica, lóbulos laterales dorso basalmente soldados, éstos, en vista lateral casi triangulares, lóbulo medio lateralmente comprimido, curvado, ápice redondeado.
Distribución: México: Campeche, Chiapas, Oaxaca.
Cratomorphus picipennis Gorham, 1881
Figs. 3G, 4F
Macho. Talla: largo 13.05-16.25 mm, ancho 6.11-7.92 mm. Cuerpo escudiforme, pronoto amarillento, con una mancha piriforme negra, élitros negros, con margen sutural y lateral amarillo y 2 costillas longitudinales, aparato luminoso ocupando parte de esternitos 5-6, éstos, tan largos como precedentes, sin puntuaciones laterales, borde posterior del 7 cóncavo, 8 semicircular; pieza basal del edeago simétrica, lóbulos laterales dorso-basalmente soldados, éstos, en vista lateral casi triangulares, lóbulo medio lateralmente comprimido, cubierto por los lóbulos laterales.
Distribución: México: Chiapas y Veracruz.
*Cratomorphus signativentris Olivier, 1895. En Zaragoza-Caballero, López-Pérez et al. (2023).
Distribución: Campeche, Chiapas, Oaxaca, Querétaro, Quintana Roo, San Luis Potosí, Tabasco y Veracruz.
*Aspisoma Laporte, 1833
Especie tipo: Lampyris ignita Linnaeus, 1767: 645; designada por McDermott, 1966: 229.
Blackwelder (1945: 356), Blackwelder y Arnett (1974: 2), Gorham (1881: 53), Green (1948: 68, 1959: 93), Lacordaire (1857: 326), Laporte (1833: 145), Linnaeus (1767: 645), McDermott (1964: 24, 1966: 229), Motschulsky (1853: 35), Olivier (1907: 29, 1911: 78), Zaragoza-Caballero (1995: 28), Zaragoza-Caballero et al. (2020: 5) y Zaragoza-Caballero, López-Pérez et al. (2023: 9). Diagnosis en Zaragoza-Caballero et al. (2020) y Zaragoza-Caballero, López-Pérez et al. (2023).
*Aspisoma aegrota (Gorham, 1880b). En Zaragoza-Caballero et al. (2020).
Aspidosoma aegrota Gorham, 1880b: 84
Distribución: Chiapas, Hidalgo, Jalisco, Morelos, Michoacán, Oaxaca, Puebla, San Luis Potosí y Veracruz.
*Aspisoma depictum (Gorham, 1880b). En Zaragoza-Caballero, López-Pérez et al. (2023).
Aspidosoma depictum Gorham 1880b: 85
Distribución: Campeche, Michoacán y Veracruz.
*Aspisoma diaphana (Gorham, 1880). En Zaragoza-Caballero et al. (2020).
Aspidosoma diaphana Gorham, 1880b: 86
Distribución: Oaxaca, Puebla y Veracruz.
*Aspisoma ignitum (Linnaeus, 1767). En Zaragoza-Caballero et al. (2020).
Lampyris ignita Linnaeus, 1767: 645
Distribución: Campeche, Morelos, Puebla, San Luis Potosí y Veracruz.
Aspisoma lepidum (Gorham, 1881)
Aspidosomalepidum Gorham, 1881: 54
Macho. Talla: largo 7-8 mm. Cuerpo ovalado, brillante, pronoto amarillo, manchas laterales fusionadas con mancha discal, sin alcanzar margen posterior, élitros oscuros con bandas pálidas, estrechamente punteados aparato luminoso del macho ocupa esternitos 5 y 6, en hembra ocupa parte media del 5.
Distribución: México: Campeche.
*Aspisoma pulchellum (Gorham, 1880b). En Zaragoza-Caballero et al. (2020).
Aspidosoma pulchellum Gorham, 1880b: 86
Distribución: Chiapas, Estado de México, Tabasco y Veracruz.
Aspisoma quasidiaphana Zaragoza-Caballero, 1995
Figs. 3H, 4G
Macho. Talla: largo 12.6 mm, ancho 6.91 mm. Cuerpo escudiforme, color amarillo; mancha negra del pronoto irregular, más amplia en base; élitros amarillos, con 4 bandas longitudinales y 2 transversas marginales de color negro, centro de los esternitos 5-6 con aparato luminoso; éstos más largos que precedentes, con puntuaciones laterales, borde posterior del 7 casi recto, 8 ojival; pieza basal del edeago simétrica, lóbulos laterales dorso basalmente soldados, lóbulo medio lateralmente comprimido, cubierto por lóbulos laterales.
Distribución: México: Veracruz.
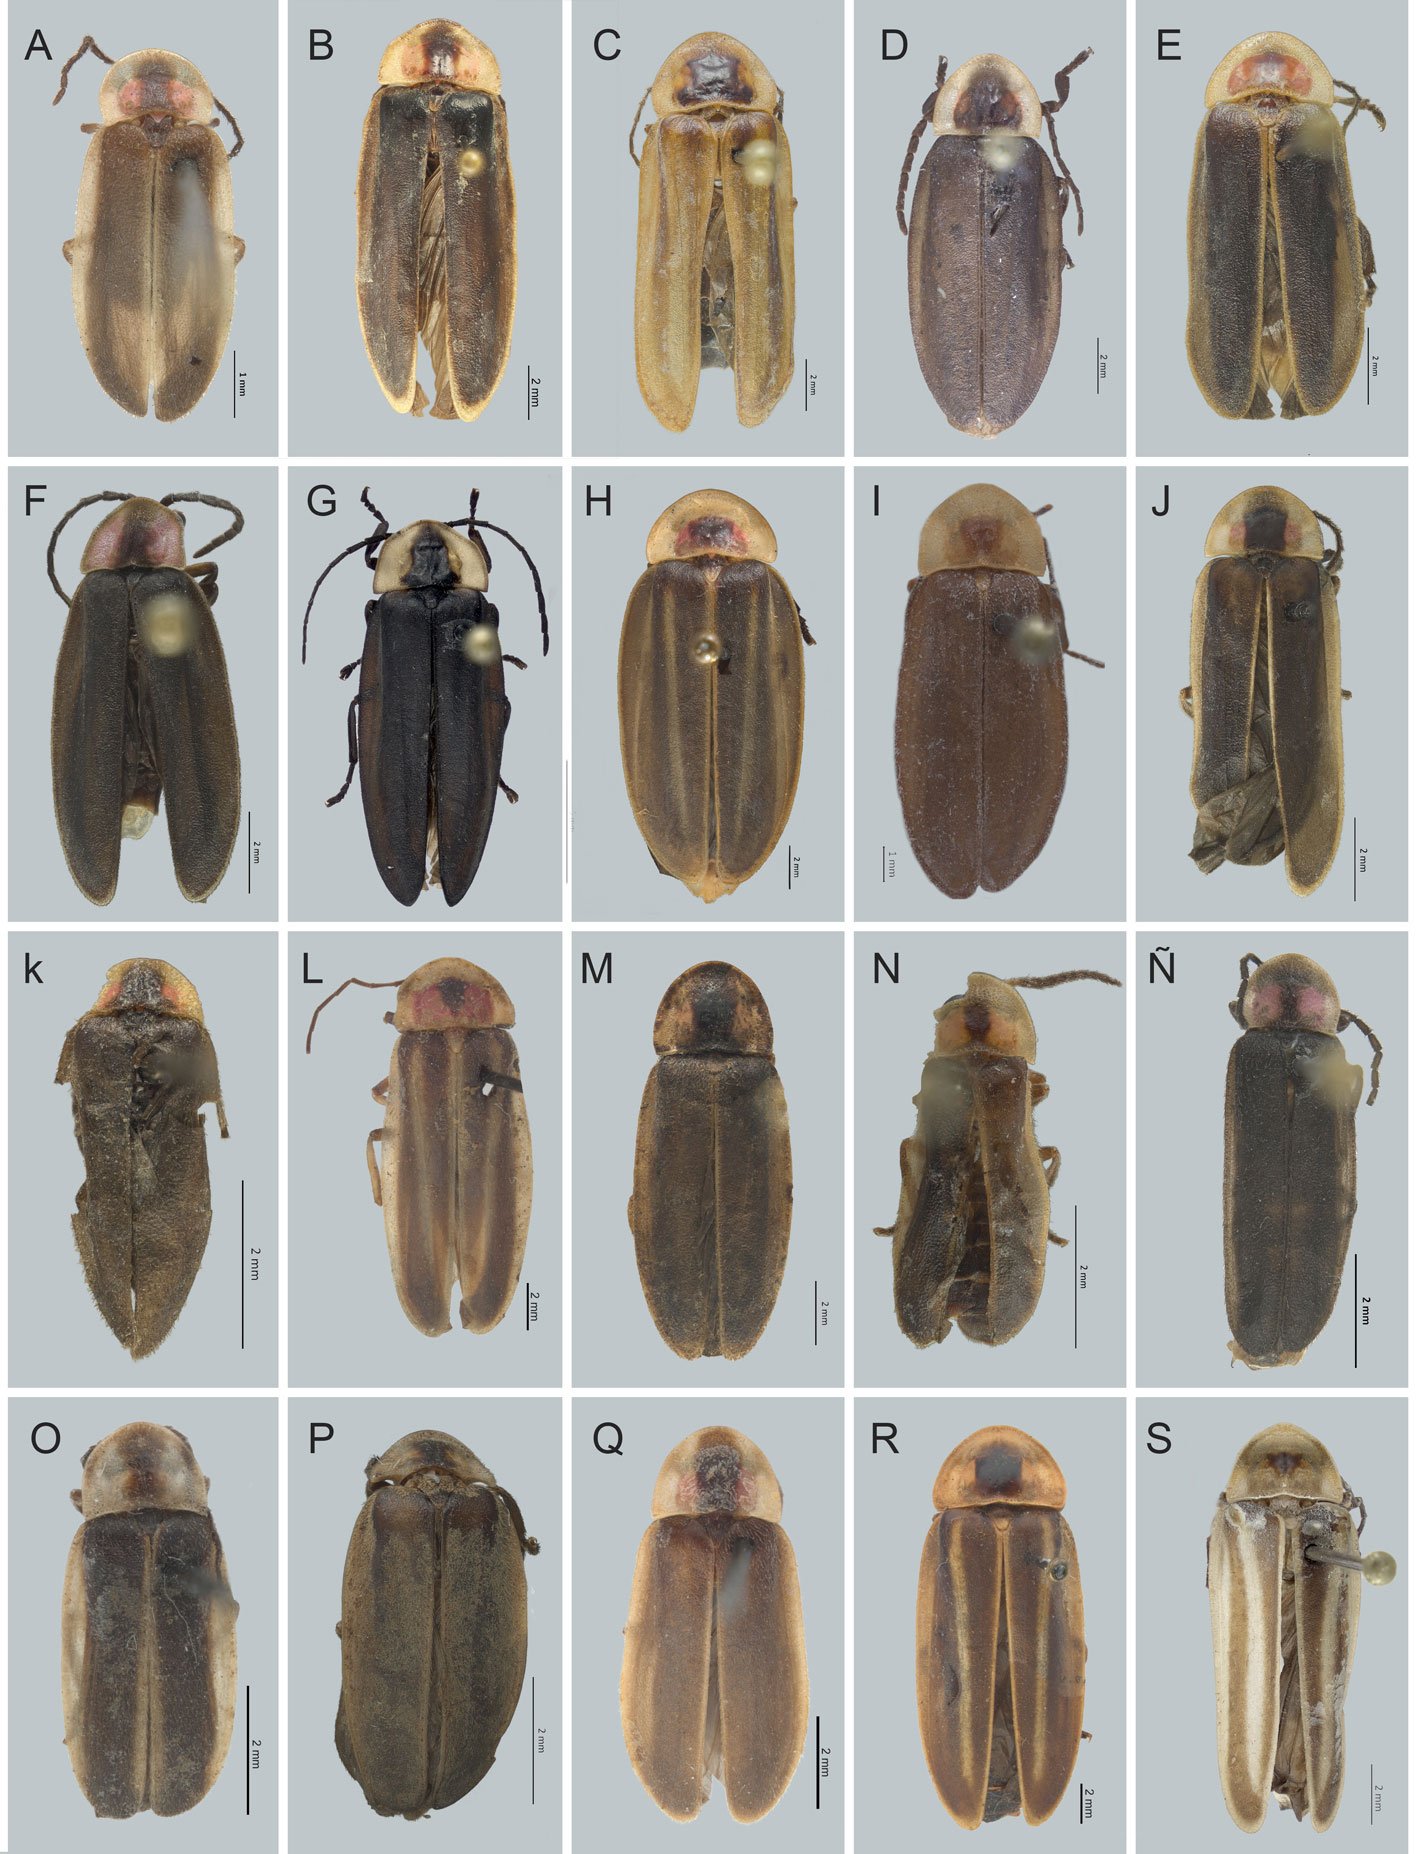
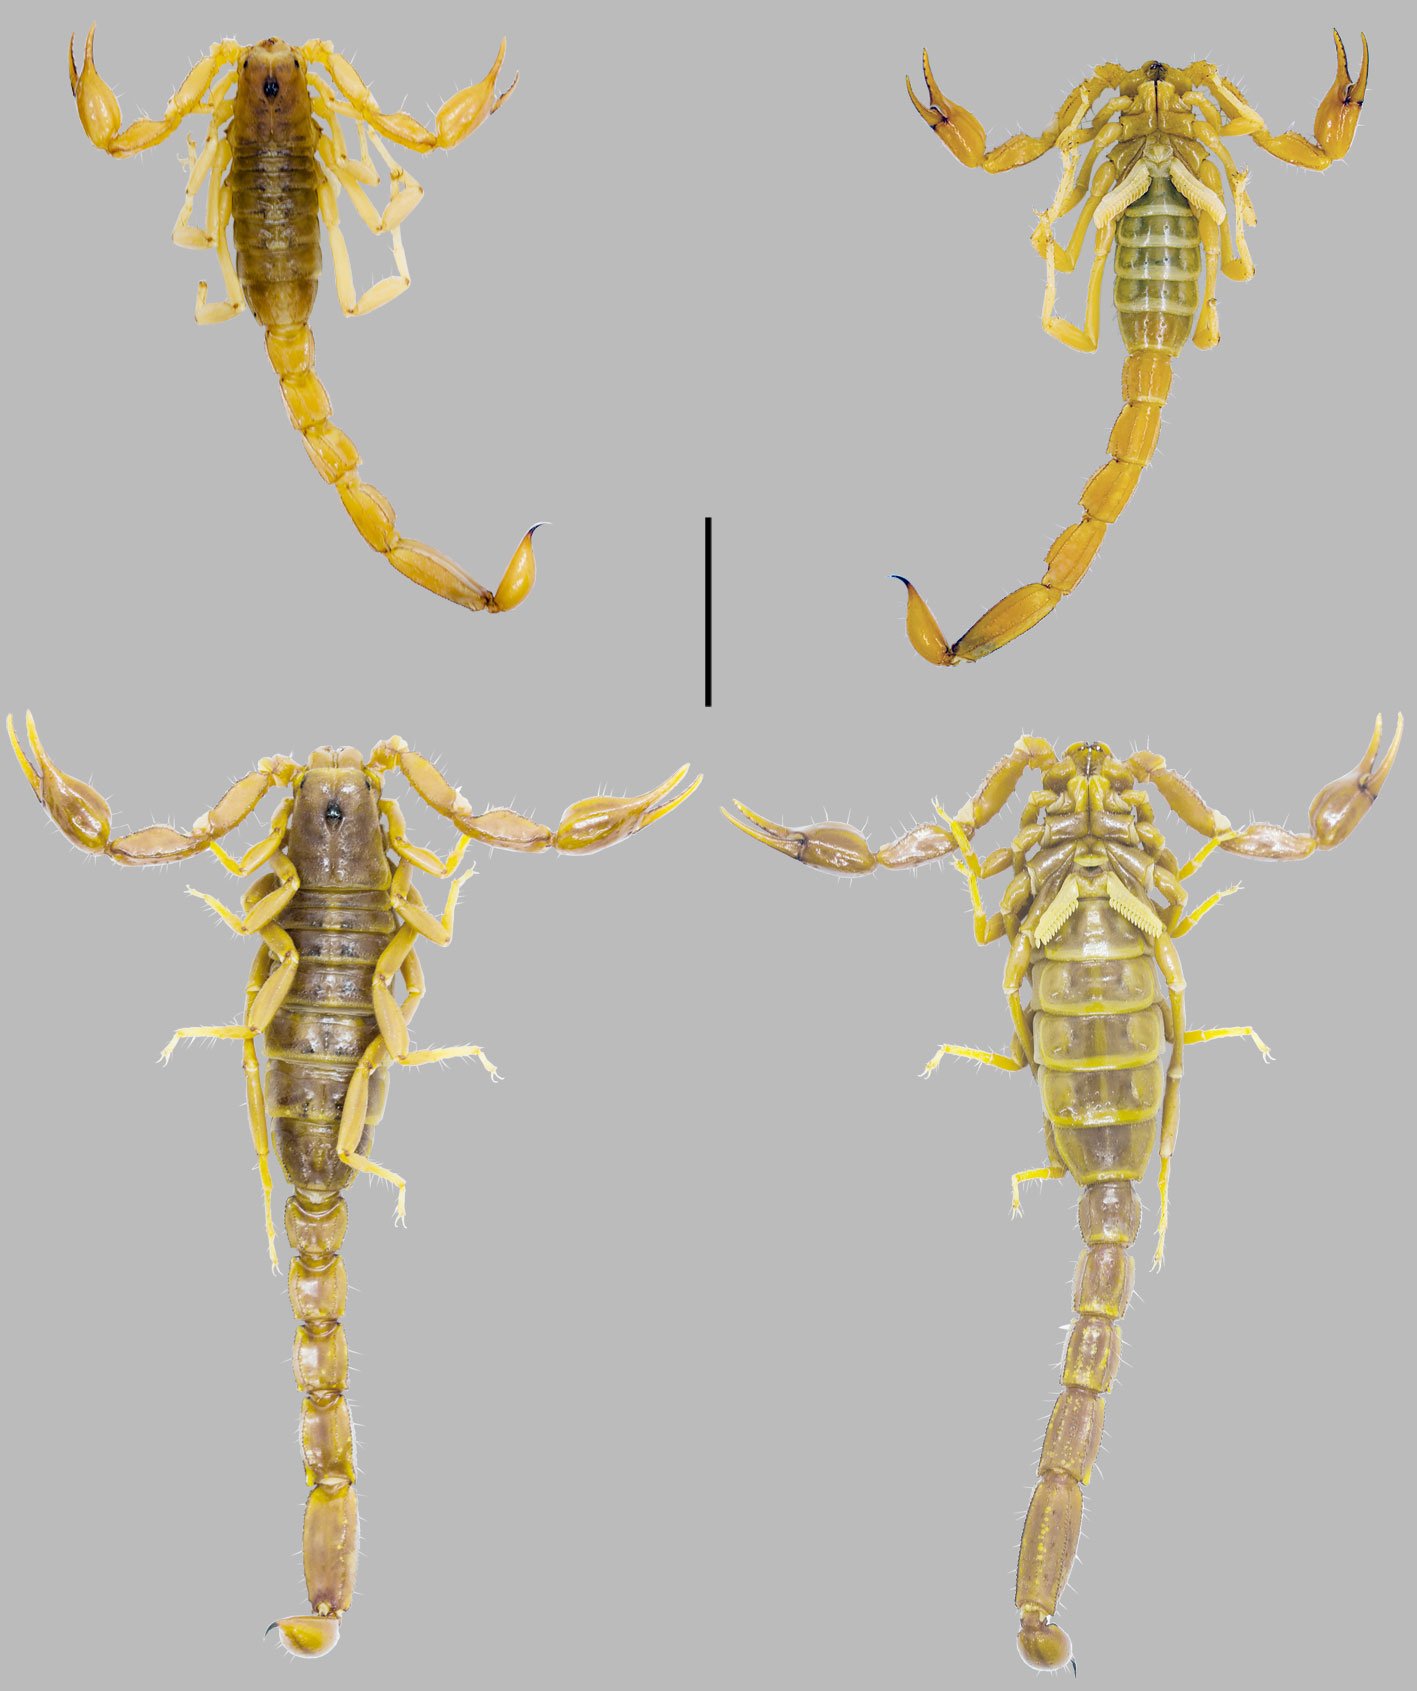
Figura 3. Vista dorsal de especies de Lampyridae. A) Bicellonycha albomarginata, B) Bicellonycha crassa, C) Photuris mollis, D) P. trivittata, E) Phaenolis ustulata, F) Tenaspis gonzalenzis, G) Cratomorphus picipennis, H) Aspisoma quasidiaphana.
Aspisoma yucatanum Olivier, 1908
Macho. Talla: largo 7-8 mm. Cuerpo escudiforme, ambarino, pronoto amarillo, con una mancha triangular oscura y 2 puntos laterales de color castaño; escutelo castaño; élitros marrones, con margen lateral y sutural amarillo.
Distribución: México: Yucatán.
*Pyractomena Melsheimer, 1846
Especie tipo: Pyractomena lucifera Melsheimer, 1846; designada por McDermott, 1966.
Blackwelder (1945: 355), Blackwelder y Arnett (1976: 2), Gorham (1880a: 32), Green (1948: 68, 1957: 237, 1959: 93), Lacordaire (1857: 324), LeConte (1851: 336), Leng y Mutchler (1922: 452), McDermott (1964: 25, 1966: 32), Melsheimer (1846: 304), Motschulsky (1853: 37), Olivier (1899: 371, 1907: 31, 1911: 99), Zaragoza-Caballero et al. (2020: 7) y Zaragoza-Caballero, López-Pérez et al. (2023: 10). Diagnosis en Zaragoza-Caballero et al. (2020) y Zaragoza-Caballero, López-Pérez et al. (2023).
*Pyractomena angulata (Say, 1825). En Zaragoza-Caballero et al. (2020) y Zaragoza-Caballero, López-Pérez et al. (2023).
Lampyris angulata Say 1825: 261
Distribución: Morelos, Nuevo León, Puebla, San Luis Potosí, Tamaulipas y Veracruz.
Pyractomena striatella Gorham, 1880
Macho. Talla: largo 10-13 mm. Cuerpo alargado, castaño, ovoide, pronoto ojival, carinado, amarillo, con 2 manchas oscuras laterales y una apical; élitros marrones, con margen lateral y sutural amarillo y bicarinado; esternitos oscuros con margen posterior amarillo y lateral rojizo, esternitos 5-6 con aparato luminoso, éstos más largos que los precedentes, sin puntuaciones laterales, borde posterior del 7 casi recto, 8 mucronado.
Distribución: México: Chiapas, Quintana Roo y Tabasco.
Figura 4. Vista ventral de especies de Lampyridae. A) Bicellonycha crassa, B) Photuris mollis, C) P. trivittata, D) Phaenolis ustulata, E) Tenaspis gonzalenzis, F) Cratomorphus picipennis, G) Aspisoma quasidiaphana.
Pyractomena vexillaria Gorham, 1881
Macho. Talla: largo 15 mm. Cuerpo alargado, castaño, ovoide; antenas más cortas que pronoto, carinado, anaranjado y con 2 manchas angostas oscuras centro-basales; élitros bicarinados, acuminados, marrones, con margen lateral y sutural amarillo; esternitos amarillos, a excepción del cuarto.
Distribución: México: Tabasco y Veracruz.
*Aspisomoides Zaragoza-Caballero, 1995
Especie tipo: Aspidosoma bilineatum Gorham, 1880b, Zaragoza-Caballero, 1995 designación original. Diagnosis en Zaragoza-Caballero et al. (2020) y Zaragoza-Caballero, López-Pérez et al. (2023).
*Aspisomoides bilineatum (Gorham, 1880). En Zaragoza-Caballero et al. (2020).
Aspidosoma bilineatum Gorham, 1880b: 86
Distribución: Guerrero, Jalisco, Morelos, Michoacán, Nayarit, Oaxaca, San Luis Potosí, Sinaloa, Sonora, Tabasco, Tamaulipas y Veracruz.
*Aspisomoides costatum (Gorham, 1880). En Zaragoza-Caballero, López-Pérez et al. (2023).
Aspidosoma costatum Gorham, 1880b: 87
Distribución: Chiapas, Durango, Guerrero, Oaxaca, Tabasco y Veracruz.
*Photinus Laporte, 1833
Ellipolampis Motschulsky, 1853
Ellychnia Blanchard, 1845
Ellychnia Dejean, 1833
Ellychnia LeConte, 1881
Ellychnia Motschulsky, 1853
Lamprodes Motschulsky, 1853
Macrolampis Motschulsky, 1853
Paraphotinus Zaragoza-Caballero, 1995
Especie tipo: Lampyris pallens Fabricius, 1798: 96; designada por Fleutiaux et al. (1947).
Barber (1941: 2), Blackwelder (1945: 357), Blackwelder y Arnett (1974: 6), Fall (1927: 208), Gorham (1880a: 22, 1881: 38, 1884: 238); Green (1948: 68, 1956: 561, 1959: 93), Lacordaire (1857: 321), LeConte (1852: 334, 1881:34), Leng y Mutchler (1933: 21), McDermott (1964: 26, 1966: 35), Motschulsky (1853: 40), Olivier (1907: 33), Zaragoza-Caballero (1995a: 36), Zaragoza-Caballero et al. (2020: 10), Zaragoza-Caballero, López-Pérez et al. (2023: 13) y Zaragoza-Caballero, Zurita-García et al. (2023: 267). Diagnosis en Zaragoza-Caballero et al. (2020) y Zaragoza-Caballero, López-Pérez et al. (2023).
Photinus acremophallus Zaragoza-Caballero y Gutiérrez-Carranza, 2018
Photinus (Paraphotinus) acremophallus Zaragoza-Caballero y Gutiérrez-Carranza, 2018: 161
Figs. 5A, 6A, 7A, 8A, 9A
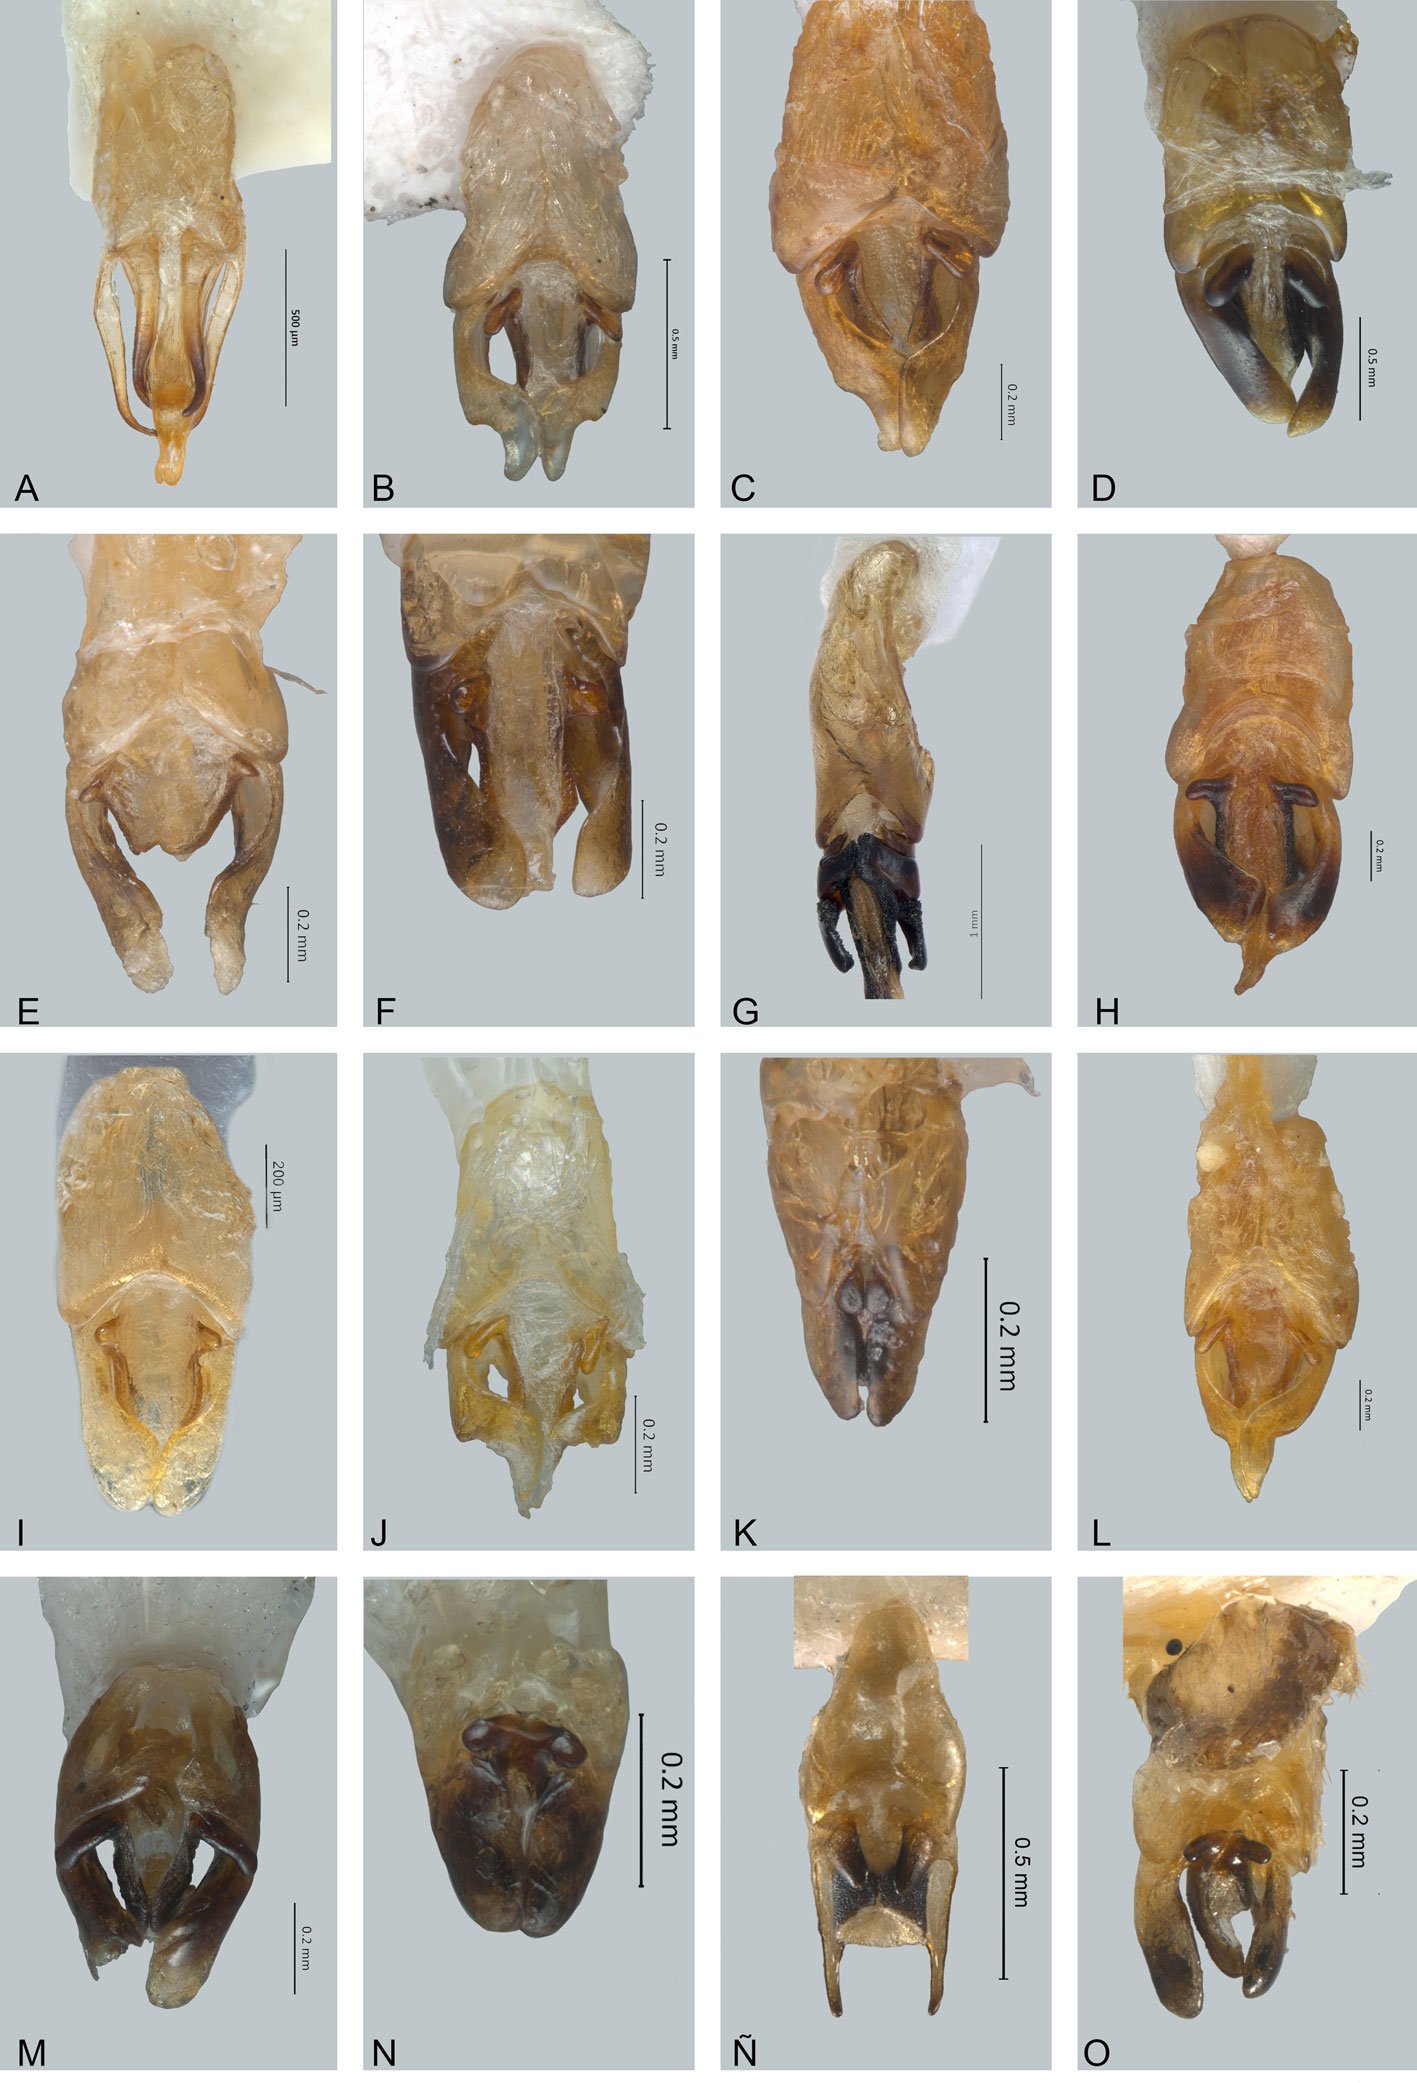
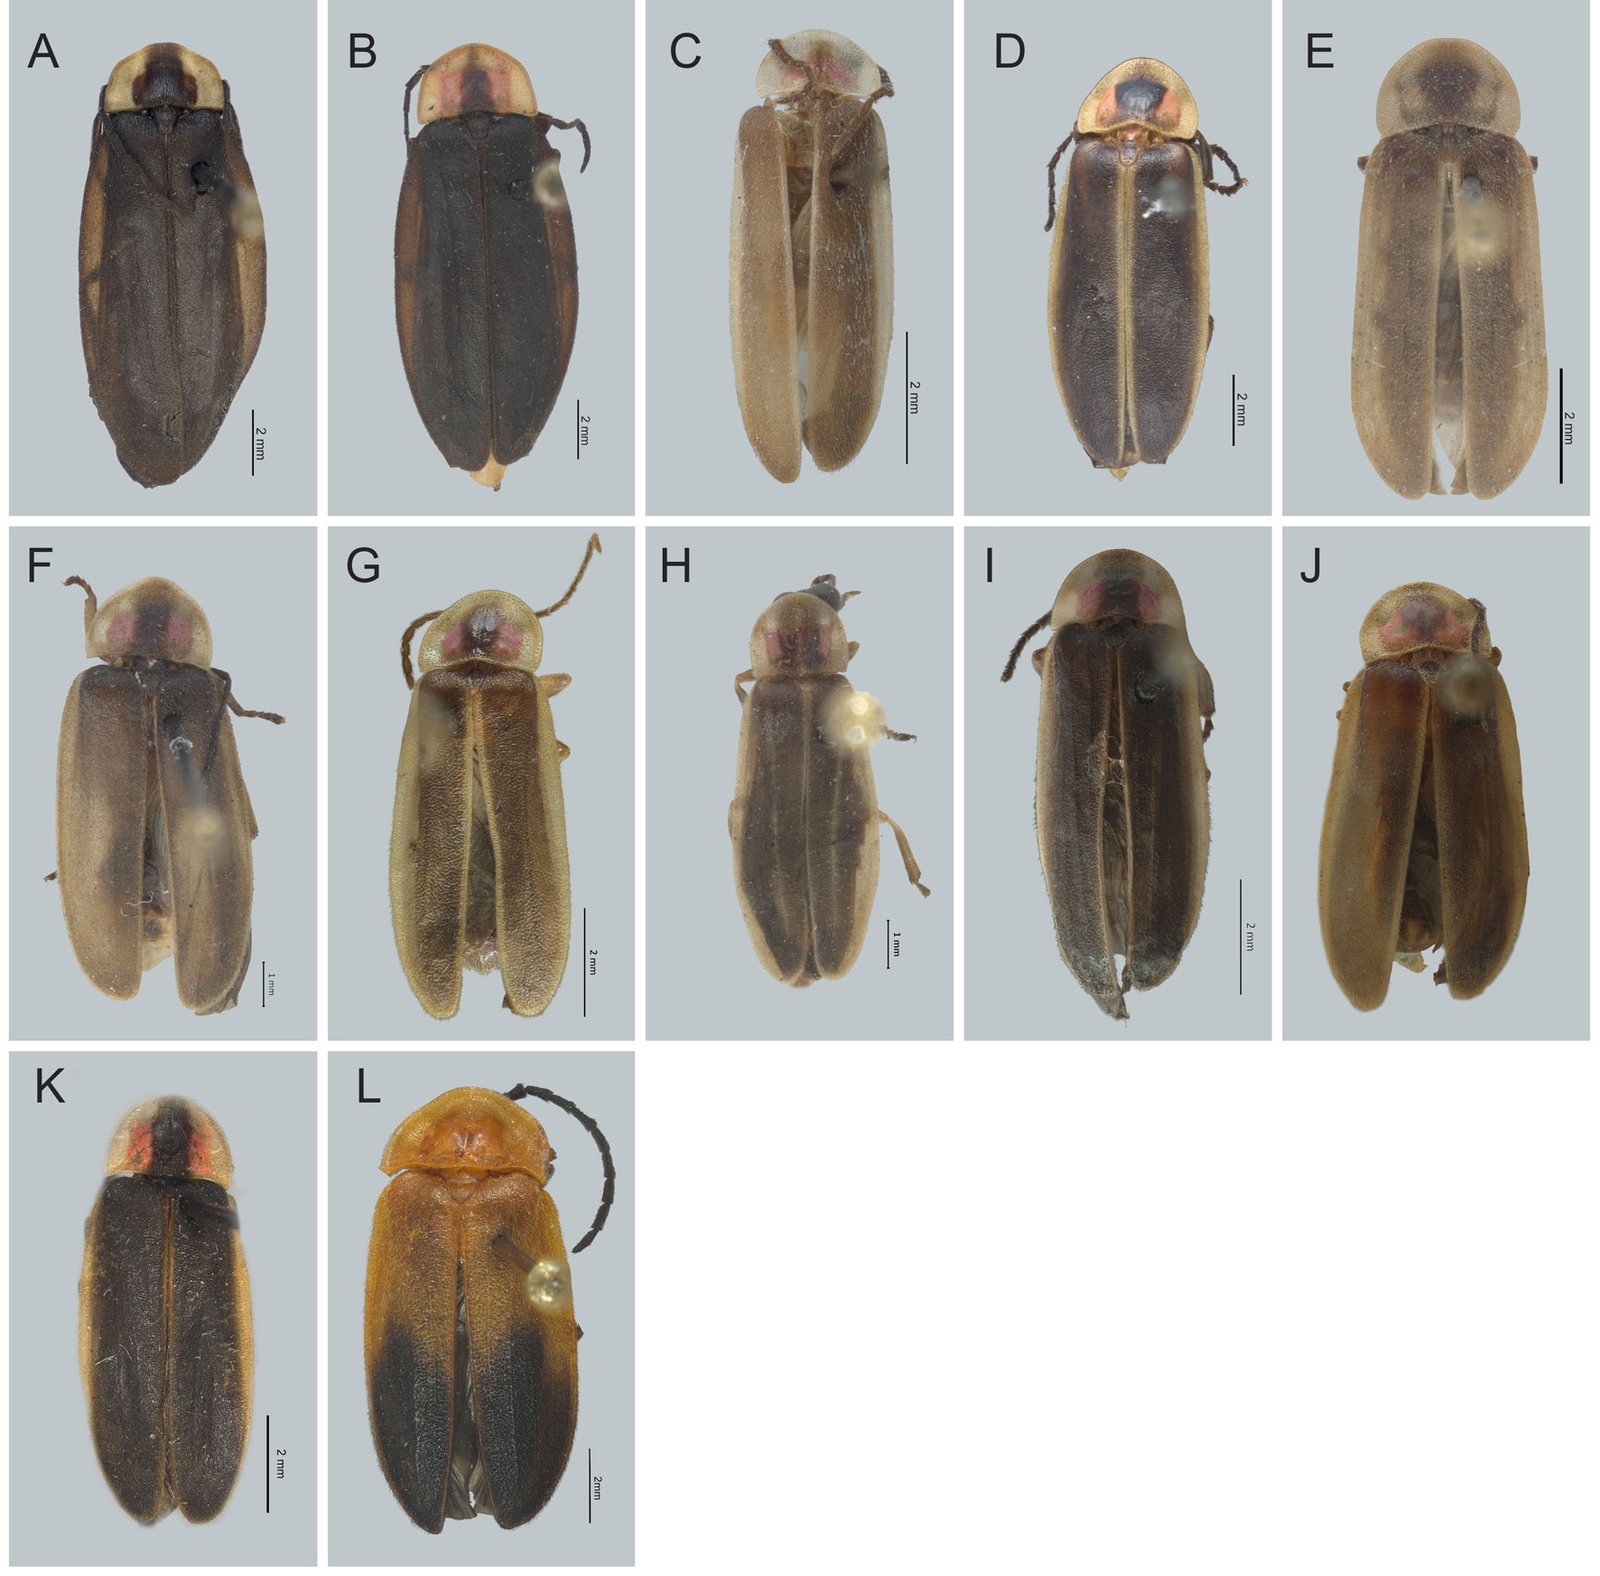
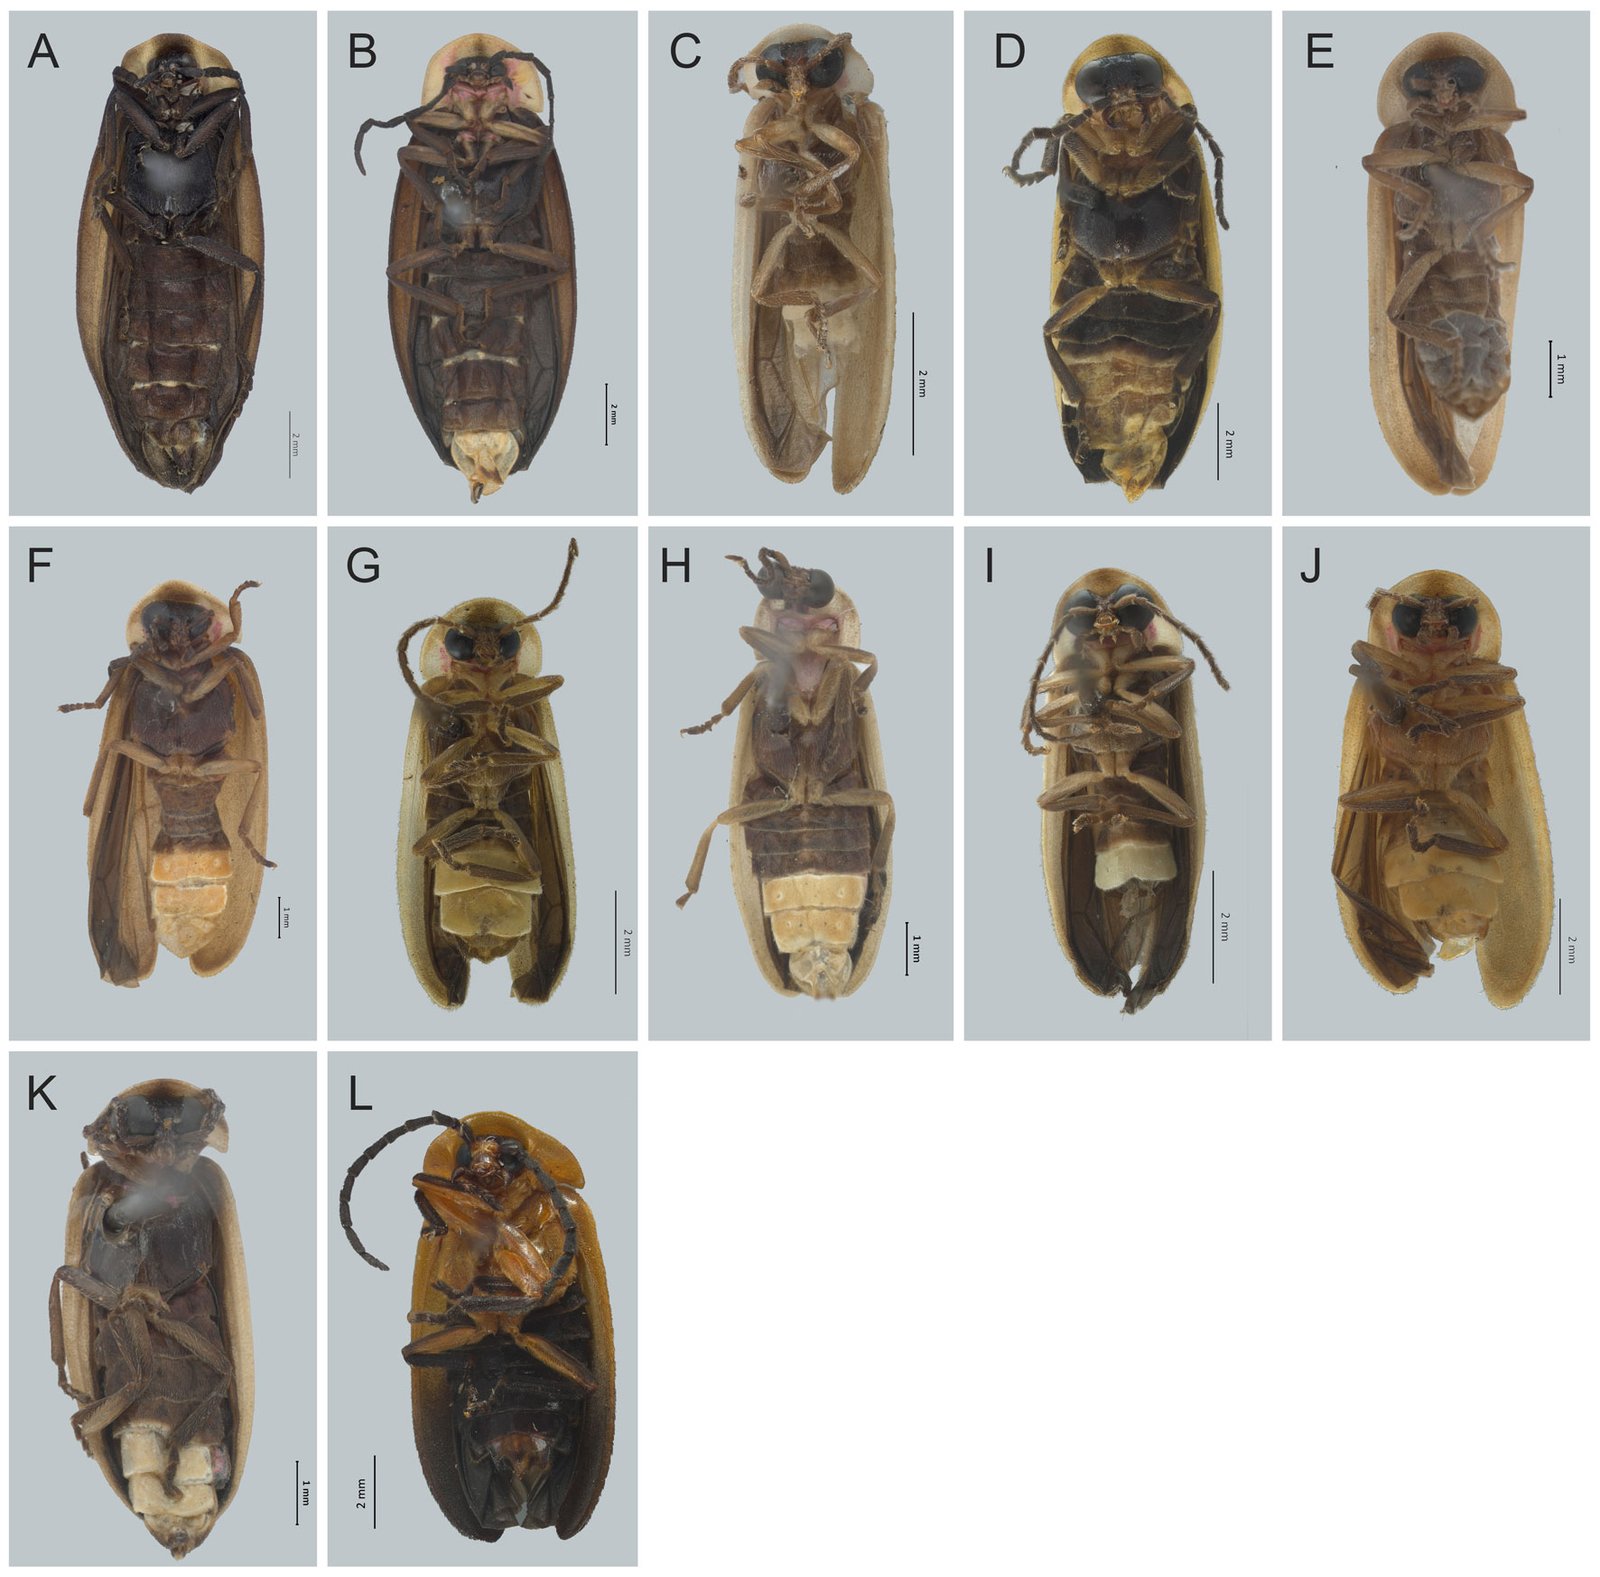
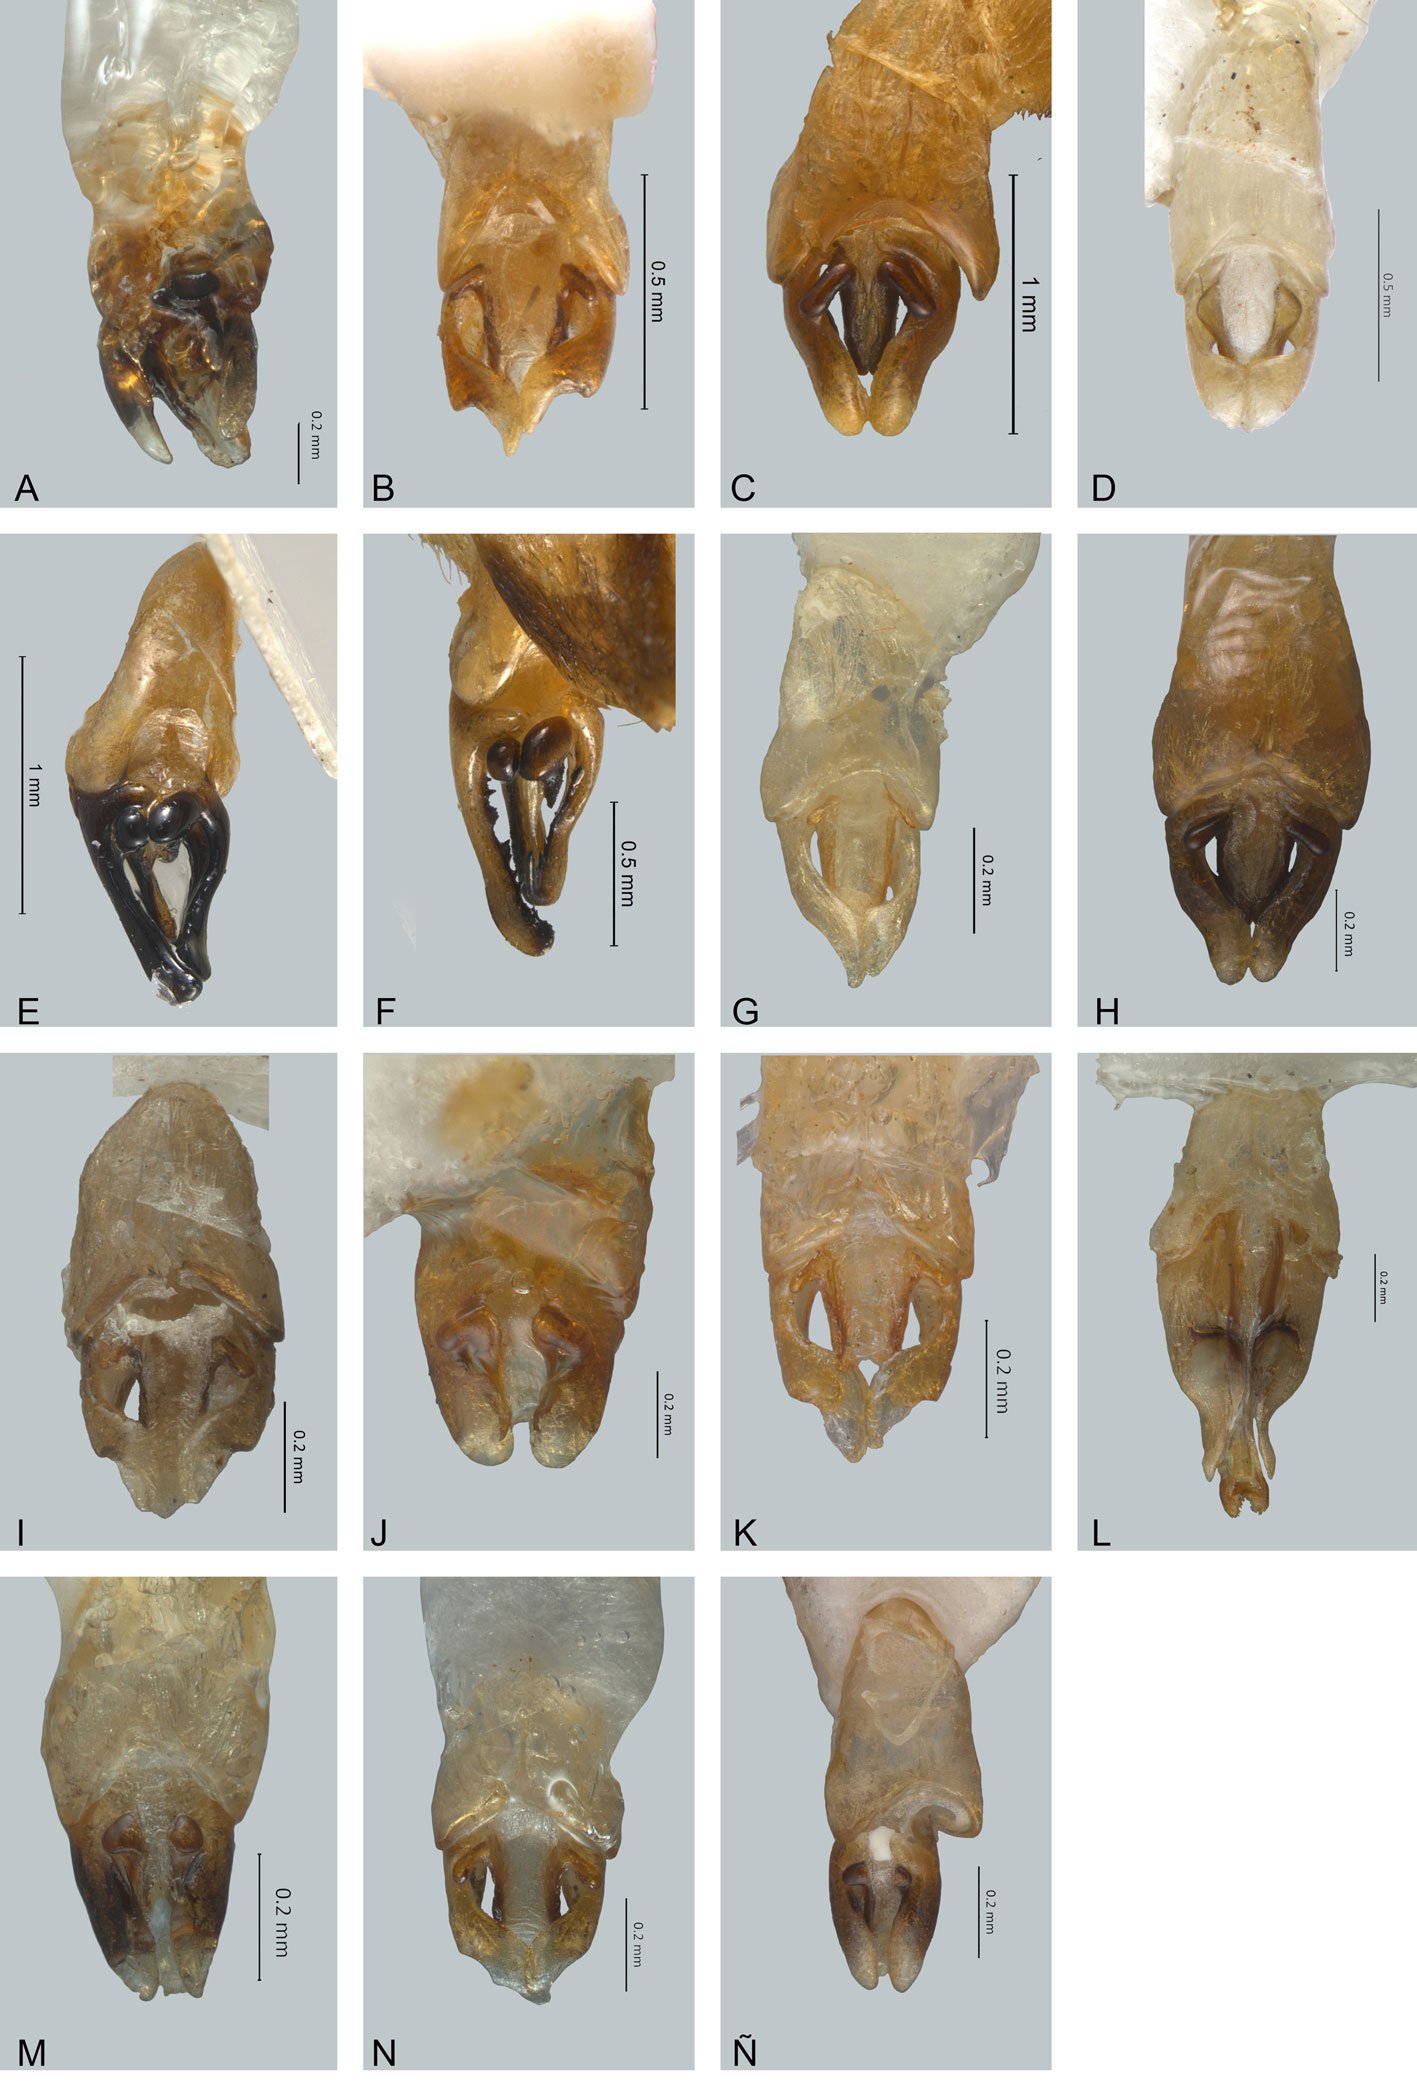
Macho. Talla: largo 6.19 mm, ancho 1.78 mm. Cuerpo ovoide, color castaño, mancha negra del pronoto, casi paralela, élitros marrones, con bandas amarillas marginales y suturales; aparato luminoso presente en esternitos 5-6, más largos que precedentes, sin puntuaciones laterales, borde posterior del 7 cóncavo, 8 triangular; lóbulos laterales del edeago bifurcados, lóbulo medio tubular y curvado (figs. 7A, 8A, 9A).
*Photinus advenus Olivier, 1907. En Zaragoza-Caballero, López-Pérez et al. (2023)
Distribución: Michoacán, Oaxaca, San Luis Potosí y Veracruz.
Photinus affinis Gorham, 1880
Ellychnia affinis (Gorham, 1880)
Macho. Talla: largo 7 mm. Cuerpo negro opaco, pronoto rosáceo, con márgenes laterales blanquecinos, disco con mancha negra triangular, ápice cercano a margen anterior, en algunos especímenes una mancha carmín a cada lado de mancha negra; esternitos 7 y 8 con margen posterior blanquecino y 6 con el margen posterior ligeramente sinuado.
Distribución: México: Veracruz.
Photinus albicauda Gorham, 1881
Macho. Talla: largo 10-13 mm. Cuerpo ovoide, negro opaco, pronoto alargado, ojival, de color rosa, con un surco amarillento y una banda ancha sobre el disco; antenas largas, alcanzando la mitad del cuerpo; pro y mesofémures amarillentos; borde posterior del pigidio sinuado; últimos esternitos blancos.
Distribución: México: Veracruz.
Photinus aldretei Zaragoza-Caballero, 1996
Figs. 5B, 6B, 7B, 8B, 9B
Macho. Talla: largo 15.74, ancho 6.57. Espacio interocular plano, con sedas gruesas procumbentes; antenas largas alcanzando tercer esternito; clípeo transverso, piloso, con borde anterior bilobado; labro membranoso; último artejo de palpos maxilares más grande que los anteriores juntos; último artejo de palpos labiales securiforme, más largo que ancho; pronoto más ancho que largo, semicircular, ángulos posteriores casi rectos, disco convexo, lados inflexionados; élitros menos de 4 veces tan largos como anchos, más o menos paralelos, ligeramente convexos, superficie punteada, con pilosidad procumbente de 2 tipos; esternito 5 y 6 más largos que los anteriores, con puntuaciones estigmatiformes; edeago (figs. 7B, 8B, 9B) con pieza basal asimétrica, lóbulos laterales en forma de S con el ápice transparente; lóbulo medio ancho, corto, con excrecencias dorsobasales pequeñas y desiguales, orificio medio terminal.
Distribución: México: Veracruz.
Photinus ampliatus Olivier, 1907
Photinus latiusculus Gorham, 1881
Macho. Talla: largo 7.5-8.0 mm. Cuerpo ovoide, muy blando; pronoto frontalmente angosto, acanalado, con una banda central negra y manchas de color rosa a los lados, margen lateral oscuro; élitros negro-grisáceo, ligeramente pubescentes; antenas largas, angostas, alcanzando la mitad del abdomen; esternitos con el borde posterior blanquecino, los 2 últimos y el pigidio blancos.
Distribución: México: Veracruz.
*Photinus anagabrielae Zaragoza-Caballero y Gutiérrez-Carranza en Zaragoza-Caballero et al. (2020). En Zaragoza-Caballero et al. (2020).
Distribución: México: Puebla. Nuevo registro: México: Veracruz.
Photinus albolimbatus Gemminger y Harold, 1869: 1641
Photinus albolimbatus Gemminger, 1870: 119
Photinus sturmii Gorham, 1881: 43
Photinus ivanovitschi Zaragoza-Caballero y Zurita-García, 2020 en Pérez-Hernández et al. 2022
Photinus ivanovitschi Zaragoza-Caballero, Zurita-García et al. (2023), nombre innecesario de remplazo, syn. nov.
En Zaragoza-Caballero et al. (2020) y Zaragoza-Caballero, López-Pérez et al. (2023).
Distribución: Ciudad de México, Durango, Hidalgo, Oaxaca, Puebla y Veracruz.
Comentarios taxonómicos
Zaragoza-Caballero, Zurita-García et al. (2023) establecieron el nombre de Photinus ivanovitschi para Ellychnia albilatera Motschulsky, 1853; sin embargo, en 1870 Gemminger ya había asignado el nombre nuevo de Photinusalbolimbatus para E. albilatera Motschulsky, debido a que el nombre estaba pre-ocupado por Photinusalbilatera (Gyllenhall, 1817). Gemminger y Harold (1869) consideraron al género Ellychnia Blanchard, 1845 como sinónimo de Photinus Laporte, 1833, Zaragoza-Caballero, Zurita-García et al. (2023) confirmaron esta sinonimia. Debido a lo anterior el nombre propuesto por Zaragoza-Caballero, Zurita-García et al. (2023) no era requerido, por lo que se propone el restablecimiento de Photinus albolimbatus Gemminger, 1870 comb. rest. y se propone a P. ivanovitschi Zaragoza-Caballero et al. como nuevo sinónimo.
Photinus alvarezi Zaragoza Caballero y Cifuentes-Ruiz, sp. nov.
Macho. Talla: largo 17.6 mm, ancho 6 mm. Color ambarino con excepción del pronoto y parte de élitros, con franjas castaño oscuro; disco del pronoto con 2 máculas amarillas laterales a mancha central castaño; procoxas, metacoxas y fémures marrones claro; aparato luminoso ocupando esternitos 5-6. Cabeza: espacio interocular (1.1 mm), cóncavo, paralelo, integumento brillante, liso y piloso; frente vertical, distancia interantenal (0.3 mm) igual de ancha que fosita antenal (0.3 mm); ojos finamente facetados, esféricos, prominentes, más largos (1.5 mm) que anchos (1 mm); antenas filiformes (8.15 mm), 2.4 veces más largas que pronoto, sobrepasa borde posterior del metaesterno, escapo alcanzando 1.2 mm de longitud, claviforme, tan largo como los 2 siguientes antenitos juntos, segundo corto (0.25 mm), del tercero al décimo de 0.7 mm, undécimo alcanza 0.8 mm; sutura frontoclipeal membranosa, cóncava; clípeo trapezoidal, borde anterior cóncavo, superficie con grandes sedas irregularmente distribuidas; mandíbulas falcadas, esbeltas, angularmente arqueadas; palpómero maxilar apical securiforme; palpómero labial securiforme. Tórax: pronoto más ancho (4.81 mm) que largo (3.45 mm), semicircular, bordes laterales casi paralelos, borde posterior casi recto, ángulos posteriores rectos, disco convexo, explanaciones laterales evidentes, con poros glandulares abundantes en parte anterior del disco del pronoto, en márgenes y borde posterior. Pilosidad abundante en explanaciones, procumbente y decumbente, escutelo espatulado, con borde posterior redondo, superficie brillante, punteado y pilosidad decumbente en márgenes laterales. Élitros largos, paralelos, 5 veces más largos (12.81mm) que anchos (2.54 mm), superficie opaca, integumento rugoso, pilosidad pequeña y procumbente; epipleura reducida; espiráculos respiratorios mesotorácicos transversos y tubulares; patas cortas, pro y mesopatas semejantes entre sí, mesotarsos ausentes, metapatas ligeramente más largas, fémures fusiformes, lateralmente aplanados, tibias ligeramente dilatadas en ápice, con borde externo crenulado, espinas tibiales 2-2-2 de longitud semejante (0.18 mm), tarsómeros lateralmente comprimidos, primer metatarsómero más largo (0.69 mm) que 2 siguientes juntos (0.60 mm), cuarto bífido, cubriendo parte del quinto, uñas simples. Abdomen: largo del esternito 1 de 1.06 mm, 2-4 de 1.25-0.93 mm, presentan parte media del borde posterior recta y ángulos posteriores casi rectos, 5 y 6 de 1.04 mm con poros estigmatiformes, parte media del borde posterior emarginada y ángulos posteriores romos, esternito 7 de 1.86 mm con borde posterior escotado y ángulos posteriores redondos y esternito 8 de 0.93 mm, ojival, con superficie excavada, y borde posterior romo; pigidio con borde posterior redondeado; edeago (figs. 7C, 8C, 9C) con pieza basal simétrica, casi de la misma longitud (0.83 mm) que lóbulos laterales (0.80 mm), con borde posterior escotado, lóbulo medio cónico, con superficie dorsal membranosa, integumento lateral chagrinado y esclerosado, porción apical fuertemente hendida, la superficie ventral con base esclerosada y parte apical membranosa, orificio medio abierto apicalmente, excrecencias dorso basales simétricas, como lóbulos oblicuos y divergentes, lóbulos laterales simétricos, en forma de “S”, con ápice lúteo, más largos que lóbulo medio, gruesos en vista lateral, sin modificaciones para la recepción de las excrecencias del lóbulo medio. Hembra desconocida.
Resumen taxonómico
Etimología. El nombre se eligió para honrar la memoria de José Luis Álvarez Flores, referente de la conservación del mono aullador en el sureste de México.
Material examinado. Holotipo macho: México, Tabasco, Campo experimental
Macho. Talla: largo 14.00 mm, ancho 4.54 mm. Color negro, a excepción del ápice y lados del pronoto cremosos; sin aparato luminoso. Cabeza: espacio interocular (1.08 mm), plano, divergente, integumento brillante, liso, con diminutas sedas; frente vertical, distancia interantenal (0.15 mm), más angosta que fosita antenal (0.46 mm); ojos finamente facetados, semiesféricos, más largos (0.52 mm) que anchos (0.37 mm); antenas ligeramente serradas, largas, escapo alcanzando 0.70 mm de longitud, cilíndrico, más largo que 2 siguientes antenitos juntos, segundo corto (0.21 mm), tercero y cuarto de 0.41 mm, del quinto al décimo de 0.52 mm, undécimo alcanza 0.60 mm; sutura frontoclipeal membranosa; clípeo transverso, superficie gruesamente punteada, borde anterior convexo, con sedas largas y erectas; mandíbulas falcadas; con sedas basales; palpómero maxilar apical fusiforme, robusto; palpómero labial securiforme. Tórax: pronoto poco más ancho (3.91 mm) que largo (3.00 mm), ojival, borde posterior recto, ángulos posteriores romos, lados ampliamente explanados, con poros glandulares ordenados al margen, más abundantes en parte anterior del disco, superficie brillante, pilosidad decumbente; escutelo triangular, con el borde posterior obtuso, superficie opaca, pilosidad decumbente; élitros casi 5 veces más largos (11.00 mm) que anchos (2.27 mm), con 2 estrías cerca de la sutura, superficie rugosamente punteada, opaca, con 2 tipos de pilosidad decumbente, una larga y erecta, otra muy pequeña; epipleura angosta; espiráculos respiratorios mesotorácicos no tubulares; patas cortas, pro y mesopatas semejantes entre sí, las metapatas un poco más largas, fémures casi fusiformes, tibias acanaladas, apicalmente dilatadas, borde externo no crenulado, espinas tibiales 2-2-2 de longitud subigual (0.13 mm), tarsómeros lateralmente comprimidos, primer metatarsómero más largo (0.74 mm) que 2 siguientes juntos (0.63 mm), cuarto bífido, cubriendo parte del quinto, uñas simples. Abdomen: esternito 1 de 1.16 mm, esternito 2 de 1.39 mm, esternito 3 de 0.83 mm, esternito 4 de 0.93 mm, presentan parte media del borde posterior ondulada y ángulos posteriores rectos, esternito 5 de 0.69 mm y 6 de 0.60 mm sin poros estigmatiformes, parte media del borde posterior ligeramente ondulados y ángulos posteriores romos, esternito 7 de 0.46 mm con borde posterior mucronado y ángulos posteriores redondos, y esternito 8 de 1.30 mm, espatulado, con terguitos apicales superpuestos; edeago (figs. 7D, 8D, 9D) con pieza basal simétrica, tan larga (1.27 mm) como los lóbulos laterales, éstos modificados para la recepción de las excrecencias dorso basales, lóbulo medio cilíndrico, tan largo como los lóbulos laterales, excrecencias largas, cilíndricas, divergentes y basalmente cercanas. Hembra desconocida.
Resumen taxonómico
Etimología. Photinus asiainae, está dedicado a la entusiasta coleopteróloga Julieta Asiain estudiosa de la familia Staphylinidae.
Material examinado. Holotipo macho. México: Tamaulipas: Rancho del Cielo, Mpio. G. Farias, 17-V-1981, alt. 1,188 m snm. M. L. Castillo col. | COL.TIP-03946 | Paratipos. Siete machos. Uno con los siguientes datos: México: Tamaulipas: Rancho del Cielo, Mpio. G. Farias, 17-V-1981, alt. 1,188 m snm. Bosque Mesófilo. M. L. Castillo col. | COL.TIP-03947. | Dos con los siguientes datos: México: Tamaulipas: El Cielo, 25-IV-1982, 1,080 m snm, T. Luz. M. A. Morón, col. | COL.TIP-03948-49. | Uno con los siguientes datos: México: Tamaulipas: El Cielo, 28-IV.1982, 1,080 m snm, T. Luz. M. A. Morón, col. M. Hist. N. Cd. Méx. | COL.TIP-03950. | Tres con los siguientes datos: México: Tamaulipas: El Cielo, 26-V-1982, 1,080 m snm, col. diurna. R. Terrón, col. M. Hist. N. Cd. Méx. | COL.TIP-03951-53.
Photinus chaaci Zaragoza-Caballero y González-Ramírez, sp. nov.
Macho. Talla: largo 10.27 mm, ancho 4.08 mm. Color castaño oscuro, con excepción del disco pronotal con 2 manchas rojizas a cada lado, sutura elitral, márgenes laterales de élitros, coxas, trocánter, profémur que son ambarinos; aparato luminoso ocupando superficie de los esternitos 5-6, con fotocitos distribuidos regularmente debajo del tegumento de superficie media de esternitos 4 y 7. Cabeza: espacio interocular (0.82 mm) plano, convergente, integumento brillante, chagrinado y ligeramente piloso; frente vertical, distancia interantenal (0.12 mm), más angosta que lo ancho de la fosita antenal; ojos finamente facetados, esféricos, prominentes, ligeramente más largos (0.46 mm) que anchos (0.41 mm); antenas filiformes largas, 1.7 veces más largas que pronoto, alcanzando borde posterior del metaesterno, escapo alcanzando 0.58 mm de longitud, claviforme, un poco más corto que 2 siguientes antenitos juntos, segundo corto (0.26 mm), tercero al décimo de 0.36 mm, undécimo de 0.43 mm; sutura frontoclipeal membranosa, cóncava; clípeo trapezoidal, borde anterior cóncavo, superficie con grandes sedas irregularmente distribuidas; mandíbulas falcadas, esbeltas, angularmente arqueadas; palpómero maxilar apical securiforme; palpómero labial securiforme. Tórax: pronoto más ancho (3.36 mm) que largo (1.91 mm), semicircular, bordes laterales paralelos, borde posterior recto, ángulos posteriores rectos, disco convexo, explanaciones laterales evidentes, con poros glandulares en márgenes, más abundantes en parte anterior y posterior, superficie brillante, pilosidad escasa, decumbente; escutelo espatulado, con borde posterior redondo, superficie brillante, punteado y pilosidad decumbente; élitros largos, paralelos, 4 veces más largos(8.36 mm) que anchos (2.04 mm), superficie opaca, integumento rugoso, pilosidad pequeña y procumbente; epipleura reducida; espiráculos respiratorios mesotorácicos transversos y tubulares; patas cortas, pro y mesopatas semejantes entre sí, metapatas ligeramente más largas, fémures fusiformes, lateralmente aplanados, tibias ligeramente dilatadas al ápice, con borde externo crenulado, espinas tibiales 2-2-2 de longitud semejante (0.14 mm), tarsómeros lateralmente comprimidos, primer metatarsómero más largo (0.40 mm) que los 2 siguientes juntos (0.28 mm), cuarto bífido, cubriendo parte del quinto, uñas simples. Abdomen: largo del esternito 1 de 0.57 mm, 2-4 de 0.51 mm, presentan parte media del borde posterior recta y ángulos posteriores casi rectos, 5 y 6 de 0.85 mm con poros estigmatiformes, parte media del borde posterior emarginada y ángulos posteriores romos, esternito 7 de 0.40 mm con borde posterior escotado y ángulos posteriores redondos y esternito 8 de 0.55 mm, ojival, con la superficie excavada, y borde posterior romo; pigidio con borde posterior redondeado; edeago (figs. 7E, 8E, 9E) con pieza basal simétrica, más larga (0.50 mm) que lóbulos laterales (0.44 mm), con borde posterior escotado, lóbulo medio cónico, con superficie dorsal membranosa, integumento lateral chagrinado y esclerosado, porción apical fuertemente hendida, superficie ventral con base esclerosada y parte apical membranosa, orificio medio abierto apicalmente, excrecencias dorso basales simétricas, casi transversales y separadas, como lóbulos alargados y rectos, lóbulos laterales simétricos, en forma de “S”, con ápice lúteo, más largos como lóbulo medio, angostos en vista lateral, sin modificaciones para la recepción de las excrecencias del lóbulo medio. Hembra desconocida.
Resumen taxonómico
Etimología. El nombre hace referencia al dios maya Chaac conocido como dios de la lluvia, el rayo, el relámpago y el agua, debido a que el material tipo se recolectó en las ruinas El Hormiguero y en donde se encuentran mascarones del dios Chaac.
Material examinado. Holotipo macho. México: Campeche: Ruinas el Hormiguero, Calakmul-Campeche, 07-V-1997, Col. A. Ibarra. | Photinus sp. (Laporte, 1833) | Colección del Instituto de Biología, UNAM. México, D.F. | CQR. 51669 | COL.TIP-03954. Paratipos. Tres machos. Uno con los mismos datos del holotipo, CQR. 51658 | COL.TIP-03955. Dos con los siguientes datos: México: Campeche: Ruinas el Hormiguero, Calakmul-Campeche, 28-05-2001, Col. A. Ibarra. | Photinus sp. (Laporte, 1833) | Colección del Instituto de Biología, UNAM. México, D.F. | CQR. 51663 y 51664 | COL.TIP-03956-57.
Photinus chantzinae Zaragoza-Caballero y Cifuentes-Ruiz, sp. nov.
Macho. Talla: largo 10.27 mm, ancho 3.82 mm. Color negro, con excepción del pronoto con 2 manchas rosas a cada lado y una franja central oscura; procoxas, metacoxas y fémures marrones oscuro; aparato luminoso ocupando esternitos 7-8. Cabeza: espacio interocular (0.6 mm) cóncavo, paralelo, integumento brillante, liso y piloso; frente vertical, distancia interantenal (0.09 mm) una tercera parte de fosita antenal (0.27 mm); ojos finamente facetados, esféricos, prominentes, más largos (0.38 mm) que anchos (0.3 mm); antenas filiformes (5.36 mm), 2.9 veces más largas que el pronoto, sobrepasa borde posterior del metaesterno, escapo alcanzando 0.46 mm de longitud, claviforme, 2 veces el segundo antenito (0.23 mm), del cuarto al décimo de 0.51 mm, el undécimo alcanza 0.69 mm; sutura frontoclipeal membranosa, cóncava; clípeo trapezoidal, borde anterior cóncavo superficie con grandes sedas irregularmente distribuidas; mandíbulas falcadas, esbeltas, angularmente arqueadas; palpómero maxilar apical securiforme; palpómero labial securiforme. Tórax: pronoto más ancho (2.82 mm) que largo (1.82 mm), semicircular, bordes laterales casi paralelos, borde posterior casi recto, ángulos posteriores rectos, disco convexo con surco central, explanaciones laterales evidentes, con poros glandulares abundantes en parte anterior del disco del pronoto, en márgenes y borde posterior. Pilosidad abundante en explanaciones, procumbente y decumbente, escutelo espatulado, con borde posterior redondo, superficie brillante, punteado y pilosidad decumbente en márgenes laterales; élitros largos, paralelos, 4.4 veces más largos (8.45 mm) que anchos (1.91 mm), superficie opaca, integumento rugoso, pilosidad pequeña y procumbente; epipleura reducida¸ espiráculos respiratorios mesotorácicos transversos y tubulares; patas cortas, pro y mesopatas semejantes entre sí, mesotarsos ausentes, las metapatas ligeramente más largas, fémures fusiformes, lateralmente aplanados, tibias ligeramente dilatadas al ápice, con borde externo crenulado, sin espinas tibiales, tarsómeros lateralmente comprimidos, primer metatarsómero más largo (0.53 mm) que 2 siguientes juntos (0.41 mm), cuarto bífido, cubriendo parte del quinto, uñas simples. Abdomen: esternito 1 de 0.46 mm, 2-4 de 0.46-0.69 mm, presentan parte media del borde posterior recta y ángulos posteriores casi rectos, 5 y 6 de 0.51-0.60 mm, esternito 7 de 0.27 mm con borde posterior escotado y ángulos posteriores redondos y esternito 8 de 0.30 mm, ojival, con superficie excavada y borde posterior romo; pigidio con borde posterior redondeado; edeago (figs. 7F, 8F, 9F) sin pieza basal, lóbulos laterales (0.74 mm) con lóbulo medio cónico, con superficie dorsal membranosa e integumento lateral rugoso, porción apical fuertemente hendida, superficie ventral con base esclerosada y parte apical membranosa, orificio medio abierto apicalmente, excrecencias dorsobasales simétricas, transversales y separadas como lóbulos cortos, lóbulos laterales simétricos, en forma de “S”, con ápice blanco, más largos que lóbulo medio, angostos en vista lateral, sin modificaciones para la recepción de excrecencias. Hembra desconocida.
Resumen taxonómico
Etimología. El nombre se eligió para honrar la memoria de Lorenza Chantzin Paxacuasingo, mujer nahua originaria de Guerrero, defensora de derechos humanos ambientales y del territorio, activista en contra de las actividades mineras.
Material examinado. Holotipo macho. México: Veracruz. Dos Puentes 4 km N Huatusco 19º11’033” N, 96º 57’55” O, 10-VII-2000. Col. S. Zaragoza C. | CQR 52032 | COL.TIP-03958. Paratipo macho. Veracruz, Jilotepec, La Concepción, El Pueblito Garbanzal, 19º36’3.06” N, 96º54’33.09” O, 20-X-2015 O, alt. 1,300 m snm | COL.TIP-03959.
Photinus choonghayi Gutiérrez-Carranza y Zaragoza-Caballero, sp. nov.
Macho. Talla: largo 15.8 mm, ancho 6 mm. Cuerpo casi paralelo; color castaño oscuro a excepción de: disco del pronoto amarillo crema, con una banda longitudinal castaño de forma astada y esbozos de máculas laterales que posiblemente fueron rojizas; uñas ambarinas. Sin aparato luminoso. Cabeza. Pequeña, poco más de ⅓ (1.6 mm) que lo ancho del pronoto (4.5 mm), totalmente cubierta; espacio interocular (1 mm) ligeramente cóncavo en su parte media, superficie chagrinada y espaciadamente pilosa; frente vertical; ojos finamente facetados, reducidos ⅓ de la longitud de cabeza, ovoides, en vista lateral más anchos (0.73 mm) que largos (0.53 mm); distancia interantenal menor (0.2 mm) que lo ancho de la fosita antenal (0.37 mm); antenas filiformes, cilíndricas y largas (8.38 mm), sobrepasa coxas posteriores, 3 veces más largas que pronoto (2.8 mm), escapo claviforme, más corto (0.73 mm) que 2 antenitos anteriores juntos (0.87 mm), segundo antenito corto (0.2 mm), tercero más corto que subsiguientes (0.67 mm), del cuarto al décimo de 0.83 mm y undécimo alcanza 0.97 mm; sutura frontoclipeal conspicua y membranosa, cóncava; clípeo trapezoidal con borde distal convexo, superficie con sedas largas irregularmente distribuidas; mandíbulas falcadas, esbeltas, angularmente arqueadas, con sedas en su base externa; labro membranoso, triangular; palpómero maxilar apical romboidal; palpómero labial securiforme. Tórax. Pronoto semicircular, más ancho (4.5 mm) que largo (2.8 mm), borde posterior cóncavo, ángulos posteriores agudos, disco convexo, explanaciones laterales anchas y acanaladas, con poros glandulares espaciadamente distribuidos con excepción de superficie medio-posterior, superficie brillante con pilosidad abundante y decumbente; escutelo espatulado con borde posterior convexo, superficie plana, chagrinada y con pilosidad abundante, decumbente; élitros ligeramente aovados, 4 veces más largos (13 mm) que anchos (3 mm), integumento chagrinado y rugosamente punteado, pilosidad decumbente de 2 tipos: una larga y otra muy corta e imbricada, epipleura ancha, limitada por una costilla ancha en base y que gradualmente disminuye al ápice; espiráculos respiratorios mesotorácicos esclerosados, orbiculares, tubulares y con base proyectada transversalmente; patas cortas y esbeltas, semejantes entre sí pero sucesivamente más largas: longitud de los profémures de 2.13 mm y las protibias de 2.17 mm, mesofémures de 2.47 mm y mesotibias de 2.63 mm, metafémures de 2.5 mm y metatibias de 2.9 mm, fémures fusiformes, lateralmente aplanados, tibias aplanadas y acanaladas, rectas, con el borde externo crenulado y el margen apical ondulado, espinas tibiales 1-2-2 de longitud semejante (0.12 mm), tarsómeros lateralmente comprimidos, primer metatarsómero tan largo (0.67 mm) como los 2 siguientes juntos (0.6 mm), el cuarto bífido con un cojinete de sedas ventrales, uñas simples. Abdomen: largo del esternitos 1-4 de 0.83 mm, presentan parte media del borde posterior recta y ángulos posteriores rectos, esternito 5 de 0.73 mm, parte media del borde posterior recta y ángulos posteriores romos, esternito 6 de 0.67 mm, parte media del borde posterior ligeramente emarginada y ángulos posteriores rectos, esternito 7 de 0.83 mm, la parte media del borde posterior emarginada y ángulos posteriores romos y esternito 8 de 1.33 mm, ojival, con superficie convexa y ápice redondo; terguitos 4 y 5 con proyecciones triangulares agudas en ángulos posteriores, pigidio prominente, distintamente rectangular, casi tan largo (2.13 mm) como ancho (2.27 mm), borde posterior truncado con parte media ligeramente emarginada y ángulos posteriores romos; edeago (figs. 7G, 8G, 9G) asimétrico y presenta una torsión sinistral; pieza basal más larga (2.06 mm) que lóbulos laterales (1 mm), margen posterior distintamente escotado; lóbulo medio largo (1.5 mm), cónico, superficie dorsal membranosa con un borde latero-dorsal esclerosado, de integumento irregular y crenulado y superficie ventral esclerosada de integumento glabro, excrecencias dorsobasales simétricas, conjuntas y proyectadas posteriormente, con forma de placas dorsales rectangulares, apicalmente poco dilatadas, orificio medio abierto apicalmente; lóbulos laterales asimétricos (1 mm), en vista lateral casi triangulares y con ápice romo, modificados para recepción de excrecencias, presentan superficie interna y borde dorsal crenulado e irregularmente dentado. Hembra desconocida.
Resumen taxonómico
Etimología. Especie dedicada a “Sonny” Wong Choong Hay. El nombre específico corresponde a la combinación del primer y segundo nombre. Género masculino. En reconocimiento a su labor realizada en favor de la conservación de las luciérnagas.
Material examinado. Holotipo macho. México: Veracruz: Xico, Los Pocitos, 19-VII-2021, 19°28’02” N, 97°05’51” O, 2,450 m snm, veg. sec. y bosq. Pinus/bosq. M.M. muy fragm., colecta diurna en hierbas, Col. E. Arriaga-V | COL.TIP-03960.
*Photinus congruus Chevrolat, 1834. En Zaragoza-Caballero et al. (2020).
Distribución: Chiapas, Oaxaca, Puebla, Quintana Roo y Veracruz.
Photinus cordovae Gorham, 1881
Ellychnia cordovae (Gorham, 1881)
Macho. Talla: largo 9-10 mm. Cuerpo ovoide, color negro, pronoto rojizo con una mancha negra basalmente ensanchada y con margen oscuro; élitros negros; sin aparato luminoso; esternitos 5-6, tan largos como los precedentes, sin puntuaciones laterales.
Distribución: México: Veracruz.
*Photinus corrusca (Linnaeus, 1767). En Zaragoza-Caballero et al. (2020, 2023).
Lampyris corrusca Linnaeus, 1767: 644
Distribución: Chiapas, Ciudad de México, Estado de México, Morelos, Oaxaca, Puebla, San Luis Potosí, Tlaxcala, Tamaulipas y Veracruz.
Photinus cuasicongruus Zaragoza-Caballero, 1996
Figs. 5H, 6H, 7H, 8H, 9H
Macho. Talla: largo 18.91 mm, ancho 8.29 mm. Cuerpo ovoide, color negro, mancha negra del pronoto basalmente ensanchada; élitros con bandas marginales y sobre disco; aparato luminoso presente en esternitos 5-6, tan largos como precedentes, con puntuaciones laterales, borde posterior del 7 cóncavo, 8 ojival; pieza basal del edeago simétrica, lóbulos laterales más cortos que lóbulo medio, éste con las excrecencias cortas y separadas (figs. 7H, 8H, 9H).
Distribución: México: Veracruz.
Photinus dhipaki Zaragoza-Caballero y López-Pérez, sp. nov.
Macho. Talla: largo 12.82 mm; ancho 4.36 mm. Color café, a excepción de: disco pronotal ambarino con una mancha central más oscura; coxas, trocánter y fémur, ambarinos; aparato luminoso ocupando esternitos 5-6. Cabeza: espacio interocular (0.82 mm) rugoso y cóncavo, convergente, integumento brillante, chagrinado y piloso; frente vertical, distancia interantenal (0.18 mm) menos amplia que ancho de la fosita antenal (0.16 mm); ojos finamente facetados, semiesféricos, prominentes, más largos (0.72 mm) que anchos (0.49 mm); antenas filiformes largas, 2 veces más largas que el pronoto, alcanza metatórax, escapo alcanzando 0.65 mm de longitud, cilíndrico, más corto que segundo y tercero juntos, segundo corto (0.2 mm), tercero al décimo de 0.54 mm, undécimo de 0.7 mm; sutura frontoclipeal, membranosa, triangular; clípeo transversal, borde anterior bilobado, superficie con grandes sedas; mandíbulas falcadas, angularmente arqueadas, con sedas; palpómero maxilar apical securiforme; palpómero labial cónico. Tórax: pronoto más ancho (3.91 mm) que largo (2.82 mm), un tanto ojival, bordes laterales casi paralelos en su mitad basal, borde posterior redondo, ángulos posteriores obtusos, disco convexo con un surco, lados explanados, con poros glandulares en margen posterior, superficie rugosa, pilosidad procumbente; escutelo espatulado, con borde posterior redondeado, superficie brillante, poco punteada y escasa pilosidad; élitros largos, más anchos en su parte media, más de 4 veces más largos (10 mm) que anchos (2.18 mm), superficie rugosa, opaca, pilosidad erecta; epipleura ancha; espiráculos respiratorios mesotorácicos no tubulares; patas largas, pro y mesopatas semejantes entre sí, las metapatas poco más largas, fémures fusiformes, tibias dilatadas al ápice, borde externo no crenulado, espinas tibiales 1-2-2, tarsómeros lateralmente comprimidos, primer metatarsómero más largo (0.54 mm) que 2 siguientes juntos (0.4 mm), el cuarto bífido cubriendo parte del quinto, uñas simples. Abdomen: esternito 1 de 0.69 mm, 2 de 0.81 mm, 3 y 4 de 0.92 mm, esternito 5 de 1.04 mm y 6 de 1.16 mm, sin puntuaciones estigmatiformes, borde posterior del esternito 6 casi recto, 7 de 0.46 mm convexo y 8 de 0.62 mm redondeado; edeago (figs. 7I, 8I, 9I) con pieza basal simétrica, más corta (0.2 mm) que lóbulos laterales (0.4 mm), con borde posterior cóncavo, lóbulo medio cilíndrico, poco esclerosado dorsal y ventralmente, cubierto por lóbulos laterales, excrecencias dorso basales como lóbulos pequeños, transversos, orificio medio apical, lóbulos laterales poco más largos que lóbulo medio, más anchos en la base en vista lateral, arqueados al ápice hacia la parte dorsal, sin modificaciones para la recepción de las excrecencias del lóbulo medio. Hembra desconocida.
Resumen taxonómico
Etimología. El nombre de la especie refiere a Dhipak, una de las deidades más importantes para los huastecos y hace referencia al muchacho divino y alma del maíz. El municipio Gómez Farías donde se colectó la especie se encuentra considerado dentro de la Huasteca Tamaulipeca.
Material examinado. Holotipo macho. México: Tamaulipas: Gómez Farias, Ejido El Azteca, 12-V-2007, Selva Baja, 242 m snm, 23°04’55” N, 99°09’41” O, Cols. H. Brailovsky, E. Barrera, y L. Cervantes | COL.TIP-03961.
Photinus escalanteae Zaragoza-Caballero y López-Pérez, sp. nov.
Macho. Talla: largo 10.27 mm, ancho 3.44 mm. Color café, a excepción de: disco pronotal ambarino con una mancha al centro más oscura y una mancha rojiza a cada lado de está; márgenes laterales de élitros ambarinos; coxas, trocánter y fémur, ambarinos; aparato luminoso ocupando esternitos 5-6. Cabeza: espacio interocular (0.62 mm), rugoso y cóncavo, paralelo, integumento brillante, chagrinado y piloso; frente vertical, distancia interantenal (0.12 mm) menos amplia que ancho de la fosita antenal (0.2 mm); ojos finamente facetados, esféricos, prominentes, más largos (0.72 mm) que anchos (0.48 mm); antenas filiformes largas, 2 veces más largas que pronoto, alcanza metatórax, escapo alcanzando 0.35 mm de longitud, cilíndrico, más corto que segundo y tercero juntos, segundo corto (0.14 mm), tercero 0.33 mm, cuarto 0.26 mm, del quinto al undécimo de 0.28 mm; sutura frontoclipeal, membranosa, triangular; clípeo transversal, borde anterior bilobado, superficie con sedas cortas; mandíbulas falcadas, angularmente arqueadas, con sedas; palpómero maxilar apical cónico; palpómero labial fusiforme. Tórax: pronoto más ancho (2.82 mm) que largo (2.09 mm), semicircular, bordes laterales semiparalelos en su parte anterior, borde posterior redondo, ángulos posteriores obtusos, disco convexo sin un surco, lados explanados, con poros glandulares en margen posterior y en parte anterior del disco, superficie lisa, pilosidad procumbente; escutelo espatulado, con borde anterior redondeado, superficie brillante, poco punteada y escasa pilosidad; élitros largos, más de 4 veces más largos (8.18 mm) que anchos (1.72 mm), superficie rugosa, opaca, pilosidad erecta; epipleura ancha; espiráculos respiratorios mesotorácicos no tubulares; patas largas, pro y mesopatas semejantes entre sí, metapatas poco más largas, fémures fusiformes, tibias dilatadas al ápice, borde externo crenulado, espinas tibiales 2-2-2 de longitud semejante, tarsómeros lateralmente comprimidos, primer metatarsómero (0.32 mm) más largo que 2 siguientes juntos (0.22 mm), cuarto bífido cubriendo parte del quinto, uñas simples. Abdomen: largo del esternito 1 de 0.18 mm y 2 de 0.25 mm, 3 y 4 de 0.25 mm, ángulos posteriores casi rectos, esternito 5 de 0.4 mm y 6 de 0.35 mm, con poros estigmatiformes, parte media del borde posterior ondulados y ángulos posteriores romos, esternito 7 de 0.25 mm con borde posterior escotado y ángulos posteriores redondos y esternito 8 de 0.1 mm, ojival, con superficie excavada, y borde posterior romo; edeago (figs. 7J, 8J, 9J) con pieza basal simétrica, más corta (0.15 mm) que lóbulos laterales (0.2 mm), con borde posterior cóncavo, lóbulo medio cónico, poco esclerosado dorsal y ventralmente, cubierto por lóbulos laterales, excrecencias dorso basales como lóbulos largos, horizontales, orificio medio apical, lóbulos laterales orientados transversalmente en su parte apical; anchos en vista lateral, sin modificaciones para la recepción de excrecencias del lóbulo medio. Hembra desconocida.
Resumen taxonómico
Etimología. El nombre hace referencia a Patricia Escalante Pliego, por su valiosa labor en la conservación de la guacamaya roja.
Material examinado. Holotipo macho. México: Veracruz: Laguna Sto. Domingo, 4 km NO Huatusco; 9-VII-2000, 49°09’50” N 97°00’26” O. Col. S. Zaragoza | CQR. 51670 | COL.TIP-03962.
Photinus estebani Zaragoza-Caballero y Pérez-Flores, sp. nov.
Macho. Talla: largo 4.64 mm, ancho 2.11 mm. Color castaño oscuro, a excepción de superficie del pronoto que es amarillo claro, disco pronotal con una banda longitudinal negra y 2 máculas rojizas a cada lado; sin aparato luminoso. Cabeza: espacio interocular (0.43 mm), cóncavo, integumento brillante, espaciadamente piloso; frente vertical, con puntos amplios y profundos; distancia interantenal (0.11 mm), tan amplia como lo ancho de la fosita antenal (0.11 mm); ojos finamente facetados, semiesféricos, prominentes, más largos (0.33 mm) que anchos (0.20 mm); antenas filiformes largas, 2 veces más largas que pronoto, sobrepasando borde posterior de primer esternito, escapo alcanzando 0.22 mm, claviforme, un poco más corto que 2 siguientes antenitos juntos, segundo corto (0.09 mm), tercero de 0.15 mm, del cuarto al noveno de 0.18 mm; sutura frontoclipeal, membranosa, cóncava; clípeo transverso, borde anterior recto, superficie con grandes sedas irregularmente distribuidas; mandíbulas falcadas, esbeltas, uniformemente arqueadas, con sedas largas; palpómero maxilar apical securiforme y robusto; palpómero labial securiforme. Tórax: pronoto más ancho (1.41 mm) que largo (0.67 mm), un tanto ojival, bordes laterales redondeados en su mitad basal, borde posterior ligeramente ondulado, ángulos posteriores un tanto agudos, disco convexo con un surco longitudinal medio, lados angostamente explanados, márgenes con poros glandulares distribuidos, superficie brillante, pilosidad escasa, decumbente; escutelo casi triangular, con borde posterior obtuso, superficie brillante, punteada y pilosidad decumbente; élitros largos, más de 6 veces más largos (4.08 mm) que anchos (0.93 mm), superficie rugosa, opaca, con pilosidad corta procumbente y sedas largas y erectas; epipleura reducida; espiráculos respiratorios mesotorácicos no tubulares; patas cortas, pro y mesopatas semejantes entre sí, metapatas más largas, fémures fusiformes, tibias aplanadas, un poco dilatadas al ápice, borde externo crenulado, sin espinas tibiales, tarsómeros lateralmente comprimidos, primer metatarsómero tan largo (0.18 mm) como 2 siguientes juntos (0.18 mm), cuarto bífido, cubriendo casi totalmente el quinto, uñas simples. Abdomen: largo del esternito 1 de 0.12 mm, 2 de 0.18 mm, 3 de 0.22, 4 de 0.26 mm, 3 y 4 presentan parte media del borde posterior ligeramente ondulada y ángulos posteriores casi rectos ángulos, esternito 5 de 0.30 mm y 6 de 0.32 mm, con parte media del borde posterior ligeramente emarginada y ángulos posteriores romos, sin puntuaciones estigmatiformes, esternito 7 de 0.25 mm con borde posterior emarginado y ángulos posteriores romos, esternito 8 de 0.37 mm, ojival, con la superficie cóncava y borde posterior redondeado; edeago (figs. 7K, 8K, 9K) con pieza basal simétrica, ligeramente más larga (0.23 mm) que lóbulos laterales (0.20 mm), con borde posterior cóncavo, lóbulo medio cilíndrico, con parte dorsal membranosa y ventral esclerosada, excrecencias dorso basales como lóbulos cortos, casi contiguas, orificio medio apical, lóbulos laterales más largos que el lóbulo medio, robustos en vista lateral reduciéndose hacia el ápice, sin modificaciones para recepción de las excrecencias del lóbulo medio. Hembra desconocida.
Resumen taxonómico
Etimología. El nombre específico es en honor al Sr. Esteban Berrones Benítez, notable y reconocido ornitólogo, amante de la naturaleza y defensor de la Reserva de la Biosfera El Cielo, Tamaulipas.
Material examinado. Holotipo macho. México: Veracruz: Zongolica, 11-VIII-74. | COL.TIP-03963.
Photinus gliscens Gorham, 1881
Figs. 5L, 6L, 7L, 8L, 9L
Macho. Talla: largo 18 mm. Cuerpo paralelo, color castaño, mancha del pronoto piriforme; élitros con bandas amarillas marginales y sobre el disco; aparato luminoso presente en esternitos 5-6, éstos más largos como los precedentes, con puntuaciones laterales, borde posterior del 7 cóncavo, del 8 espatulado; edeago (figs. 7L, 8L, 9L) con pieza basal simétrica, más larga que lóbulos laterales, éstos en forma de “S”, lóbulo medio cónico, excrecencias dorso basales largas, lobuladas y basalmente separadas.
Distribución: México: Chiapas, Oaxaca y Veracruz.
*Photinus guatemalae Gorham, 1880. En Zaragoza-Caballero et al. (2020).
Distribución: Guerrero, Hidalgo, Puebla y Veracruz.
Photinus homerogomezi Zaragoza-Caballero y Rodríguez-Mirón, sp. nov.
Macho. Talla: largo 12.82 mm, ancho 4.36 mm. Color castaño con excepción del margen lateral de élitros y márgenes del pronoto que son ambarinos, disco pronotal con 2 máculas rosas; procoxas, metacoxas y fémures ambarinos; aparato luminoso ocupando esternitos 5-6. Cabeza: espacio interocular (0.65mm), cóncavo, paralelo, integumento brillante, chagrinado y piloso; frente vertical, distancia interantenal más angosta (0.12 mm) que lo ancho de fosita antenal (0.14 mm); ojos finamente facetados, semiesféricos, prominentes, más largos (0.82 mm) que anchos (0.77 mm); antenas filiformes (6.3 mm), 2.1 veces más largas que pronoto, sobrepasando las mesocoxas, escapo alcanzando 0.9 mm de longitud, claviforme, más largo que 2 siguientes antenitos juntos, segundo corto (0.25 mm), tercero 0.63 mm, cuarto, quinto y octavo 0.66 mm; sutura frontoclipeal, membranosa, arqueada; clípeo redondeado, con sedas irregularmente distribuidas; mandíbulas falcadas, delgadas con sedas en su borde externo; palpómero maxilar apical securiforme; el labial casi triangular. Tórax: pronoto más ancho (3.82 mm) que largo (3.00 mm), subcircular, borde posterior ligeramente sinuado, ángulos posteriores obtusos, disco convexo, con parte media cóncava, lados cóncavos, explanados, con poros glandulares en los márgenes, más abundantes anteriormente, superficie brillante, pilosidad procumbente; escutelo triangular, con borde posterior ligeramente redondeado, superficie brillante, escasamente punteada, con pilosidad procumbente; élitros largos casi paralelos, 4.46 veces más largos (9.73 mm) que anchos (2.18 mm), superficie rugosa, pilosidad decumbente; epipleura ancha y corta; espiráculos respiratorios mesotorácicos tubulares; patas cortas, esbeltas pro y mesopatas semejantes entre sí, metapatas más largas, fémures elongados, tibias aplanadas ligeramente surcadas, un poco dilatadas al ápice, borde externo y margen apical entero, sin espinas tibiales, tarsómeros lateralmente comprimidos, primer metatarsómero tan largo (0.45 mm) como los 2 siguientes juntos (0.45 mm), el cuarto completo, uñas simples. Abdomen: esternito 1 de 0.75 mm, 2 de 0.56 mm, el 3 de 0.50 mm, 4 de 0.65 mm, borde posterior del cuarto ligeramente emarginado, esternito 5 de 1.00 mm con borde posterior ligeramente escotado y 6 de 1.1 mm con poros estigmatiformes, parte media del borde posterior emarginado y ángulos posteriores romos, esternito 7 de 1.5 mm con el borde posterior emarginado y ángulos posteriores redondos y esternito 8 de 0.87 mm, ojival, con superficie excavada, y borde posterior romo; pigidio con borde posterior romo; edeago (figs. 7M, 8M, 9M ) lóbulos laterales (0.49 mm); lóbulo medio (0.34 mm) subcónico, sin sobrepasar los lóbulos laterales, con la parte ventral esclerosada, excrecencias dorso basales subcilíndricas alargadas, orificio medio apical, lóbulos laterales en vista lateral subtriangulares, región apical fuertemente redondeados, ventralmente sin cubrir el lóbulo medio, en la región apical contiguos, sin modificaciones para la recepción de las excrecencias del lóbulo medio. Hembra desconocida.
Resumen taxonómico
Etimología. Esta especie se nombra en honor al Ing. Homero Gómez González, por su incansable lucha para proteger a la mariposa monarca en los bosques de Michoacán. El nombre específico es formado mediante la combinación del nombre y primer apellido del Ing. Homero.
Material examinado. Holotipo macho. México: Veracruz, Córdoba, Cuauhtémoc, 16-18-VI-1996, alt. 940 m. Luz. Col. Delgado. | CQR. | COL.TIP-03964.
*Photinus hymenodrilus Zaragoza-Caballero y Gutiérrez-Carranza en Zaragoza-Caballero et al. 2020
Distribución: México: Puebla. Nuevo registro: México: Campeche, Veracruz.
Photinus janisae Zaragoza-Caballero y Rodríguez-Mirón, sp. nov.
Macho. Talla: largo 5.22 mm, ancho 1.48 mm. Color castaño con excepción del pronoto y márgenes elitrales laterales que son ambarinos, disco con una franja central castaño media y una mácula rosa; aparato luminoso ocupando los esternitos 5-6. Cabeza: espacio interocular (0.36 mm), llano, divergente, integumento brillante, chagrinado y piloso; frente vertical, distancia interantenal más angosta (0.12 mm) que ancho de la fosita antenal (0.14 mm); ojos finamente facetados, semiesféricos, prominentes, más largos (0.46 mm) que anchos (0.36 mm); antenas filiformes (2.1 mm), 1.5 veces más largas que pronoto, apenas sobrepasando mesocoxas, escapo alcanzando 0.30 mm de longitud, claviforme, más corto que los 2 siguientes antenitos juntos, segundo corto (0.12 mm), del tercero al quinto de 0.21 mm, sexto de 0.16 mm, del séptimo al undécimo alcanza 0.19 mm; sutura frontoclipeal, membranosa, arqueada; clípeo redondeado, superficie con sedas irregularmente distribuidas; mandíbulas falcadas, delgadas con sedas en su borde externo; palpómero maxilar apical securiforme; palpómero labial casi triangular. Tórax: pronoto más ancho (1.43 mm) que largo (1.22 mm), ojival, borde posterior ligeramente sinuado, ángulos posteriores obtusos, disco convexo, con parte media cóncava, lados cóncavos, explanados, con poros glandulares en márgenes, más abundantes en parte anterior, superficie brillante, pilosidad procumbente; escutelo triangular, con borde posterior ligeramente redondeado, superficie brillante, escasamente punteada y pilosidad procumbente; élitros largos casi paralelos, 3.07 veces más largos (4 mm) que anchos (1.43 mm), superficie rugosa, brillante, pilosidad decumbente; epipleura ancha y corta; espiráculos respiratorios mesotorácicos tubulares; patas cortas, esbeltas pro y mesopatas semejantes entre sí, metapatas más largas, fémures elongados, pro y mesofémur aplanados, tibias aplanadas ligeramente surcadas, un poco dilatadas al ápice, borde externo y margen apical entero, sin espinas tibiales, tarsómeros lateralmente comprimidos, primer metatarsómero tan largo (0.25 mm) como los 2 siguientes juntos (0.25 mm), cuarto completo, uñas simples. Abdomen: largo del esternito 1 y 2 de 0.50 mm, 3 y 4 de 0.20 mm, borde posterior del cuarto ligeramente emarginado, esternito 5 de 0.55 mm con borde posterior escotado, 6 de 0.65 mm sin poros estigmatiformes, parte media del borde posterior ligeramente emarginado y ángulos posteriores romos, esternito 7 de 0.15 mm con borde posterior emarginado y ángulos posteriores redondos, esternito 8 de 0.30 mm, ojival, con superficie excavada, y borde posterior romo; pigidio con borde posterior romo; edeago (figs. 7N, 8N, 9N ) con pieza basal simétrica, más corta (0.22 mm) que lóbulos laterales (0.34 mm); lóbulo medio cilíndrico, no sobrepasando lóbulos laterales, parte dorsal y ventral esclerosada, excrecencias dorso basales alargadas ligeramente aplanadas, orificio medio apical, lóbulos laterales en vista lateral subtriangulares, región apical fuertemente redondeados, ventralmente cubriendo el lóbulo medio, región apical contigua, sin modificaciones para la recepción de excrecencias del lóbulo medio. Hembra desconocida.
Resumen taxonómico
Etimología. Esta especie se nombra en honor a Janis Quiahuitl Vigil Razo, bióloga entusiasta interesada en los escarabajos.
Material examinado. Holotipo macho. México: Veracruz, 10 mi. Pánuco, 22-VI-1964 | Col. A.G. Raske | Photinus sp. 34 ♂ (Laporte, 1833) | Colección del Instituto de Biología. UNAM. México, D.F | CQR. | COL.TIP-03965.
Macho. Talla: largo 7.25 mm, ancho 2.26 mm. Espacio interocular casi paralelo, ligeramente plano, piloso, sedas procumbentes; antenas filiformes, casi planas, largas, alcanzando el borde posterior del primer esternito; clípeo transverso, con borde anterior recto, palpos maxilares con último artejo securiforme, robusto, más corto que 2 precedentes juntos, ápice truncado; pronoto más ancho que largo, con ángulos posteriores agudos, borde posterior biexcavado, disco casi plano; élitros alargados, paralelos, casi 5 veces más largos que anchos, casi planos, superficie con pilosidad procumbente, de 2 tipos; esternito 5 y 6 tan largos como los anteriores, puntuaciones estigmatiformes poco marcadas, borde posterior de los esternitos 5-7 excavados; edeago (7Ñ, 8Ñ, 9Ñ) con la pieza basal simétrica, lóbulos laterales bifurcados, parte dorsal alargada y delgada, ventral corta, ancha y de ápice redondeado, lóbulo medio corto, tubular; orificio medio casi redondo y terminal.
Distribución: México: Veracruz.
Photinus lekoalloios Zaragoza-Caballero, 1996
Figs. 5O, 6O, 7O, 8O, 9O
Macho. Talla: largo 6.34 mm, ancho 2.16 mm. Cuerpo ovoide, color negro, mancha negra del pronoto estrecha en medio; élitros con una banda marginal y sutural; aparato luminoso presente en los esternitos 5-6, más largos que los precedentes, sin puntuaciones laterales, borde posterior del 7 cóncavo, del 8 espatulado; edeago robusto (figs. 7O, 8O, 9O), pieza basal más larga que lóbulos laterales; lóbulo medio asimétrico, éste con las excrecencias cortas, anchas y cercanas.
Distribución: México: Chiapas y Veracruz.
Photinus mictlantecuhtli Zaragoza-Caballero y Domínguez-León, sp. nov.
Macho. Talla: largo 6.34 mm, ancho 2.34 mm. Color pardo; procoxas, metacoxas y fémures cafés; aparato luminoso ocupando esternitos 5-7. Cabeza: espacio interocular (0.44 mm), cóncavo, paralelo, integumento brillante, chagrinado y piloso; frente vertical, distancia interantenal (0.07 mm) un poco más grande que el ancho de fosita antenal (0.12 mm); ojos finamente facetados, esféricos, prominentes, más largos (0.51 mm) que anchos (0.36 mm); antenas filiformes (3.05 mm), 3 veces más largas que pronoto, sobrepasa borde posterior del metaesterno, escapo alcanzando 0.42 mm de longitud, claviforme, tan largo como los 2 siguientes antenitos juntos, segundo corto (0.15 mm), del quinto al décimo de 0.27, undécimo un poco más grande (0.29 mm); sutura frontoclipeal membranosa, cóncava; clípeo con borde anterior emarginado, superficie con grandes sedas irregularmente distribuidas; mandíbulas falcadas, esbeltas; palpómero maxilar apical ovado; palpómero labial triangular. Tórax: pronoto más ancho (1.95 mm) que largo (1.08 mm), semicircular, bordes laterales ligeramente estrechados en su mitad basal casi paralelos, borde posterior ondulado, ángulos posteriores rectos, disco convexo con una fóvea en medio, lados angostamente explanados, con poros glandulares en márgenes, superficie brillante, con abundante pilosidad decumbente y procumbente; escutelo trapezoidal, superficie brillante, con abundante puntuación grande y pilosidad; élitros largos, paralelos, 4 veces más largos (5.3 mm) que anchos (1.17 mm), superficie rugosa, opaca; pilosidad decumbente y procumbente; epipleura reducida; espiráculos respiratorios mesotorácicos tubulares; patas largas, pro y mesopatas semejantes entre sí, fémures fusiformes, tibias dilatadas al ápice, borde externo liso, espinas tibiales 2-2-2 de longitud semejante (0.04 mm), primer metatarsómero un poco más largo (0.3 mm) que los 2 siguientes juntos (0.28 mm), cuarto bífido, cubriendo parte del quinto, uñas simples. Abdomen: largo de esternitos 1 y 2 de 0.44 mm, 3 y 4 de 0.69 mm, presentan la parte media del borde posterior ondulado y ángulos posteriores casi rectos, esternito 5 de 0.42 mm y 6 de 0.55 mm con poros estigmatiformes, parte media emarginada y ángulos posteriores romos, esternito 7 de 0.32 mm con borde posterior emarginado; esternito 8 de 0.55 mm de forma ojival; edeago (figs. 12A, 13A, 14A) con pieza basal simétrica, ligeramente más larga (0.40 mm) que lóbulos laterales (0.35 mm), con borde posterior cóncavo, lóbulo medio apicalmente estrechado, lateralmente esclerotizado, completamente membranoso visto dorsalmente, excrecencias dorso-basales asimétrica como lóbulos, paralela, una de mayor tamaño, orientadas hacia los lóbulos laterales, orificio medio ubicado apicalmente, lóbulos laterales un poco más cortos que lóbulo medio, no cubriendo el lóbulo medio visto dorsalmente, más angostos apicalmente, curvados hacia la parte dorsal desde una vista lateral, con punta roma, ancha. Hembra desconocida.
Figura 5. Vista dorsal de especies de Photinus. A) Photinus acremophallus,B) P. aldretei, C) P. alvarezi, D) P.asiainae, E) P.chaaci, F) P.chantzinae, G) P.choonghayi, H) P. cuasicongruus, I) P. dhipaki, J) P. escalanteae, K) P. estebani, L) P. gliscens, M) P. homerogomezi, N) P. janisae, Ñ) P. juarezae, O) P. lekoalloios, P) P.mictlantecuhtli, Q) P. noguerai, R) P. paracongruus, S) P. perezi.
Resumen taxonómico
Etimología. Dedicado al dios Mictlantecuhtli, “el señor del lugar de los muertos”, al que adoraban los totonacas de acuerdo con los vestigios arqueológicos encontrados en El Zapotal, Veracruz.
Material examinado. Holotipo macho. México: Veracruz: Microondas San Juan, S. of Fortin, 07-VII-1992. M. C. Thomas Beatingv. | Photinus sp. (Laporte, 1833) | CQR. 51747 | Colección del Instituto de Biología, UNAM, México, D.F. | COL.TIP-03966.
Macho. Talla: largo 10.65 mm, ancho 4.08 mm Cuerpo ovoide, color castaño, mancha negra del pronoto paralela; élitros uniformemente coloreados; aparato luminoso presente en los esternitos 5-6, un poco más largos que los precedentes, con puntuaciones laterales, borde posterior del 7, cóncavo, 8 espatulado; edeago (figs. 12B, 13B, 14B) robusto más largo que lóbulos laterales, éstos en forma de “S”, lóbulo medio cilíndrico, con las excrecencias cortas, curvadas y separadas.
Distribución: Veracruz.
Figura 6. Vista ventral de especies de Photinus. A) Photinus acremophallus, B) P. aldretei, C) P. alvarezi, D) P. asiainae, E) P. chaaci, F) P. chantzinae, G) P.choonghayi, H) P. cuasicongruus, I) P. dhipaki, J) P. escalanteae, K) P. estebani, L) P. gliscens, M) P. homerogomezi, N) P. janisae, Ñ) P. juarezae, O) P. lekoalloios, P) P. mictlantecuhtli, Q) P. noguerai, R) P.paracongruus, S) P.perezi.
Photinus paracongruus Zaragoza-Caballero, 1996
Figs. 5R, 6R, 12C, 13C, 14C
Macho. Talla: largo 21.75 mm, ancho 8.38 mm. Cuerpo ovoide, color castaño, mancha negra del pronoto casi cuadrada; élitros con una banda media y sutural amarillenta; aparato luminoso presente en esternitos 5-6, tan largos como los precedentes, con puntuaciones laterales, borde posterior del 7, cóncavo, 8 espatulado; edeago (figs. 12C, 13C, 14C) con pieza basal más larga que lóbulos laterales, éstos en vista lateral curvados, lóbulo medio corto, distalmente atenuado, con las excrecencias largas, cilíndricas, y medianamente cerca.
Distribución: México: Veracruz.
Figura 7. Vista dorsal de edeagos de Photinus. A) Photinus acremophallus, B) P. aldretei, C) P. alvarezi, D) P. asiainae, E) P. chaaci, F) P. chantzinae, G) P. choonghayi, H) P. cuasicongruus, I) P. dhipaki, J) P. escalanteae, K) P. estebani, L) P. gliscens, M) P. homerogomezi, N) P. janisae, Ñ) P. juarezae, O) P. lekoalloios.
Photinus parvulus Gorham, 1881
Macho. Talla: largo 4.5-5.00 mm. Cuerpo alargado, color gris oscuro, pronoto negro con margen blanquecino y con una impresión alargada; élitros negros; esternitos blanquecinos; antenas largas rebasando el cuarto esternito.
Distribución: México: Veracruz.
Figura 8. Vista ventral de edeagos de Photinus. A) Photinus acremophallus, B) P. aldretei, C) P. alvarezi, D) P. asiainae, E) P. chaaci, F) P. chantzinae, G) P. choonghayi, H) P. cuasicongruus, I) P. dhipaki, J) P. escalanteae, K) P. estebani, L) P. gliscens, M) P. homerogomezi, N) P. janisae, Ñ) P. juarezae, O) P. lekoalloios.
Photinus perezi Zaragoza-Caballero, 1995
Figs. 5S, 6S, 12D, 13D, 14D
Macho. Talla: largo 12.51 mm, ancho 4.19 mm. Cuerpo alargado, color castaño, mancha negra del pronoto triangular; élitros amarillentos con una banda humeral y otra sutural negra; aparato luminoso presente en esternitos 5-6, más largos que los precedentes, con puntuaciones laterales, borde posterior del 7 cóncavo, 8 ojival; edeago (figs. 12D, 13D, 14D) con pieza basal más larga que lóbulos laterales, éstos curvados en vista lateral, lóbulo medio corto, con excrecencias representadas por 2 prominencias laterales.
Distribución: México: Veracruz.
Figura 9. Vista lateral de edeagos de Photinus. A) Photinus acremophallus, B) P. aldretei, C) P. alvarezi, D) P. asiainae, E) P. chaaci, F) P. chantzinae, G) P. choonghayi, H) P. cuasicongruus, I) P. dhipaki, J) P. escalanteae, K) P. estebani, L) P. gliscens, M) P. homerogomezi, N) P. janisae, Ñ) P. juarezae, O) P. lekoalloios.
Photinus perotensis Zaragoza-Caballero, 1996
Figs. 10A, 11A, 12E, 13E, 14E
Macho. Talla: largo 14.16 mm, ancho 5.66 mm. Cuerpo ovoide, color negro, mancha negra del pronoto casi cuadrada; élitros negros; sin aparato luminoso, esternitos 5-6, tan largos como los precedentes, sin puntuaciones laterales, borde posterior del 7 convexo, el 8 ojival; edeago (12E, 13E, 14E) con pieza basal tan larga como lóbulos laterales, éstos asimétricos, lóbulo medio asimétrico, con excrecencias casi esféricas y basalmente cercanas.
Distribución: México: Veracruz.
Photinus phalloentis Zaragoza-Caballero, 1996
Figs. 10B, 11B, 12F, 13F, 14F
Macho. Talla: largo 15.17 mm, ancho 6.12 mm. Cuerpo ovoide, color negro, mancha negra del pronoto alargada; élitros negros; sin aparato luminoso, esternitos 5-6, tan largos como los precedentes, sin puntuaciones laterales, borde posterior del 7 cóncavo, 8 ojival; edeago (figs. 12F, 13F, 14F) con pieza basal asimétrica más corta que los lóbulos laterales, éstos asimétricos, lóbulo medio asimétrico, con excrecencias casi esféricas desiguales y basalmente cercanas.
Distribución: México: Veracruz.
Photinus plumbeus Gorham, 1880
Figs. 10C, 11C, 12G, 13G, 14G
Macho. Talla: largo 6.00 mm, ancho 2.88 mm. Cuerpo alargado, paralelo, de color castaño; pronoto blanquecino, disco acanalado; élitros con márgenes lateral y sutural blanquecinos; aparato luminoso ocupando esternitos 5-6; edeago (figs. 12G, 13G, 14G) con pieza basal simétrica, lóbulos laterales en vista lateral apicalmente muy angostos, lóbulo medio cónico, con excrecencias cortas, lobuladas y separadas.
Distribución: México: Veracruz.
Photinus poncianoae Zaragoza-Caballero y Pérez-Flores, sp. nov.
Macho. Talla: largo 10.19 mm, ancho 4.00 mm. Color negro, pronoto con una mancha negra basal casi cuadrada, ápice y lados del pronoto ferruginosos, margen lateral y sutural de los élitros del mismo color, coxas, fémures, base de tibias y margen posterior del esternito 5; aparato luminoso en esternitos 5-7. Cabeza: espacio interocular (0.68 mm), plano, paralelo, con integumento rugoso, brillante y diminutas sedas decumbentes; frente vertical, distancia interantenal (0.22 mm), más angosta que fosita antenal (0.55 mm); ojos finamente facetados, semiesféricos, más largos (0.46 mm) que anchos (0.33 mm); antenas filiformes, largas, escapo alcanzando 0.70 mm de longitud, claviforme, más largo que los 2 siguientes juntos, segundo corto (0.19 mm), tercero de 0.36 mm, del cuarto al décimo de 0.46 mm, undécimo alcanza 0.40 mm; sutura frontoclipeal membranosa; clípeo trapezoidal, borde anterior cóncavo, superficie rugosa, con sedas cortas; mandíbulas falcadas; sin sedas basales; palpómero maxilar apical securiforme; palpómero labial fusiforme. Tórax: pronoto más ancho (3.18 mm) que largo (2.00 mm), semicircular, borde posterior recto, ángulos posteriores romos, lados ampliamente explanados, con poros glandulares ordenados en el margen, más abundantes en parte anterior del disco, superficie brillante, pilosidad decumbente; escutelo espatulado, con borde posterior romo, superficie rugosa, pilosidad decumbente; élitros poco más de 4 veces más largos (8.18 mm) que anchos (2.00 mm), superficie rugosamente punteada, opaca, con 2 tipos de pilosidad decumbente, una larga y erecta, otra muy pequeña; epipleura angosta; espiráculos respiratorios mesotorácicos no tubulares; patas cortas, pro y mesopatas semejantes entre sí, metapatas un poco más largas, fémures casi fusiformes, tibias un poco dilatadas al ápice, borde externo no crenulado, espinas tibiales 2-2-2 de longitud subigual (0.17 mm) tarsómeros lateralmente comprimidos, primer metatarsómero más largo (0.58 mm) que los 2 siguientes juntos (0.40 mm), cuarto bífido, cubriendo gran parte del quinto, uñas simples. Abdomen: esternitos 1 y 2 de 0.74 mm, esternito 3 y 4 de 0.59 mm, presentan parte media del borde posterior recta, ángulos posteriores casi rectos, esternito 5 de 0.74 mm, 6 de 1.29 mm sin puntuaciones estigmatiformes, parte media del borde posterior ondulado y ángulos posteriores romos, esternito 7 de 0.74 mm con borde posterior emarginado, esternito 8 de 1.18 mm, ojival, tergitos apicales no superpuestos; edeago (figs. 12H, 13H, 14H ) con pieza basal simétrica, más larga (0.72 mm) que lóbulos laterales (0.58 mm), éstos modificados para recepción de excrecencias dorso basales, lóbulo medio cilíndrico, más corto que los lóbulos laterales, excrecencias lobuladas, divergentes y basalmente separadas. Hembra desconocida.
Resumen taxonómico
Etimología. El nombre está dedicado a Guadalupe Ponciano, entrañable compañera de andanzas en el campo mexicano.
Material examinado. Holotipo macho: México, Veracruz, Rancho La Camelia, 12-V-1994, S. Zaragoza, A. Mendoza coll. | CQR. | COL.TIP-03967.
*Photinus productus Gorham, 1881. En Zaragoza-Caballero et al. (2020).
Distribución: Chiapas, Oaxaca, Puebla y Veracruz.
Photinus pulchellus Gorham, 1880
Figs. 10E, 11E, 12I, 13I, 14I
Macho. Talla: largo 9.02 mm, ancho 3.20 mm. Cuerpo ovoide, de color negro plomizo. Cabeza con vértex plano; antenas filiformes, largas, rebasa segundo esternito; clípeo casi rectangular, con borde anterior ligeramente escotado; palpos labiales con último artejo un tanto securiforme; pronoto más ancho que largo, borde anterior semicircular, ángulos posteriores casi rectos; élitros paralelos, entre 4 y 5 veces más largos que anchos; abdomen sin puntuaciones estigmatiformes, borde posterior del sexto esternito ligeramente hendido en el macho; aparato luminosos en macho ocupando toda la superficie ventral de los segmentos 5 y 6, en hembras reducido a una mancha sobre el quinto; edeago (figs. 12I, 13I, 14I) con lóbulos laterales casi en forma de S, con parte distal membranosa, lóbulo medio con excrecencias dorsobasales reducidas; orificio medio terminal.
Distribución: México: Veracruz.
Photinus reichei Gorham, 1881
Figs. 10F, 11F, 12J, 13J, 14J
Macho. Talla: largo 9 mm, ancho 3.5 mm, Cuerpo alargado-ovalado, negro-castaño; pronoto amarillo, disco negro, convexo, brillante, acanalado, castaño a los lados; élitros negro castaño, sutura amarilla muy angosta; abdomen con 3 últimos segmentos amarillos tanto dorsal como ventralmente; edeago (figs. 12J, 13J, 14J) corto, robusto, pieza basal simétrica, lóbulos laterales modificados para recepción de las excrecencias cortas, lobuladas y separadas del lóbulo medio cilíndrico.
Distribución: México: Oaxaca y Veracruz.
Photinus staku Zaragoza-Caballero y Vega-Badillo, sp. nov.
Macho. Talla: largo 8.54 mm, ancho 2.72 mm. Color castaño con excepción del pronoto y margen lateral de élitros amarillentos, disco con una franja central café y 2 máculas rosas; procoxas, metacoxas y fémures ambarinos; aparato luminoso ocupando esternitos 5-6. Cabeza: espacio interocular (0.62 mm) cóncavo, casi paralelo, integumento brillante, liso y piloso; frente vertical, distancia interantenal (0.12 mm) más angosta que lo ancho de fosita antenal (0.22 mm); ojos finamente facetados, semiesféricos, prominentes, más largos (0.51 mm) que anchos (0.38 mm); antenas filiformes (3.5 mm), 2 veces más largas que pronoto, sobrepasa borde posterior del metasterno, escapo alcanzando 0.50 mm de longitud, claviforme, tan largo como 2 antenitos siguientes juntos, segundo corto (0.15 mm), del tercero al décimo de 0.35 mm, undécimo alcanza 0.50 mm; sutura frontoclipeal, membranosa, casi recta; clípeo trapezoidal, borde anterior recto, superficie con grandes sedas irregularmente distribuidas; mandíbulas falcadas, delgadas con sedas en su borde externo, uniformemente arqueadas; palpómero maxilar apical securiforme; palpómero labial casi triangular. Tórax: pronoto más ancho (2.00 mm) que largo (1.91 mm), ojival, borde posterior recto, ángulos posteriores obtusos, disco convexo, lados cóncavos, explanados, con poros glandulares en márgenes, más abundantes anteriormente, superficie brillante, pilosidad abundante, procumbente; escutelo triangular, con borde posterior redondeado, superficie brillante, gruesamente punteada y pilosidad procumbente; élitros largos casi paralelos, 4.95 veces más largos (6.73 mm) que anchos (1.36 mm), superficie rugosa, brillante, pilosidad corta, abundante, decumbente; epipleura ancha; espiráculos respiratorios mesotorácicos tubulares; patas cortas, esbeltas pro y mesopatas semejantes entre sí, metapatas más largas, fémures fusiformes aplanados, tibias aplanadas un poco dilatadas al ápice, borde externo crenulado y margen apical entero, espinas tibiales 2-2-2 de longitud semejante (0.12 mm), tarsómeros lateralmente comprimidos, primer metatarsómero (0.37 mm) más largo que 2 siguientes juntos (0.30 mm), cuarto bífido, cubriendo 2 tercios del quinto, uñas simples. Abdomen: esternito 1 y 2 de 0.50 mm, 3 y 4 de 0.42 mm, presentan parte media del borde posterior ligeramente ondulada y ángulos posteriores casi rectos, esternito 5 de 0.63 mm, 6 de 0.75 mm sin poros estigmatiformes, parte media del borde posterior ondulados, ángulos posteriores romos, esternito 7 de 0.30 mm con borde posterior escotado y ángulos posteriores redondos, esternito 8 de 0.38 mm, ojival, con superficie excavada y borde posterior romo; pigidio con borde posterior romo; edeago (figs. 12K, 13K, 14K) con pieza basal simétrica, más larga (0.45 mm) que lóbulos laterales (0.37 mm), con borde posterior cóncavo; lóbulo medio cuadrado, con parte dorsal y ventral esclerosada, excrecencias dorso basales como lóbulos cortos, casi transversos, orificio medio apical, lóbulos laterales más largos que lóbulo medio, anchos en vista lateral, arqueados hacia la parte dorsal, ápice proyectado hacia arriba, sin modificaciones para la recepción de excrecencias del lóbulo medio. Hembra desconocida.
Resumen taxonómico
Etimología. Dedicado al dios totonaca Staku “las Estrellas” vigilante que cuida durante el día y la noche para que no revivan las piedras y los árboles, que para los totonacas eran almas dormidas.
Material examinado. Holotipo macho. México: Veracruz, Río de los Pescados 24 mi. S. Jalapa. 22-VIII-1977, 540 m snm. E. I. Schlinger | CQR. 51858 | COL.TIP-03968. Paratipo macho, México: Veracruz, Yecuatla, 25-III-1997. E. González | CQR. 51859 | COL.TIP-03969.
Photinus tenuilineatus Zaragoza-Caballero, 1996
Figs. 10H, 11H, 12L, 13L, 14L
Macho. Talla: largo 8.27 mm, ancho 2.72 mm. Cuerpo ovoide, color castaño, mancha negra del pronoto alargada, dividida por una franja rojiza; élitros castaño, con banda marginal, sutural y humeral amarillentas, ésta última apenas marcada; aparato luminoso en esternitos 5-6, más largos que precedentes, con puntuaciones laterales, borde posterior del 7 cóncavo, 8 espatulado; edeago (figs. 12L, 13L, 14L) con pieza basal simétrica tan larga como lóbulos laterales, éstos con ápice lateralmente dirigido; lóbulo medio alargado, comprimido, sin excrecencias dorso basales, con ápice bífido.
Distribución: México: Veracruz.
*Photinus tlapacoyanensis Zaragoza-Caballero, 1996. En Zaragoza-Caballero et al. (2020).
Distribución: Hidalgo, Puebla y Veracruz.
*Photinus tuxtlaensis Zaragoza-Caballero, 1995. En Zaragoza-Caballero et al. (2020).
Distribución: Campeche, Hidalgo, Oaxaca, Quintana Roo, San Luis Potosí, Tabasco, Tamaulipas, Veracruz y Yucatán.
Photinus vezlirai Zaragoza-Caballero y Domínguez-León, sp. nov.
Macho. Talla: largo 7.82 mm, ancho 2.59 mm. Color pardo a excepción del pronoto que es de un color ambarino en la parte media con una mancha café y 2 maculas rosas rodeando la anterior; procoxas, metacoxas y fémures ambarinos con ápice de color café; aparato luminoso ocupando únicamente esternito 6. Cabeza: espacio interocular (0.62 mm), cóncavo, paralelo, integumento brillante, chagrinado y piloso; frente vertical, distancia interantenal (0.08 mm) un poco más grande que el ancho de la fosita antenal (0.12 mm); ojos finamente facetados, esféricos, prominentes, más largos (0.82 mm) que anchos (0.49 mm); antenas filiformes (3.52 mm), 2 veces más largas que pronoto, sobrepasa borde posterior del metaesterno, escapo alcanzando 0.49 mm de longitud, claviforme, tan largo como 2 antenitos siguientes juntos, segundo corto (0.17 mm), del quinto al undécimo de 0.3 mm; sutura frontoclipeal membranosa, cóncava; clípeo con borde anterior recto, superficie con grandes sedas irregularmente distribuidas; mandíbulas falcadas, esbeltas; palpómero maxilar apical ovado; palpómero labial triangular. Tórax: pronoto más ancho (2.22 mm) que largo (1.52 mm), semicircular, bordes laterales casi paralelos en su mitad basal, borde posterior convexo en medio, ángulos posteriores rectos, disco convexo, lados angostamente explanados, con poros glandulares en los márgenes, superficie brillante, con abundante pilosidad, decumbente y procumbente, excepto en disco medio; escutelo trapezoidal, superficie brillante, con escasa puntuación oblicua y pilosidad procumbente; élitros largos, paralelos, un poco menos de 4 veces más largos (6.3 mm) que anchos (1.25 mm), superficie rugosa, opaca; pilosidad escasa y decumbente; epipleura reducida; espiráculos respiratorios mesotorácicos tubulares; patas largas, pro y mesopatas semejantes entre sí, fémures fusiformes, tibias dilatadas al ápice, borde externo liso, espinas tibiales 2-2-2 de longitud semejante (0.05 mm), primer metatarsómero un poco más largo (0.3 mm) que 2 siguientes juntos (0.28 mm), el cuarto bífido, cubriendo parte del quinto, uñas simples. Abdomen: esternitos 1 y 2 de 0.23 mm, 3 y 4 de 0.8 mm, presentan parte media del borde posterior emarginada, ángulos posteriores casi rectos, esternito 5 de 0.35 mm y 6 de 0.51 mm con poros estigmatiformes, parte media emarginada y ángulos posteriores romos, esternito 7 de 0.88 mm con parte media emarginada y ángulos posteriores redondeados; edeago (figs. 12M, 13M, 14M) con pieza basal simétrica, un poco más larga (0.46 mm), que los lóbulos laterales (0.28 mm), con borde posterior cóncavo, lóbulo medio cilíndrico, no esclerotizado visto dorsalmente, excrecencias dorso-basales como lóbulos cortos, paralelos, orientados y pegados a lóbulos laterales, orificio medio ubicado apicalmente, lóbulos laterales un poco más largos que lóbulo medio, anchos en vista lateral, ápice proyectado dorsalmente, con punta roma y ancha poco esclerotizada. Hembra desconocida.
Resumen taxonómico
Etimología. El nombre específico es formado mediante la combinación de los apellidos del ambientalista Adán Vez Lira, como un breve homenaje a quien durante muchos años defendió la flora y fauna de los humedales, manglares y dunas de La Mancha, Veracruz.
Material examinado. Holotipo macho. México: Veracruz: Laguna Sto. Domingo, 4 km NO Huatusco, 09-VII-2000, 19°09’50” N, 97°00’267” O | Col. S. Zaragoza C. | Photinus sp. (Laporte, 1833) | CQR. 52237 | COL.TIP-03970.
*Photinus vulgatus Olivier, 1907. En Zaragoza-Caballero et al. (2023).
Distribución: Michoacán, Quintana Roo y Veracruz.
Photinus xochiquetzalae Zaragoza-Caballero y Aquino-Romero, sp. nov.
Macho. Talla: largo 9.51 mm, ancho 3.46 mm. Color ambarino, con excepción del disco pronotal, que cuenta con una mancha rosa en medio y 3 manchas pardas, 2 laterales pequeñas y una central más alargada; escutelo con una mancha triangular rosa anteriormente y en medio una mancha circular ambarina; base superior del élitro, cabeza, tibias y coxas que ambarinos; aparato luminoso ocupando esternitos 5-6. Cabeza: espacio interocular (1.73 mm), plano, integumento brillante, chagrinado y piloso; frente vertical, distancia interantenal (0.72 mm), más angosta que el ancho de la fosita antenal; ojos finamente facetados, semiesféricos, prominentes, más anchos (0.77 mm) que largos (0.14 mm); antenas filiformes cortas, 1.7 veces más largas que pronoto, alcanza borde posterior de la procoxa, escapo alcanzando 0.97 mm de longitud, claviforme, más pequeño que 2 antenitos siguientes juntos, segundo corto (0.52 mm), tercero al undécimo de 0.44 mm; sutura frontoclipeal no membranosa, cóncava; clípeo oval, borde anterior convexo, superficie lisa con sedas cortas irregularmente distribuidas; mandíbulas falcadas, esbeltas, curveadas; palpómero maxilar apical securiforme; palpómero labial securiforme. Tórax: pronoto más ancho (2.82 mm) que largo (2.18 mm), semicircular, borde posterior cóncavo, borde anterior semicircular, ángulos posteriores rectos, disco convexo, explanaciones laterales evidentes, más amplias en parte superior, con poros glandulares en márgenes, superficie brillante, pilosidad ligeramente más abundante en parte anterior, decumbente; escutelo espatulado, con borde posterior acuminado, superficie brillante, punteado y pilosidad abundante, pequeña y procumbente; élitros largos, paralelos, 4 veces más largos (7.73 mm) que anchos (1.88 mm), superficie brillosa, integumento rugoso, pilosidad pequeña y decumbente; epipleura reducida, más estrecha en la base; espiráculos respiratorios mesotorácicos tubulares; patas cortas, fémures fusiformes, lateralmente aplanados, meso y metafémures más alargados, semejantes entre sí, tibias dilatadas al ápice, protibia con ápice ligeramente hendido, tarsómeros lateralmente comprimidos, primer metatarsómero ligeramente más largo (0.25 mm) que 2 siguientes juntos (0.24 mm), cuarto bífido, cubriendo parte del quinto, uñas simples. Abdomen: longitud de esternitos 1-3 de 0.23 mm, esternito 4 de 0.26 mm, ángulos posteriores casi rectos, esternito 5 de 0.32 mm y 6 de 0.79 mm, con puntuaciones estigmatiformes, presentan parte media del borde posterior emarginada y ángulos posteriores romos, esternito 7 de 0.88 mm con borde posterior escotado y ángulos posteriores redondos, esternito 8 de 0.61 mm, ojival, con superficie excavada y borde posterior romo; pigidio con borde posterior redondeado; edeago (figs. 12N, 13N, 14N) con pieza basal simétrica, más corta (0.10 mm) que lóbulos laterales (0.18 mm), con borde posterior escotado, lóbulo medio cilíndrico, con superficie dorsal membranosa, integumento lateral liso y esclerosado, porción apical fuertemente hendida, superficie ventral con base esclerosada y parte apical membranosa, orificio medio abierto apicalmente, excrecencias dorso basales simétricas, separadas, como lóbulos cortos, fusionadas en la parte basal, lóbulos laterales simétricos, más largos que lóbulo medio, dilatados basalmente, robustos en vista lateral, sin modificaciones para recepción de excrecencias del lóbulo medio. Hembra desconocida.
Resumen taxonómico
Etimología. El nombre hace referencia a la diosa tolteca Xochiquetzal, diosa de la belleza, las flores, el placer amoroso y las artes, que era adorada por pobladores toltecas en algunas regiones de Xalapa, Veracruz.
Material examinado. Holotipo macho. México: Veracruz: Río de los Pescados, 24 mi S. Jalapa, VIII-22-1977, 540 m snm, E.I. Schlinger. | CQR 51861 | Colección del Instituto de Biología, UNAM, México, CDMX. | COL.TIP-03971.
Photinus xonamancae Zaragoza-Caballero, 1996
Figs. 10K, 11K, 12Ñ, 13Ñ, 14Ñ
Macho. Talla: largo 6.91 mm, ancho 2.26 mm. Cuerpo ovoide, color castaño, mancha negra del pronoto fungiforme; élitros negros, con margen lateral y sutural amarillo; aparato luminoso en esternitos 5-6, tan largos como precedentes, con puntuaciones laterales, borde posterior del 7 cóncavo, 8 ojival; edeago (figs. 12Ñ, 13Ñ, 14Ñ) con pieza basal simétrica, más larga que lóbulos laterales, estos, en vista lateral casi triangulares, con ápice redondo, lóbulo medio cónico, excrecencias dorso-basales pequeñas asimétricas y separadas.
Distribución: México: Veracruz.
*Photinus zongolicaensis Zaragoza-Caballero y Domínguez-León, 2020. En Zaragoza-Caballero et al. (2020).
*Pyropyga alticola Green, 1961. En Zaragoza-Caballero et al. (2023).
Distribución: Chiapas, Ciudad de México, Coahuila, Estado de México, Guerrero, Hidalgo, Morelos, Oaxaca, Puebla y Veracruz.
*Pyropyga cordobana Green, 1961. En Zaragoza-Caballero et al. (2023).
Distribución: Chiapas, Jalisco, Morelos, San Luis Potosí, Puebla y Veracruz.
*Pyropyga extensa Green, 1961. En Zaragoza-Caballero et al. (2023).
Distribución: Ciudad de México, Chiapas, Durango, Puebla, Quintana Roo, Tamaulipas y Veracruz.
Figura 10. Vista dorsal de especies de Photinus. A) Photinus perotensis, B) P.phalloentis, C) P.plumbeus, D) P.poncianoae, E) P.pulchellus, F) P.reichei,G) P. staku,H) P.tenuilineatus, I) P. vezlirai, J) P. xochiquetzalae, K) P.xonamancae, L) Lucidota discolor.
*Pyropyga minuta (LeConte, 1851). En Zaragoza-Caballero et al. (2023).
Ellychnia minuta LeConte, 1851: 333
Distribución: Ciudad de México, Chiapas, Coahuila, Colima, Durango, Estado de México, Guanajuato, Guerrero, Hidalgo, Jalisco, Michoacán, Morelos, Nayarit, Nuevo León, Oaxaca, Puebla, Quintana Roo, San Luis Potosí, Tamaulipas y Veracruz.
*Pyropyga modesta Green, 1961. En Zaragoza-Caballero et al. (2023).
Distribución: Chiapas, Coahuila, Colima, Guerrero, Hidalgo, Jalisco, Michoacán, Morelos, Nayarit, Nuevo León, Oaxaca, Puebla, San Luis Potosí, Tamaulipas y Veracruz.
*Pyropyga nigricans (Say, 1823). En Zaragoza-Caballero et al. (2023).
Lampyris nigricans Say, 1823: 179
Distribución: Aguascalientes, Baja California Sur, Chiapas, Chihuahua, Ciudad de México, Durango, Estado de México, Guanajuato, Hidalgo, Jalisco, Michoacán, Morelos, Nayarit, Oaxaca, Puebla, San Luis Potosí, Sinaloa, Sonora y Veracruz.
Figura 11. Vista ventral de especies de Photinus. A) Photinus perotensis, B) P.phalloentis, C) P.plumbeus, D) P.poncianoae, E) P.pulchellus, F) P.reichei, G) P. staku, H) P.tenuilineatus, I) P.vezlirai, J) P.xochiquetzalae, K) P. xonamancae, L) Lucidota discolor.
*Photinoides McDermott, 1963
Especie tipo: Photinoides penai McDermott, 1963: 86
Blackwelder y Arnett (1976: 12), McDermott (1964: 27, 1966: 48).
Diagnosis en Zaragoza-Caballero et al. (2023)
Photinoides bidenticauda (McDermott, 1958)
Photinus bidenticauda McDermott, 1958:25
Macho. Talla: largo 6.00 mm, ancho 1.9 mm. Cuerpo paralelo, castaño; antenas más largas que pronoto, ojival, rojizo, con una angosta banda oscura; escutelo amarillo; élitros marrones, con una costilla oblicua, ligeramente acuminados, margen lateral y sutural amarillo; aparato luminoso ocupando esternitos 5-6, más largos que precedente; pigidio más menos hexagonal con 2 proyecciones ventrales.
Figura 12. Vista dorsal de edeagos de Photinus. A)Photinusmictlantecuhtli, B) P.noguerai,C) P.paracongruus,D) P.perezi, E) P. perotensis,F) P.phalloentis,G) P.plumbeus,H) P.poncianoae,I) P.pulchellus,J) P.reichei, K) P. staku, L) P.tenuilineatus, M) P.vezlirai, N) P. xochiquetzalae, Ñ) P.xonamancae.
*Lucidota bella Gorham, 1880. En Zaragoza-Caballero et al. (2020)
Distribución: Campeche, Chiapas, Estado de México, Oaxaca, Tabasco y Veracruz.
Lucidota diaphanura Gorham, 1881
Talla: largo en machos y hembras de 12.00-15.00 mm. Cuerpo ancho, ovoide, negro opaco; pronoto semicircular, blanquecino, con margen oscuro, acanalado, con una mancha negra central; élitros, convexos; esternitos negros, los apicales blanquecinos.
Distribución: México: Veracruz.
Figura 13. Vista ventral de edeagos de Photinus. A)Photinusmictlantecuhtli, B) P.noguerai, C) P.paracongruus, D) P.perezi, E) P. perotensis, F) P.phalloentis, G) P.plumbeus, H) P.poncianoae, I) P.pulchellus, J) P.reichei, K) P. staku, L) P.tenuilineatus, M) P.vezlirai, N) P.xochiquetzalae, Ñ) P.xonamancae.
Lucidota discolor Gorham, 1881
Figs. 10L, 11L
Macho. Talla: largo 12.68 mm, ancho 5.37. Cuerpo alargado, ovoide, mitad anterior ferruginosa y posterior negra; esternitos negros, sin puntuaciones laterales, 7 en macho mucronado, 8 ojival de color ferruginoso; 7 con 2 pequeñas manchas blanquecinas laterales, en las hembras se encuentran en esternitos 5-6; pieza basal del edeago simétrica, más corta que lóbulos laterales, estos, apicalmente triangulares y con una proyección ventral, lóbulo medio más largo que laterales con ápice comprimido y curvado.
Distribución: México: Veracruz.
Figura 14. Vista lateral de edeagos de Photinus. A) Photinus mictlantecuhtli, B) P.noguerai, C) P.paracongruus,D) P.perezi,E) P. perotensis,F) P.phalloentis,G) P.plumbeus,H) P. poncianoae,I) P.pulchellus,J) P.reichei, K) P. staku, L) P.tenuilineatus, M) P. vezlirai, N) P. xochiquetzalae, Ñ) P.xonamancae.
Discusión
Estudios recientes han actualizado el estatus nomenclatural del género Photinus Laporte (Zaragoza-Caballero et al., 2020; Zaragoza-Caballero, Zurita-García et al., 2023). McDermott en 1966 registró 237 especies; por otro lado, Zaragoza-Caballero, Zurita-García et al. (2023) citan 396 especies, a partir de entonces se han descrito 51 especies (Gutiérrez-Carranza et al., 2023, 2024; Zaragoza-Caballero, Zurita-García et al., 2023) sumado a las 15 descritas en este trabajo Photinus se conforma de 462 especies siendo el género más diverso de Lampyridae,seguido de Luciola Laporte con 173 especies (Keller, 2024),el primero propio del continente Americano y el segundo distribuido en el Viejo Mundo.
Durante el estudio de Lampyridae en México (Zaragoza-Caballero et al., 2020; Zaragoza-Caballero, López-Pérez et al., 2023), se descubrió un notable polimorfismo entre las especies de Photinus registradas en el país. Esta variación se manifiesta en la coloración y tamaño, desde especies pequeñas como P. ojiviformis Zaragoza-Caballero y Rodríguez-Mirón de 3.43 × 0.87 mm, hasta ejemplares más grandes como P.congruus Zaragoza-Caballero de 21.72 × 8.4 mm de largo y ancho, respectivamente. Entre sus especies, las hay de cuerpo escutiforme o paralelo. La forma del cuerpo se refleja en la relación de largo y ancho de los élitros, en los registros hemos encontrado desde 3.35 veces tan largo como ancho (P. advenus Olivier) hasta 7.64 [P. palaciosi (Zaragoza-Caballero)]. A su vez, esta relación —aparentemente— se manifiesta en la distribución altitudinal que alcanzan. Especies con el cuerpo ancho y corto, son concurrentes en alturas bajas como sucede con P. aliciae Zaragoza-Caballero (3.65) de las costas de Colima, Guerrero, Jalisco y Michoacán; las de cuerpo alargado y paralelo como P.gabicastanoae Gutiérrez-Carranza y Zaragoza-Caballero (8.5) se han registrado a 2,583 m snm. De las especies comentadas en este trabajo, los élitros en P. cuasicongruus Zaragoza-Caballero y P. juarezae Zaragoza-Caballero, pueden considerarse como ejemplo de esta situación. La primera, con cuerpo más menos ovoide, tiene una relación de 3.8 de largo/ancho en sus élitros y se le encuentra a una altura de 1,290 m snm, mientras que en P. juarezae, la relación es de 4.91 y se ubica a los 1,515 m snm.
En este trabajo, se evidencia la ausencia de nuevas especies o registros para los estados de Quintana Roo y Yucatán. A pesar de los esfuerzos que se han hecho para realizar estudios de la coleopterofauna de la zona del Caribe aún existen zonas poco estudiadas; en algunas zonas se cuentan con datos sobre familias puntuales como Melolonthidae, Passalidae y Scarabaeidae (Delgado et al., 2012; Halffter y Halffter 2009; Morón, 2001; Navarrete-Gutiérrez y Halffter, 2008; Reyes-Castillo 2000, 2002; Reyes-Novelo y Morón, 2005). Sin embargo, los listados de especies de Coleoptera en la zona del Caribe aún están lejos de ser completados y específicamente para Lampyridae, el material con el que se cuenta está basado en colectas esporádicas y publicaciones aisladas que resultan en el desconocimiento de la diversidad de luciérnagas que puede albergar. Por lo anterior, este estudio representa un primer avance en el conocimiento de luciérnagas del Caribe.
Finalmente, es importante continuar con estudios específicos de luciérnagas en estados cuya diversidad permanece subestimada, como lo son Chiapas, Quintana Roo y Yucatán; dada su importancia como especie bandera y desde un punto de vista biológico y cultural, se requiere que distintos sectores impulsen medidas adecuadas para su protección y conservación (Lewis et al., 2021; Singh et al., 2020).
Agradecimientos
A Susana Guzmán del Laboratorio de Microscopía y Fotografía de la Biodiversidad, Instituto de Biología, UNAM por la ayuda técnica en la toma de fotografías. Así mismo, a Janis Vigil Razo por la toma de diferentes fotografías y a Tifereth Cruz Rico por su asistencia en la edición digital. Además, se agradece a Keita Matsumoto y Michael Geiser del Museo de Historia Natural de Londres por facilitarnos las fotos del ejemplar tipo de Magnoculus guatemalae y a Mark G. Volkovitsh del Instituto de Zoología de San Petersburgo por proporcionarnos las fotos del ejemplar tipo de Ellychnia albilatera. De igual manera, agradecemos a un revisor anónimo y a José Luis Navarrete Heredia quienes con sus comentarios enriquecieron este trabajo.
Apéndice. Lista de especies presentes en la región golfo-Caribe. El asterisco indica los taxones que ya se han mencionado en Zaragoza-Caballero et al. (2020) y Zaragoza-Caballero, López-Pérez et al. (2023).
Vesta Laporte, 1833
Vesta thoracica (Olivier, 1790)
Magnoculus McDermott, 1964
Magnoculus tlaloque Zaragoza-Caballero y Gutiérrez-Carranza, sp. nov.
Photinus vezlirai Zaragoza-Caballero y Domínguez León, sp. nov.
*Photinus vulgatus Olivier, 1907.
Photinus xochiquetzalae Zaragoza-Caballero y Aquino-Romero, sp. nov.
Photinus xonamancae Zaragoza-Caballero, 1996
*Photinus zongolicaensis Zaragoza-Caballero y Domínguez-León, 2020
*Pyropyga Motschulsky, 1852
*Pyropyga alticola Green, 1961
*Pyropyga cordobana Green, 1961
*Pyropyga extensa Green, 1961
*Pyropyga minuta (LeConte, 1851)
*Pyropyga modesta Green, 1961
*Pyropyga nigricans (Say, 1823)
*Photinoides McDermott, 1963
Photinoides bidenticauda (McDermott, 1958)
*Lucidota Laporte, 1833
*Lucidota bella Gorham, 1880
Lucidota diaphanura Gorham, 1881
Lucidota discolor Gorham, 1881
Referencias
Barber, H. S. (1941). Species of fireflies in Jamaica (Coleoptera, Lampyridae). Proceedings of the Rochester Academy of Science, 8, 1–13.
Blackwelder, R. E. (1945). Checklist of the Coleopterous insects of Mexico, Central America, the West Indies, and South America. Bulletin United States National Museum, 185, 355–361. https://doi.org/10.5962/bhl.title.96553
Blackwelder, R. y Arnett, R. H. (1974). Fireflies. En R. Blackwelder y R. H. Arnett Jr. (Eds.), Checklist of the beetle of Canada, United States, Mexico, Central America and West Indies. Volume 1, part. 4 (Red Version) (pp. 1–15). Nueva York: The Biological Research Institute of America, INC.
Buck, B. J. (1951). Studies of fireflies III. Spectrometric data on thirteen Jamaican species. Proceedings of the Rochester Academy of Science, 8, 14–21.
Cicero, J. M. (1982). The Genus Bicellonycha in the United States with descriptions of a new species and subspecies (Coleoptera: Lampyridae: Lampyridae, Photurinae). The Coleopterists Bulletin, 36, 270–278.
Dejean, P. F. M. A. (1833). Catalogue des coleóptères de la Collection de M. le Comte Dejean, Liur 2. Paris: Mequignon-Marvis père et fils. https://doi.org/10.5962/bhl.title.8863
Delgado, J. M., Castro-Ramírez, A. E., Morón, M. Á. y Ruiz-Montoya, L. (2012). Diversidad de Scarabaeoidea (Coleoptera) en las principales condiciones de hábitat de Montebello, Chiapas, México. Acta Zoológica Mexicana, 28, 185–205. https://doi.org/10.21829/azm.2012.281825
Fabricius, J. C. (1798). Supplementum Entomologiae System- aticae. Hafniae ( = Copenague), Dinamarca: Proft et Storch. https://doi.org/10.5962/bhl.title.125869
Fleutiaux, E., Legros, C., Lepesme, P. y Paulian, R. (1947). Faune de l’Empire francais. Volume VII. En Office de la recherche scientifique coloniale (Ed.), Coléoptères des Antilles (pp. 1–160). París: Éditions du Muséum Larose.
Gemminger, M. y Harold, E. (1869). Catalogus coleopterorum hucusque descriptorum synonymicus et systematicus, Tomo IV. París: Monachii, sumptu E.H. Gummi. https://doi.org/10.5962/bhl.title.9089
Gorham, H. S. (1880a). Materials for a revision of Lampyridae. Transactions of the Entomological Society of London, 28, 1–36. https://doi.org/10.1111/j.1365-2311.1880.tb02016.x
Gorham, H. S. (1880b). Materials for a revision of the Lampyr- idae. Transactions of the Royal Entomological Society of London, 28, 83–112. https://doi.org/10.1111/j.1365-2311.1880.tb02023.x
Gorham, H. S. (1881). Coleoptera Malacodermata. En F. D. Godman y O. Salvin (Eds.), Biologia Centrali Americana. Insecta. Volume III, Part 2 (pp. 25–112). Londres. https://doi.org/10.5962/bhl.title.730
Gorham, H. S. (1884). Supplement to Malacodermata. En H. S. Gorham (Ed.), Biologia Centrali Americana. Insecta. Volume III, Part 2 (pp. 225–272). Londres. https://doi.org/ 10.5962/bhl.title.730
Green, J. W. (1948). Two new species of Lampyridae from southern Florida, with a generic revision of the Nearctic fauna. Transactions of the American Entomological Society, 74, 61–73.
Green, J. W. (1956). Revision of the Nearctic species of Photinus (Coleoptera: Lampyridae). Proceedings of the California Academy of Sciences, 28, 561–613.
Green, J. W. (1959). Revision of the species of Microphotus, with an emendation of the Lampyrini (Lampyridae). The Coleopterist Bulletin, 13, 80–96. https://doi.org/10.5962/ p.372217
Green, J. W. (1961). Revision of species of Pyropyga (Lampy- ridae). The Coleopterist Bulletin, 15, 65–74. https://doi.org/ 10.5962/p.372274
Gutiérrez-Carranza, I. G. (2023). Protocolo para disección y montaje de luciérnagas (Coleoptera: Lampyridae). Boletín de la Asociación Mexicana de Sistemática de Artrópodos, 7, 2–6.
Gutiérrez-Carranza, I. G. y Zaragoza-Caballero, S. (2024). Photinus gabicastanoae sp. nov. (Coleoptera: Lampyridae) de Michoacán, México. Dugesiana, 31, 217–221. https://doi.org/10.32870/dugesiana.v31i2.7338
Gutiérrez-Carranza, I. G., Zaragoza-Caballero, S. y Domínguez-León, D. E. (2023). Photinus favilai y P. tilae nuevas especies de luciérnagas de México (Coleoptera: Lampyridae). Dugesiana, 30, 209–219. https://doi.org/10.32870/dugesiana.v30i2.7300
Halffter, V. y Halffter, G. (2009). Nuevos datos sobre Canthon (Coleoptera: Scarabaeinae) de Chiapas, México. Acta Zoológica Mexicana, 25, 397–407. https://doi.org/10.21829/azm.2009.252646
Hortal, J., de Bello, F., Diniz-Filho, J.A.F., Lewinsohn, T.M., Lobo, J.M. y Ladle, R.J. (2015). Seven shortfalls that beset large-scale knowledge of biodiversity. Annual Review of Ecology, Evolution, and Systematics, 46, 523–549. https://doi.org/10.1146/annurev-ecolsys-112414-054400
Illiger, J. (1807). Vorschlag zur Aufnahme im Fabricischen Systeme fehlender Käffergattungen. Magazin für Insektenkunde, 6, 296–317.
Jeng, M. L. (2008). Comprehensive phylogenetics, systematics, and evolution of neoteny of Lampyridae (Insecta: Coleoptera) (Tesis doctoral). Universidad de Kansas, EUA.
Keller, O. (2024). The Lampyridae of the World Database. Recu- perado el 11 de julio, 2014 de: https://lampyridae.world/#/
Kuntzen, H. (1912). Eine Bemerkungen um Auschluβ an den Lampyriden-Teil des Junk-Schenklingschen Coleopteroroum Catalogus. Entomological Rundschau, 29, 86–87.
Lacordaire, J. T. (1857). Tribe II. Lampyrides. Histoire Naturelle des Insects. Genera des Coléoptères ou exposé Méthodique et Critique de tous les Genres Proposes jusqu’ici dans cet Ordre d’Iinsetcs, 4, 304–340. https://doi.org/10.5962/bhl.title. 8864
Laporte, F. L.N. (1833). Essai d’une révision du genre Lampyre. Annales de la Société Entomologique de France, 2, 122–153.
Laporte, F. L. N. C. (1840). Histoire naturalle des animaux articulés I. París: M. Duménil.
LeConte, J. L. (1852). Synopsis of the Lampyrides of temperate North America. Proceedings of the Academy of Natural Sciences of Philadelphia, 5, 331–347.
LeConte, J. L. (1861). Classification of the Coleoptera of North America. Part I. Smithsonian Miscellaneous Collections, 3. https://doi.org/10.5962/bhl.title.38459
LeConte, J. L. (1881). Synopsis of the Lampyridae of the United States. Transactions of the American Entomology Society, 9, 15–72. https://doi.org/10.2307/25076399
Lima, W., Silveira, L. F. L., Fonseca, C. R. V. D. y Zaragoza-Caballero, S. (2021). Cratomorphus leoneli: a new firefly from Mexico (Coleoptera: Lampyridae: Cratomorphini). Revista Mexicana de Biodiversidad, 92, e923831. https://doi.org/10.22201/ib.20078706e.2021.92.3831
Lewis, S. M., Thancharoen, A., Wong, C. H., López-Palafox, T., Santos, P. V., Wu, C., et al. (2021). Firefly tourism: advancing a global phenomenon toward a brighter future. Conservation Science and Practice, 3, 1–18. https://doi.org/ 10.1111/csp2.391
Linnaeus, C. (1767). Systema naturae, Tome I, Pars II. Editio Duodecima Reformata. Estocolmo, Suecia: Impensis Direct. Laur. Salvii.
Martin, G. J., Stanger-Hall, K. F., Branham, M. A., Silveira, L. F. L, Lower, S. E., Hall, D. W. et al. (2019). Higher-Level phylogeny and reclassification of Lampyridae (Coleoptera: Elateroidea). Insect Systematics and Diversity, 3, 1–15. https:// doi.org/10.1093/isd/ixz024
McDermott, F. A. (1958). Four new Lampyrid fireflies. The Coleopterists Bulletin, 12, 21–28. https://doi.org/10.5962/p. 372229
McDermott, F. A. (1962). Illustrations of the aedeagi of the Lampyridae (Coleoptera). The Coleopterists Bulletin, 16, 21–27. https://doi.org/10.5962/p.372288
McDermott, F. A. (1963). Photinoides, a new genus, with three new species (Coleoptera: Lampyridae). The Coleopterists Bulletin, 17, 84–89. https://doi.org/10.5962/p.372303
McDermott, F. A. (1964). The taxonomy of the Lampyridae (Coleoptera). Transactions of the American Entomological Society, 90, 1–72.
McDermott, F. A. (1966). Lampyridae. En W. O. Steer (Ed.), Coleopterorum catalogus (pp. 1–149). La Haya: W. Junk.
Morón M. A. (2001). Larvas de escarabajos del suelo en México (Coleoptera: Melolonthidae). Acta Zoologica Mexicana, 1, 111–130. https://doi.org/10.21829/azm.2001.8401848
Motschulsky, V. (1852). Études Entomologiques. Helsingfors: Société de Litérature Finnoise.
Motschulsky, V. (1853). Études Entomologiques. Helsingfors: Société de Litérature Finnoise.
Navarrete-Gutiérrez, D. A. y Halffter, G. (2008). Nuevos registros de escarabajos copro-necrófagos (Coleoptera: Scarabaeidae: Scarabaeinae) para México y Chiapas. Acta Zoológica Mexicana, 24, 247–250. https://doi.org/10.21829/azm.2008. 241637
Okada, Y. (1931). On the scientific names of fireflies of Japan. Zoological Magazine, 43, 130–149.
Olivier, J. E. (1885a). Catalogo des Lampyrides. Annali del Museo Civico di Storia Naturale di Genova, 22, 333–374.
Olivier, J. E. (1885b). Études sur les Lampyrides I. Annales de la Société Entomologique de France, 5, 125–154.
Olivier, J. E. (1886). Études sur les Lampyrides II. Annales de la Société Entomologique de France, 6, 201–246.
Olivier, J. E. (1888). Études sur les Lampyrides. III. Les genres à antennes flabellées. 2e Partie. Annales de la Société Entomologique de France, 8, 35–62.
Olivier, E. (1895). Essai d’une classification du genre Cratomorphus avec descriptions de deux especes nouvelles et catalogue synonymique. Bulletin de la Societe Entotnologique de France, 64, 145–148.
Olivier, J. E. (1899). Les Lampyrides typiques du Muséum. Bulletin du MuséumD’Histoire Naturalle, 5, 371–372. https://doi.org/10.5962/bhl.part.6289
Olivier, J. E. (1907). Coleoptera. Fam. Lampyridae. En P. A. Wytsman (Ed.), Genera Insectorum. Vol. VIII (pp. 1–74). Bruselas: Verteneuil & Desmet.
Olivier, J. E. (1909). Lampyride nouveaux. Reveu Scientifique du Bourbonnais et du Centre de la France, 22, 110–115.
Olivier, J. E. (1910). Lampyridae. En S. Schenkling (Ed.), Coleopterorum Catalogus: Pars 9 (pp. 1–68). Berlin: W. Junk. https://doi.org/10.1007/978-94-011-9697-0_1
Olivier, J. E. (1911). Révision des Lampyrides. Reveu Scientifique du Bourbonnais et du Centre de la France, 24, 24–112.
Pérez-Hernández, C. X., Zaragoza-Caballero, S. y Romo-Galicia, A. (2022). Updated checklist of the fireflies (Coleoptera: Lampyridae) of Mexico. Zootaxa, 5092, 291–317. https://doi.org/10.11646/zootaxa.5092.3.3
Reyes-Castillo, P. (2000). Coleoptera Passalidae de México. En F. Martín-Piera, J. J. Morrone y A. Melic (Eds.), Hacia un proyecto CYTED para el inventario y estimación de la diversidadentomológica en Iberoamérica: PrIBES-2000 (pp. 171–182). Zaragoza, España: Sociedad Entomológica Aragonesa, SEA.
Reyes-Castillo, P. (2002). Passalidae. En J. Llorente-Bousquets y J. J. Morrone (Eds.), Biodiversidad, taxonomía y biogeo- grafía de artrópodos de México: hacia una síntesis de suconocimiento,Vol III (pp. 467–4839). México D.F.: Conabio-UNAM.
Reyes-Novelo, E. y Morón, M. Á. (2005). Fauna de Coleoptera Melolonthidae y Passalidae de Tzucacab y Conkal, Yucatán, México. Acta Zoológica Mexicana, 21, 15–49. https://doi.org/10.21829/azm.2005.2121983
Say, T. (1823). Descriptions of several insects collected in the late expedition to Rocky Mountains. Journal of the Academy of Natural Sciences of Philadelphia, 3, 139–216.
Singh, R., Sharma, K. R. y Kumar, S. (2020). Insect biodiversity and its conservation. En S. V. S. Raju y K. R. Sharma (Eds.), Recent trends in insect pest management (pp. 1–16). India: AkiNik.
Silveira, L. F. L. y Mermudes, J. R. M. (2014). Systematic review of the firefly genus Amydetes Illiger, 1807 (Coleoptera: Lampyridae), with description of 13 new species. Zootaxa, 3765, 201–248. https://doi.org/10.11646/zootaxa.3765.3.1
Toledo-Ocampo, A. (2005). Marco conceptual: caracterización ambiental del golfo de México. En A. V. Botello, J. Rendón von Osten, G. Gold-Bouchot y C. Agraz-Hernández (Eds.), Golfo de México contaminación e impacto ambiental: diagnóstico y tendencias (pp. 25–52). Campeche: Universidad Autónoma de Campeche/ Universidad Nacional Autónoma de México/ Instituto Nacional de Ecología/ Semarnat/ Universidad Juárez Autónoma de Tabasco/ Universidad Istmo Americana/ Gobierno del estado de Veracruz-COEPA/ H. Ayuntamiento de Coatzacoalcos, Veracruz.
Viviani, V. R. (2001) Fireflies (Coleoptera: Lampyridae) from Southeastern Brazil: habitats, life history, and bioluminescence. Annals of the Entomological Society of America, 94, 129–145. http://dx.doi.org/10.1603/0013-8746 (2001)094[0129:fclfsb]2.0.co;2
Viviani, V. R., Rocha, M. Y. y Hagen, O. (2010). Fauna de besouros bioluminescentes (Coleoptera: Elateroidea: Lampyridae; Phengodidae, Elateridae) nos municípios de Campinas, Sorocaba-Votorantim e Rio Claro-Limeira (SP, Brasil): biodiversidade e influência da urbanização. Biota Neotro- pica, 10, 103–116. https://doi.org/10.1590/S1676-060320100 00200013
Viviani, V. R. y Santos, R. M. D. (2012). Bioluminescent Coleoptera of Biological Station of Boracéia (Salesópolis, SP, Brazil): diversity, bioluminescence and habitat distribution. Biota Neotropica, 12, 21–34. https://doi.org/ 10.1590/S1676-06032012000300001
Westwood, J. (1830). Characters of the genus of coleopterous insects, Amydetes of Hoffmansegg belonging to the family Lampyridae and descriptions of two species. Zoological Journal, 5, 62–64.
Winkler, A. (1925). Lampyridae. En A. Winkler (Ed.), Catalogus Coleopterorum Regionis Palaearcticae, Part 4 (pp. 491–495). Vienna, Austria: Albert Winkler.
Wu, C. F. (1937). Family Lampyridae. En C. F. Wu (Ed.), Catalogus Insectorum Sinensium Vol. 3 (pp. 377–385). Bei- jing: Fan Memorial Institute of Biology.
Zaragoza-Caballero, S. (1989). Trece especies nuevas de Bicellonycha Motschulsky, 1852 (Coleoptera: Lampyridae: Photurinae) de América. Anales del Instituto de Biología Universidad Nacional Autónoma de México, Serie Zoología, 69, 253–286.
Zaragoza-Caballero, S. (1993) Descripción de una especie nueva y registros nuevos del género de Pyropyga (Coleoptera: Lampyridae: Lampyrinae: Photinini) de México. Anales del Instituto de Biología de la Universidad Nacional Autónoma de México, Serie Zoología, 64, 139–151.
Zaragoza-Caballero, S. (1995). La familia Lampyridae (Coleoptera) en la Estación de Biología Tropical “Los Tuxtlas”, Veracruz, México. Publicaciones Especiales 14. Ciudad de México: Instituto de Biología, Universidad Nacional Autónoma de México.
Zaragoza-Caballero, S. (1996). Cantharoidea de México I. Nuevas especies de Photinus (Coleoptera: Lampyridae: Photinini). Anales del Instituto de Biología de la Universidad Nacional Autónoma de México, Serie Zoología, 67, 123–149.
Zaragoza-Caballero, S. (2002). Cantharoidea of Mexico V. Two new species of Pleotomus LeConte (Insecta: Coleoptera: Lampyridae: Pleotomini). Reichenbachia, 34, 325–332.
Zaragoza-Caballero, S., Cifuentes-Ruiz, P., Domínguez-León, D. E., González-Ramírez, M., Gutiérrez-Carranza, I.G., Rodríguez-Mirón, G. M. et al. (2022). Una perspectiva a la diversidad de luciérnagas mexicanas (Coleoptera: Lampyridae). En Memorias del XXV Congreso Nacional de Zoología. Ciudad de México: Sociedad Mexicana de Zoología, A.C.
Zaragoza-Caballero, S., Domínguez-León, D. E., González-Ramírez, M., López-Pérez, S., Rodríguez-Mirón, G. M., Vega-Badillo, V. et al. (2021). Nuevas especies de luciérnagas (Coleoptera: Lampyridae) de México. Dugesiana, 28, 221–231. https://doi.org/10.32870/dugesiana.v28i2.7161
Zaragoza-Caballero, S., López-Pérez, S., González-Ramírez, M., Rodríguez-Mirón, G. M., Vega-Badillo, V., Domínguez-León, D. E. et al. (2023). Luciérnagas (Coleoptera: Lampyridae) del norte-occidente de México con la descripción de 48 especies nuevas. Revista Mexicana de Biodiversidad, 94, e945028. https://dx.doi.org/10.2220lib.20078706e.2023.94.5028
Zaragoza-Caballero, S., López-Pérez, S., Vega-Badillo, V., Domínguez-León, D. E., Rodríguez-Mirón, G. M., González-Ramírez, M. et al. (2020). Luciérnagas del centro de México (Coleoptera: Lampyridae): descripción de 37 especies nuevas. Revista Mexicana de Biodiversidad, 91, e913104. https://doi.org/10.22201/ib.20078706e.2020.91.3104
Zaragoza-Caballero, S., Zurita-García, M. L. y Ramírez-Ponce, A. (2023). The on–off pattern in the evolution of the presence of bioluminescence in a derived lineage from fireflies of Mexico (Coleoptera, Lampyridae). Zoologischer Anzeiger, 302, 266–283. https://dx.doi.org/10.1016/j.jcz.20 22.12.009
C. Rocío Álamo-Herrera a, María Clara Arteaga a, *, Rafael Bello-Bedoy b
a Instituto Politécnico Nacional, Centro Interdisciplinario de Investigación para el Desarrollo Integral Regional, Unidad Durango, Sigma No. 119, Fracc. 20 de Noviembre II, 34234 Victoria de Durango, Durango, Mexico
b Universidad de Guadalajara, Centro Universitario de Ciencias Biológicas y Agropecuarias, Cátedras Conahcyt-Universidad de Guadalajara, Camino Ramón Padilla Sánchez No. 2100, 45200 Zapopan, Jalisco, Mexico
Received: 20 February 2024; accepted: 02 July 2024
Abstract
Endemic vascular plants are one of the main biodiversity indicators used to propose priority conservation areas. The richness of endemic species and corrected and weighted endemism are the most frequently used criteria, while anthropogenic or biocultural factors such as ethnobotanical value or ecological vulnerability are seldom considered. This work proposes priority conservation areas for Sinaloa, Mexico, considering the richness of its endemic species, corrected and weighted endemism, as well as ethnobotanical value, protection status, and the Priority Conservation Index (PCI). The analysis was performed in a 19 × 19 km grid and included 247 records of 78 species. The areas proposed when considering only the richness of endemic species and the weighted endemism coincided with previously known areas of high biodiversity in the state, which are areas of high collection effort and low anthropogenic impact. When considering the ethnobotanical value and protection status, the areas identified included those with greater anthropogenic impact, which contained species of biocultural and economic importance. When the PCI was used, both of these types of regions were identified. We therefore recommend this index as a better indicator to select priority areas.
Áreas prioritarias para la conservación con base en especies de plantas vasculares endémicas y sus atributos bioculturales: un estudio de caso en Sinaloa, México
Resumen
Las plantas vasculares endémicas son uno de los principales indicadores empleados para proponer áreas prioritarias de conservación. La riqueza de especies endémicas y el endemismo ponderado y corregido son frecuentemente incluidos en los análisis, mientras que aspectos antropogénicos o bioculturales como el valor etnobotánico o la vulnerabilidad ecológica son poco considerados. Este trabajo propone áreas prioritarias de conservación para Sinaloa, México, considerando su riqueza de especies endémicas, endemismo ponderado y corregido, así como el valor etnobotánico, estatus de protección e índice prioritario de conservación (IPC). El análisis se realizó en cuadrículas de 19 × 19 km e incluyó 274 registros de 78 especies. Las áreas resultantes, considerando únicamente la riqueza de especies y el endemismo ponderado, coinciden con áreas previamente conocidas por su alta biodiversidad en el estado, mismas que poseen altos esfuerzos de colectas y bajos impactos antropogénicos. Por el contrario, cuando se consideró el valor etnobotánico y el estatus de protección, las áreas prioritarias incluyen zonas con alto impacto antropogénico, pero con presencia de especies con importancia biocultural y valor económico. Empleando el IPC se identificaron ambos tipos de regiones; en consecuencia, recomendamos este índice como un mejor indicador para seleccionar áreas prioritarias.
Palabras clave: Índice de conservación; Ebenopsis caesalpinioides; Valor etnobotánico; Áreas naturales protegidas; Especies prioritarias; Stenocereus martinezii
Introduction
Plants are essential organisms for maintaining the equilibrium of ecosystems and life on Earth. They provide the vast majority of the ecosystem and subsistence services that humans need to survive, including food, medicine, shelter, oxygen, carbon capture, and soil retention. Caring for plants is therefore an act of self-preservation (Raven, 2018). However, over 50% of the terrestrial vegetation on Earth is severely or moderately altered (Bradshaw et al., 2021).
Mexico is the country with the third to fifth highest plant richness, with more than 23,000 species, half of which are endemic (Conabio, 2023a; Villaseñor & Meave, 2022). However, despite 12% of Mexican territory being decreed as Protected Natural Area, it is estimated that between 37 and 50% of the nation’s land area has been impacted by human activities and that the majority of well-conserved areas are located in desert, semi-desert, and high mountain areas that are difficult to access (González-Abraham et al., 2015; Mora, 2019). Two of the largest and most biodiverse ecosystems in the country —dry forest and temperate forest— have suffered total degradation of 37 and 26% of their cover, respectively (Conabio, 2023b; Ulloa-Ulloa et al., 2017). The main causes of this deforestation have been agriculture and infrastructure development, both in Mexico specifically and worldwide (González-Abraham et al., 2015; Laso-Bayas et al., 2022).
One of the main analytical approaches used to propose priority conservation areas is grid analysis, which identifies centers of high biodiversity (“hotspots”) using criteria such as species richness, richness of endemic species, weighted endemism (WE), presence of threatened species, diversity of specific taxa (families or genera), or phylogenetic richness (Gutiérrez-Rodríguez et al., 2022; Maassoumi & Ashouri, 2022; Mehta et al., 2023; Murillo-Pérez et al., 2022; Qin et al., 2022; Sosa & De-Nova, 2012; Vargas-Amado et al., 2020; Villaseñor et al., 2022). The richness of endemic species in particular has the advantage of using a more precise (though smaller) database than the other aforementioned criteria for grid analysis to indicate conservation priority areas.
On the other hand, other indices can be used to propose conservation priority species based on their ethnobotanical or biocultural value, or the degree of threat they face due to use (e.g., Value of Use, Frequency of Use, Conservation Index) (De Lucena et al., 2013; Dhar et al., 2000; Mehta et al., 2023; Pío-León et al., 2023). However, these indices are not usually included in grid richness analyses to select priority conservation areas. These indices weight each species’ value based on its conservation priority, such that a priority conservation area would be determined not just by the total number of species or endemism, but also by their qualities.
Pío-León et al. (2023) compiled a list of the vascular plant species of Sinaloa and proposed some priority conservation areas based on the presence of 2 or more endemic species. In addition, the authors proposed a Priority Conservation Index (PCI) for each species based on its ethnobotanical value and ecological vulnerability, considering characteristics such as its distribution, habitat, and anthropogenic threats. In this index, species with high ethnobotanical value, slow growth (arboreal habit), threatened habitat (near to agricultural zones), and small distribution area (1 or a few known localities), have higher priority than those with no known ethnobotanical value, rapid growth (herbs), inaccessible habitat (cliffs or steep slopes), and wide distribution. The PCI was calculated with the formula:
PCI= D + H + Fv + Am + VE + Vc
where D is distribution; H, habitat; Fv, life form or habit (Spanish abbreviation); Am, degree of threat to their populations; VE, ethnobotanical value, and Vc, commercial value. However, that work did not perform a grid richness analysis to incorporate the values of these indices with traditional algorithms such as WE.
In the present work, we propose priority conservation areas in Sinaloa considering 3 types of algorithms: 1) richness of endemic species, WE, and corrected weighted endemism (CWE); 2) ethnobotanical value, protection status (NOM-059-SEMARNAT-2010 or IUCN) and PCI, and 3) the combination of 1) and 2). We hypothesized that incorporating those anthropogenic and biocultural attributes would modify the priority conservation areas selected since they will not necessarily correspond to the areas of the highest species richness.
Materials and methods
Sinaloa is located in northwestern Mexico, bordered on the east by the Sierra Madre Occidental (SMO) and on the west by the Pacific Ocean. According to Wiken et al. (2011), the main level III ecoregions that compose it are: 1) Sinaloa and Sonora Hills and Canyons with Xeric Shrub and Low Tropical Deciduous Forest (SS-TDF) (50%, 27,568 km2), which is located in the low parts of the SMO; 2) Sinaloa Coastal Plain with Low Tropical Thorn Forest and Wetland (S-TF) (29%, 15,612 km2), located in the lowlands near the coast, from the south-central portion northward; and 3) SMO with Conifer, Oak, and Mixed Forests (PQF) (15.78%, 8,681 km2) in the high parts of the western slope of the SMO (Fig. 1). It has been estimated that 4,000 species of vascular plants, nearly 80 of them endemic, occur in Sinaloa (Pío-León et al., 2023; Vega-Aviña et al., 2021). However, a large part of the coastal territory has been converted to agricultural land (~ 28,000 km2) (INEGI, 2023), resulting in severely fragmented habitats.
The database was based on the file generated by Pío-León et al. (2023) with some updates (Table 1). We incorporated recently described species (until October 2023) and removed species and collections that lacked reliable geographic coordinates. In addition, we prepared a matrix of weighted values considering the ethnobotanical value (E; 1 = documented use, 0 = no documented use), inclusion in a risk category (R) by the NOM-059-SEMARNAT-2010 (Semarnat, 2019) or IUCN (2023) (1 = included in at least 1 category, 0 = not included), and the value of the Conservation Priority Index (PCI), using the values reported by Pío-León et al. (2023) (Table 1). For the PCI, we assigned values according to their quartile position: 4 (upper quartile), 3 (second quartile), 2 (third quartile), and 1 (lower quartile). From these data, we formed 3 analysis groups: 1) biocultural value (E+R; 0 to 2), 2) PCI value (1 to 4), and 3) PCI + R (1 to 5).
Figure 1. Sinaloa state, Mexico, its main ecoregions level III (Wiken et al., 2011), and the regions of endemism according to Pío-León et al. (2023). Ecoregions: PQF = Conifer, Oak, and Mixed Forests of the Sierra Madre Occidental; SD = Sonoran Desert; SS-TDF = Sinaloa and Sonora Hills and Canyons with Xeric Shrub and Low Tropical Deciduous Forest; S-TF = Sinaloa Coastal Plain with Low Tropical Thorn Forest and Wetlands. Regions of endemism: 1 = Maviri-Topolobampo, 2 = Surutato region, 3 = Cerro Tecomate, 4 = Cerro Colorado, 5 = Sierra Tacuichamona, 6 = Meseta de Cacaxtla, 7 = Sierra de Concordia.
Table 1
List of endemic species of Sinaloa considered for this study and their scores by attributes. E = Ethnobotanical value; R = species with conservation status by the NOM-059-SEMARNAT-2010 or the IUCN (risk); PCI = Priority Conservation Index according to their quartile position.
Especies
E
R
PCI
E+R
PCI+R
Acourtia gentryi L. Cabrera
0
0
2
0
2
Acourtia sinaloana B.L. Turner
0
0
1
0
1
Ageratina concordiana B.L. Turner
0
0
2
0
2
Albizia ortegae Britton & Rose
0
0
3
0
3
Aloysia nahuire A.H. Gentry & Moldenke
1
0
4
1
5
Anemia brandegeei Davenp.
0
0
1
0
1
Arachnothryx sinaloae Borhidi
0
0
2
0
2
Bastardiastrum tarasoides Fryxell
0
0
2
0
2
Bastardiastrum wissaduloides (Baker f.) Bates
0
0
1
0
1
Bletia santosii H. Ávila, J.G. González & Art. Castro
Salvia beltraniorum J.G.González, Pío-León & Art.Castro
0
0
2
0
2
Salvia trichostephana Epling
0
0
2
0
2
Sedum copalense Kimnach
0
0
1
0
1
Stenocereus martinezii (J.G. Ortega) Bravo
1
1
4
2
5
Stevia concordiana B.L. Turner
0
0
2
0
2
Sysyrinchium jacquelineanum Art.Castro, H. Ávila & J.G. González
0
0
1
0
1
Tibouchina thulia Todzia
0
0
1
0
1
Tillandsia mazatlanensis Rauh
0
0
2
0
2
Tillandsia occulta H. Luther
0
0
2
0
2
Verbesina microcarpa S.F. Blake
0
0
2
0
2
Verbesina ortegae S.F. Blake
0
0
2
0
2
Verbesina sinaloensis B.L. Turner
0
0
2
0
2
Richness of endemism (SR), weighted endemism (WE), and corrected weighted endemism (CWE). The richness of endemic species was quantified in 19 × 19 km cells (361 km2), dividing Sinaloa into 195 cells. The cell size used was determined according to the criterion of Oyala (2020). Endemic species richness was quantified as the total number of endemic species whose distribution includes the cell. Endemism was evaluated using the WE and CWE indices. The WE score for each cell was obtained by summing, for each species present in the cell, the inverse of the number of cells in which the species occurs; thus, a high WE value indicates cells that contain more species with restricted distributions (i.e., that are found in few other cells), while low WE values indicate cells that mostly contain widely distributed species (i.e., species that are also present in other cells). The CWE is similar, but additionally corrects for potential biases due to differences in overall richness by dividing the value of the WE by the number of species present in the cell (Laffan & Crisp, 2003). The 3 parameters (SR, WE, and CWE) were estimated in the program Biodiverse v.2.0 (Laffan et al., 2010). Geoprocessing of the data was performed in QGIS 3.4.8 (QGIS.org, 2019).
Endemism weighted by biocultural attributes and PCI. In addition to SR, WE, and CWE analysis, endemism weighted by biocultural attributes was evaluated using 2 sets of attribute/parameter combinations, each resulting in 3 maps, 9 in total (Fig. 2). The first set included the species richness plus the biocultural values, resulting in the following 3 combinations: species richness plus biocultural value (SR+E+R), species richness plus PCI (SR+PCI), and PCI plus the risk category (SR+PCI+R). The second set did not consider species richness, resulting in the combinations of biocultural value (E+R), PCI, and PCI+R. For this second set of analyses, only species that fulfilled the relevant criteria were included (e.g., the E+R combination included only species that had ethnobotanical value and are included in a risk category). As such, in the first set of maps, a priority conservation area depended by the number of species present and their qualities (e.g., species with ethnobotanical value or species with protected status), while in the second only the species’ qualities were considered.
The final priority conservation areas were based on the consensus map of the 9 different endemism maps. The consensus areas took into account only the cells that had the highest possible value of the relevant variables in at least 1 of the 9 previously generated endemism maps. The consensus values were obtained by summing the number of times each cell had the highest possible value in each of the endemism maps, such that the highest possible consensus value was theoretically 9 (the cell had the highest possible value in all maps), and the minimum value was 1 (maximal value in only 1 map). The consensus map was also overlayed with Protected Natural Areas and Priority Terrestrial Regions, land use, and bioclimatic corridors.
Results
Occurrence, conservation (risk) status, and ethnobotanical uses of the endemic species of Sinaloa. The database contained 247 records of 78 species, 30 families, and 61 genera. For 48 of the genera (78.7%), only 1 species of the genus was present. The majority of the records were distributed in the central to the southern region of the state, near the coast, in the Meseta de Cacaxtla Natural Protected Area and the area between the former and Sierra de Tacuichamona, as well as in the Concordia and Surutato mountains of the SMO (Fig. 3; regions 6, 5, and 2, in Figure 1). The 2 level III ecoregions best represented were SS-TDF (166 records/ 40 species) and the PQF (53/ 37), followed by the S-TF (17/ 8) (Fig. 3a). Sixty-nine percent of the records fell outside of the polygons of Protected Natural Areas or Priority Terrestrial Conservation Regions (Fig. 3B). Sixty-eight percent of the species (53) were known from a single locality (either a single collection or collections from locations that are very close to each other).
Figure 2. Flowchart of the endemism analysis to select priority areas in Sinaloa, Mexico.
Only 4 species (Cnidoscolus sinaloensis, Ebenopsis caesalpinioides, Molinadendron sinaloense, and Stenocereus martinezii) of the 78 analyzed are found in some risk category (Table 1). All 4 are considered endangered (EN) by the IUCN, while only Stenocereus martinezii is included in NOM-059-SEMARNAT-2010, under the category of special protection (Pr). Only 3 species have well-documented ethnobotanical uses: Aloysia nahuire (aromatic and medicinal tea), Ebenopsis caesalpinioides (edible seeds, occasional commercial value), and Stenocereus martinezii (edible fruits, commercial value). One additional species, Lupinus gentryianus, was noted in the type collection to be used as an anti-parasitic for livestock; however, this plant is only known from that locality, and this use has not since been confirmed, so it was not considered.
The different patterns of endemism are shown in Figure 4. The overall richness of endemism (Fig. 4A) showed 2 main areas —1 in the northern part of the Sierra de Concordia (region 7, Fig. 1) and the other in the western part of the Sierra de Tacuichamona (region 5, Fig. 1)— as well as 3 secondary areas located in the Sierra de Surutato (region 2, Fig. 1), Cerro Colorado (region 4, Fig. 1), and the southern part of the Sierra de Concordia. The WE (Fig. 4B) showed a similar pattern in richness but with an increase in the priority levels of the Sierra de Surutato and a decrease by 1 level for the Tacuichamona and Cerro Colorado. The CWE (Fig. 4C) showed several priority areas more scattered across the state than the WE, mainly in the SMO, corresponding to the majority of the species known from a single locality; however, compared with WE, there was a greater concentration of high-priority cells toward the northern part of the state, near southern Sonora, in the area around the Sierra de Barobampo and Hills of Topolobampo (region 1, Fig. 1).
Figure 3. Records of endemic species in Sinaloa overlayed onto: level III ecoregions (Wiken et al., 2011; definitions in Figure 1) (A) and Protected Natural Areas (PNA) and Priority Terrestrial Regions (B). Categories of Protected Natural Areas: PNAS = state; PNAM = municipal; PNAF = federal; PTR = Priority Terrestrial Regions.
Figure 4. Endemism areas of vascular plants in Sinaloa, Mexico, according to the calculated index values (A-I): SR = endemic species richness; WE = weighted endemism; CWE = corrected weighted endemism; E = ethnobotanical value; R = species with protection status; PCI = Priority Conservation Index.
Figure 5. Consensus priority conservation areas (PAC) in the state of Sinaloa (A-D). Consensus map (A) superimposed to: Protected Natural Areas/Priority Terrestrial Regions (B), land use (C), and bioclimatic corridors (D). Categories of Protected Natural Areas: PNAS = state; PNAM = municipal; PNAF = federal; PTR = Priority Terrestrial Regions.
The addition of the ethnobotanical attributes to the protection status and richness of endemic species (SR+E+R) (Fig. 4D) showed an increase in the values for the areas from the Meseta de Cacaxtla (region 6, Fig. 1) to Sierra de Tacuichamona, but a decrease in the zones of the SMO. Adding the Priority Conservation Index to the richness (SR+PCI) (Fig. 4E) showed an increase and homogenization of the priority in all of the aforementioned regions, while adding protection status (SR+PCI+R) (Fig. 3F) did not significantly modify the areas of importance.
Finally, when considering only the ethnobotanical value plus the protection status (E+R), without considering species richness (i.e., eliminating the species that did not have those attributes), the zone of highest priority was concentrated nearly exclusively in the southern part of the state, within and adjacent to the Meseta de Cacaxtla (Fig. 3G). When considering PCI only or PCI plus risk category, there was again a homogenization of the high priority for the 2 mountainous areas (Surutato and Concordia), Meseta de Cacaxtla, Tacuichamona, and surrounding areas (Fig. 4H, I).
The priority conservation areas, as defined by the consensus among the 9 maps analyzed, were composed of 7 polygons grouped into 3 categories (Fig. 5): 4 cells with a value of 6 (of the maximum possible score of 9) in the northern part of the Sierra de Concordia, northwestern part of Sierra Surutato, Meseta de Cacaxtla, and Sierra de Tacuichamona; 1 with a value of 4 in the area between the Meseta de Cacaxtla and Tacuichamona; and 2 with a value of 3 in the southern part of the Sierra de Concordia and southeastern part of the Sierra de Surutato (Fig. 5A). However, since the 3 areas with a value of 3 or 4 were contiguous with areas with a value of 6, 4 priority conservation areas were proposed: Sierra de Surutato (Fig. 45-a), Sierra de Tacuichamona (Fig. 5A-b), Meseta de Cacaxtla (Fig. 5A-c), and Sierra de Concordia (Fig. 5A-d).
Superimposing the consensus map with the map of existing Protected Natural Areas (Fig. 5B) showed that these 4 consensus areas fall partially within protected areas: 1 federal (Área de Protección de Flora y Fauna Meseta de Cacaxtla, Fig. 5B-c), 1 state (Sierra de Tacuichamona, Fig. 5B-b), and 2 municipal (Reserva Chara Pinta in the Sierra de Concordia and Reserva de Surutato, Fig. 5B-d, B-a, respectively). The Sierra de Concordia also includes part of the terrestrial priority region Río Presidio. Regarding land use, the 2 consensus areas in the SMO were found in mixed pine-oak forest with low impact of agricultural activity (Fig. 5C-a, C-d), while the other 2, located in the Sinaloa and Sonora Hills and Canyons with Xeric Shrub and Low Tropical Deciduous Forest ecoregion, present moderate to high impact from irrigated and rainfed agriculture (Fig. 5C-b, C-c). When considering biological corridors, only the priority area in the Meseta de Cacaxtla overlapped with a bioclimatic corridor.
Discussion
The analyses of richness of endemic species and WE showed higher conservation priority in areas that were previously identified as having high endemism (Pío-León et al., 2023), low anthropogenic impact from agriculture, and which have also historically been subject to concentrated collection efforts (Sierra de Surutato and Sierra de Concordia) (Ávila-González et al., 2019; Gentry 1946; Vega-Aviña et al., 2021). On the other hand, the regions defined based on CWE reflected a high number of species known from a single locality, which could indicate the presence of small islands of endemism in the state or low collection effort. In contrast, the inclusion of the ethnobotanical criteria and protection status (E+R) shows a different pattern from species richness, concentrating high priority scored in an area of transition between the coastal plain of Sinaloa and the hills of Sinaloa and Sonora, near the coast in the center-south of the state. These regions correspond to the transition and ecotone between low tropical deciduous forest and thorn forest, which are strongly impacted by anthropogenic activities (irrigated and rainfed agriculture), suggesting that the species with the highest ethnobotanical importance and with protected status (IUCN or NOM-053-SEMARNAT-2010) are found near human activities that require stronger conservation attention than those located in the high parts of the SMO, where the threats are less severe.
The priority conservation areas indicated by the consensus map (Fig. 5) include the regions with the highest richness of endemic species plus the areas with the highest number of species with biocultural importance. These consensus areas are practically the same as those that were assigned the highest priority values when considering only the Priority Conservation Index (PCI) for each species; as such, this index was the most robust single indicator for selecting priority conservation areas. This index combines ethnobotanical parameters such as species’ uses and economic value with ecological parameters such as their distribution, habit, and habitat. Thus, it covers a broad range of criteria that are useful for defining priority species or areas for conservation.
All the priority conservation areas defined by the consensus map (Fig. 5) except 1 included part of a Protected Area polygon, although only 1 was under federal jurisdiction (Meseta de Cacaxtla). The only cell that did not overlap with a Protected Natural Area was adjacent to the Meseta de Cacaxtla, and it was the cell with the largest area of agriculture. This area is important because it contains the 2 species with the highest ethnobotanical value (Ebenopsis caesalpinioides and Stenocereus martinezii), which are also found in a risk category according to the IUCN and NOM-053-SEMARNAT-2010. This area therefore urgently requires conservation and restoration activities, especially for E. caesalpinioides, whose distribution is limited to the area surrounding this cell (Pío-León et al., 2023). Specifically, we recommend avoiding the conversion from rainfed agriculture to technified irrigated agricultural activities, since these are generally more aggressive toward native vegetation. This area is also important because it is located at the transition between lowland deciduous forest and thorn forest of Sinaloa, which could reflect high endemism, in addition to potentially serving as part of the bioclimatic corridor connecting the 2 most important terrestrial ANPs in the state, Meseta de Cacaxtla (federal) and Sierra Tacuichamona (state).
In the present study, the incorporation of the species’ biocultural parameters modified the priority areas for conservation compared to the areas selected when considering only the richness of endemic species, weighted endemism, or corrected weighted endemism. Specifically, the richness analysis identified priority areas in the mountainous and high-diversity regions of Sinaloa, while the ethnobotanical and ecological factors incorporated zones near the coast that have higher anthropogenic impact. The Conservation Priority Index identified all of these priority regions; for this reason, we propose it as a complete and robust index for identifying priority conservation areas. At the state level, we recommend that conservation and restoration actions be implemented in the area of transition between the low tropical deciduous forest and thorn forest. This area simultaneously presents the highest impact of anthropogenic activities and harbors the most important Sinaloa endemic species in terms of biocultural value and protection status —the “pitaya de Sinaloa” (Stenocereus martinezii) and the “guampinola” or “frutilla” (Ebenopsis caesalpinioides). This area should be considered a priority for both conservation and restoration, which would not have been identified as a priority if only the richness of endemism or CWE had been analyzed.
Acknowledgements
The first author is grateful to the Consejo Nacional de Humanidades, Ciencia y Tecnología (Conahcyt) for the grant awarded as part of the Estancias Posdoctorales por México program (I1200/320/2022). We also thank Jorge David López Pérez for his suggestions on data analysis, and the two anonymous reviewers for their comments and suggestions that improved our manuscript.
References
Ávila-González, H., González-Gallegos, J. G., López-Enríquez, I. L., Ruacho-González, L., Rubio-Cardoza, J., & Castro-Castro, A. (2019). Inventario de las plantas vasculares y tipos de vegetación del Santuario El Palmito, Sinaloa, México. Botanical Sciences, 97, 789–820. https://doi.org/10.17129/botsci.2356
Bradshaw, C. J. A., Ehrlich, P. R., Beattie, A., Ceballos, G., Crist, E., Diamond, J. et al. (2021). Underestimating the challenges of avoiding a ghastly future. Frontiers in Conservation Sciences, 1, 615419. https://doi.org/10.3389/fcosc.2020.615419
Conabio (Comisión Nacional para el Conocimiento y Uso de la Biodiversidad). (2023a). México megadiverso. Comisión Nacional para el Conocimiento y Uso de la Biodiversidad, Ciudad de México. Retrieved 01 December, 2023 from: https://www.biodiversidad.gob.mx/pais/quees
Conabio (Comisión Nacional para el Conocimiento y Uso de la Biodiversidad). (2023b). Ecosistemas de México. Comisión Nacional para el Conocimiento y Uso de la Biodiversidad, Ciudad de México. Retrieved 01 December, 2023 from: https://www.biodiversidad.gob.mx/ecosistemas/ecosismex
Dhar, U., Rawal, R. S., & Upreti, J. (2000). Setting priorities for conservation of medicinal plants ––a case study in the Indian Himalaya. Biological Conservation, 95, 57–65. https://doi.org/10.1016/S0006-3207(00)00010-0
De Lucena, R. F., Lucena, C. M., Araújo, E. L., Alves, Â. G., & Albuquerque, U. P. D. (2013). Conservation priorities of useful plants from different techniques of collection and analysis of ethnobotanical data. Anais da Academia Brasileira de Ciências, 85,169–186. https://doi.org/10.1590/S0001-37652013005000013
Gentry, H. S. (1946). Notes on the vegetation of Sierra Surotato in northern Sinaloa. Bulletin of the Torrey Botanical Club, 73, 451–462. https://doi.org/10.2307/2481592
González-Abraham, C., Ezcurra, E., Garcillán, P. P., Ortega-Rubio, A., Kolb, M., & Bezaury Creel, J. E. (2015). The human footprint in Mexico: physical geography and historical legacies. Plos One, 10, e0121203. https://doi.org/ 10.1371/journal.pone.0121203
Gutiérrez-Rodríguez, B. E., Vásquez-Cruz, M., & Sosa, V. (2022). Phylogenetic endemism of the orchids of Megamexico reveals complementary areas for conservation. Plant Diversity, 44, 351–359. https://doi.org/10.1016/j.pld.20 22.03.004
IUCN (International Union for Conservation of Nature). (2023). The IUCN Red List of Threatened Species. Version 2022-2. Retrieved 01 December, 2023 from: https://www.iucnredlist.org
INEGI (Instituto Nacional de Estadística, Geografía e Informática). (2023). Censo agropecuario 2022. Resultados definitivos Sinaloa. Retrieved 25 January, 2024 from: https://www.inegi.org.mx/
Laso-Bayas, J. C., See, L., Georgieva, I., Schepaschenko, D., Danylo, O., Dürauer, M. et al. (2022). Drivers of tropical forest loss between 2008 and 2019. Scientific Data, 9, 1–8. https://doi.org/10.22022/nodes/06-2021.122
Laffan, S. W., & Crisp, M. D (2003) Assessing endemism at multiple spatial scales, with an example from the Australian vascular flora. Journal of Biogeography, 30, 511–520. https://doi.org/10.1046/j.1365-2699.2003.00875.x
Laffan, S.W., Lubarsky, E., & Rosauer, A. F. (2010) Biodiverse, a tool for the spatial analysis of biological and related diversity. Ecography, 33, 643–647. https://doi.org/10.1111/ j.1600-0587.2010.06237.x
Maassoumi, A. A., & Ashouri, P. (2022). The hotspots and conservation gaps of the mega genus Astragalus (Fabaceae) in the Old-World. Biodiversity and Conservation, 31, 2119–2139. https://doi.org/10.1007/s10531-022-02429-2
Mehta, P., Bisht, K., Sekar, K. C., & Tewari, A. (2023). Mapping biodiversity conservation priorities for threatened plants of Indian Himalayan Region. Biodiversity and Conservation, 32, 2263–2299. https://doi.org/10.1007/s10531-023-02604-z
Mora, F. (2019). The use of ecological integrity indicators within the natural capital index framework: The ecological and economic value of the remnant natural capital of México. Journal for Nature Conservation, 47, 72–92. https://doi.org/10.1016/j.jnc.2018.11.007
Murillo-Pérez, G., Rodríguez, A., Sánchez-Carbajal, D., Ruiz-Sánchez, E., Carrillo-Reyes, P., & Munguía-Lino, G. (2022). Spatial distribution of species richness and endemism of Solanum (Solanaceae) in Mexico. Phytotaxa, 558, 147–177. https://doi.org/10.11646/phytotaxa.558.2.1
Oyala, V. (2020). Sistemas de Información Geográfica. Retrie- ved on December 25th, 2024 from: http://volaya.es/writing
Pío-León, J. F., González-Elizondo, M., Vega-Aviña, R., González-Elizondo, M. S., González-Gallegos, J. G., Salomón-Montijo, B. et al. (2023). Las plantas vasculares endémicas del estado de Sinaloa, México. Botanical Sciences, 101, 243–269. https://doi.org/10.17129/botsci.3076
QGIS Development Team (2019) Geographic Information System, version 3.4.8. QGIS Association. Retrieved 11 December, 2019 from: http://www.qgis.org
Qin, F., Xue, T., Yang, X., Zhang, W., Wu, J., Huang, Y. et al. (2022). Conservation status of threatened land plants in China and priority sites for better conservation targets: distribution patterns and conservation gap analysis. Biodiversity and Conservation, 31, 2063–2082. https://doi.org/10.1007/s10531-022-02414-9
Raven, P. H. (2018). Saving plants, saving ourselves. Plants People Planet, 1, 8–13. https://doi.org/10.1002/ppp3.3
Semarnat (Secretaría de Medio Ambiente y Recursos Naturales). (2019). Norma Oficial Mexicana NOM-059-SEMARNAT-2010. Protección ambiental-Especies nativas de México de flora y fauna silvestres-Categorías de riesgo y especificaciones para su inclusión, exclusión o cambio-Lista de especies en riesgo. Diario Oficial de la Federación, Ciudad de México. Retrieved 01 December, 2023 from: https://www.dof.gob.mx/nota_detalle.php?codigo=5578808&fecha=14/11/2019#gsc.tab=0
Sosa, V., & De-Nova, J. (2012). Endemic angiosperm lineages in Mexico: hotspots for conservation. Acta Botanica Mexicana, 100, 293–315. https://doi.org/10.21829/abm100.2012.38
Ulloa-Ulloa, C., Acevedo-Rodríguez, P., Beck, S., Belgrano, M. J., Bernal, R., Berry, P. E. et al. (2017). An integrated assessment of the vascular plant species of the Americas. Science, 358, 1614–1617. https://doi.org/10.1126/science.aao 0398
Vargas-Amado, G., Castro-Castro, A., Harker, M., Vargas-Amado, M. E., Villaseñor, J. L., Ortiz, E. et al. (2020). Western Mexico is a priority area for the conservation of Cosmos (Coreopsideae, Asteraceae), based on richness and track analysis. Biodiversity and Conservation, 29, 545–569. https://doi.org/10.1007/s10531-019-01898-2
Vega-Aviña, R., Vega-López, I. F., & Delgado-Vargas, F. (2021). Flora nativa y naturalizada de Sinaloa. Culiacán, Sinaloa: Universidad Autónoma de Sinaloa.
Villaseñor, J. L., & Meave, J. A. (2012). Floristics in Mexico today: insights into a better understanding of biodiversity in a megadiverse country. Botanical Sciences, 100, S14–S33. https://doi.org/10.17129/botsci.3050
Villaseñor, J. L., Ortiz, E., & Hernández-Flores, M. M. (2022). The vascular plant species endemic or nearly endemic to Puebla, Mexico. Botanical Sciences, 101, 1207–1221. https://doi.org/10.17129/botsci.3299
Wiken, E., Jiménez-Nava, F., & Griffith, G. (2011). North American Terrestrial Ecoregions-Level III. Montreal, Canada: Commission for Environmental Cooperation. Retrieved Jul 17, 2021 from: http://www3.cec.org/islando ra/en/item/10415-north-american-terrestrial-ecoregionsle vel-iii
Fernanda Chávez-Samayoa a, Jaime Antonio Escoto-Moreno a, Edmundo González-Santillán b, *
a Universidad Autónoma de Aguascalientes, Colección Zoológica, Av. Universidad 940, Ciudad Universitaria, 20100 Aguascalientes, Aguascalientes, Mexico
b Universidad Nacional Autónoma de México, Instituto de Biología, Departamento de Zoología, Colección Nacional de Arácnidos, Tercer Circuito Universitario s/n, Ciudad Universitaria, 04510 Ciudad de México, Mexico
Received: 18 October 2023; accepted: 19 February 2024
Abstract
The scorpion fauna of the state of Aguascalientes was revised based on specimens deposited in scientific collections and fieldwork. We evaluated the completeness of the scorpion species inventory of the Colección Zoológica of the Universidad Autónoma de Aguascalientes (CZUAA) based on nonparametric estimators. The results indicate that the number of species increased from 11 to 13, recording for the first time Chihuahuanus glabrimanus (Sissom & Hendrixson, 2005), a psammophilic species, and Centruroides balsasensis Ponce-Saavedra and Francke, 2004, a medically relevant species for public health. Finally, an identification key to the scorpion species of Aguascalientes is provided and a recount of ecological and biological traits of the species herein is studied.
Keywords: Chihuahuanus glabrimanus; Centruroides balsasensis; Species list; Parthenogenesis; Scientific collections
Análisis de riqueza y completitud de la escorpiofauna de Aguascalientes, México, con una clave de identificación de especies
Resumen
Se revisó la escorpiofauna del estado de Aguascalientes con base en ejemplares depositados en colecciones científicas y trabajo de campo. Se evaluó la completitud del inventario de especies de escorpiones de la Colección Zoológica de la Universidad Autónoma de Aguascalientes (CZUAA) mediante métodos no paramétricos. Los resultados indican un aumento del inventario de 11 a 13 especies; se registra por primera vez a la especie psamofílica Chihuahuanus glabrimanus (Sissom y Hendrixson, 2005) y la especie de importancia para la salud pública Centruroides balsasensis Ponce-Saavedra y Francke, 2004. Finalmente, se brinda una clave de identificación de especies de escorpiones de Aguascalientes, así como un recuento de caracteres ecológicos y biológicos de las especies estudiadas.
With an area of 5,589 km2 (INEGI, 2019), the state of Aguascalientes lies in the central region of Mexico. It is the fourth smallest state in Mexico with 11 municipalities (Sandoval-Ortega et al., 2017; Sigala-Rodríguez & Greene, 2009). Despite this overshadowing territory compared to other states in Mexico, such as Chihuahua, Aguascalientes comprises 3 biogeographic provinces: Sierra Madre Occidental (SMO), Chihuahuan Desert (CD), and Pacific Lowlands (PL) (Morrone et al., 2017) (Fig. 1). Three general types of climatic groups are associated with predominant plant communities in the state: arid zone covered by xerophytic vegetation, temperate zone with oak forest or mixed forests, and the tropical zone covered by secondary subtropical vegetation (Siqueiros-Delgado et al., 2017).
Although formal scorpion fauna studies have been done in the state, the first mention of scorpions distributed in Aguascalientes was presented by Hoffmann (1931, 1932, 1936), who listed 7 species in total: Centruroides infamatus C. L. Koch, 1844; Chihuahuanus bilineatus Pocock, 1898; Diplocentrus zacatecanus Hoffmann, 1931; Mesomexovis spadix Hoffmann, 1931; Paruroctonus gracilior Hoffmann, 1931; Thorellius intrepidus Thorell, 1876 and Vaejovis nigrescens Pocock, 1898. Later, several authors contributed to the knowledge of the species list (Contreras-Félix et al., 2015; Chávez-Samayoa et al., 2022; Escoto-Rocha & Delgado-Zaldívar, 2008), which is currently composed of 11 species. At present, there are no published identification keys for the scorpions of Aguascalientes, therefore researchers must rely on other works (González-Santillán & Prendini, 2013, 2018; Ponce-Saavedra & Francke, 2013a; Ponce-Saavedra et al., 2016), where part of the scorpion fauna is described and keyed.
Figure 1. Biogeographic provinces of the state of Aguascalientes (Morrone, 2017). Chihuahuan Desert (CD) is highlighted in blue, Pacific Lowlands (PL) in yellow, and Sierra Madre Occidental (SMO) in green.
Figure 2. Chelicerae of C. infamatus (A), M. spadix (B) and P. gracilior (C). Abbreviations: b, basal; d, distal; ed, external distal; id, internal distal; m, medial, sd, subdistal, vm, ventral median.
Established in 1978, the Colección Zoológica of the Universidad Autónoma de Aguascalientes (CZUAA), preserves specimens collected during the formation of biology students (De la Riva-Hernández, 2014). The first scorpion collected and deposited in the CZUAA dates to 1979. Subsequently, numerous biology students, professors, and the public have contributed with samples recording the state’s species richness. Escoto-Rocha and Delgado-Zaldívar (2008) presented a species list derived from the study of the specimens deposited in the CZUAA, where they listed 9 species. In this contribution we update the knowledge of the scorpion species distributed in Aguascalientes and provide an identification key at the species and genus levels for the first time. Furthermore, an evaluation of the alpha diversity using non-parametric estimators is computed. Although, examined material deposited in the CZUAA is the primary source, we studied scorpions deposited in the Colección Nacional de Arácnidos (CNAN) to corroborate taxonomical identities.
Materials and methods
To determine the species taxonomic identity, the following identification keys and species descriptions were used: Buthidae: Ponce-Saavedra and Francke (2013a), Ponce-Saavedra et al. (2016); Diplocentridae: Santibáñez-López and Francke (2013); Vaejovidae: Contreras-Félix and Francke (2019), González-Santillán and Prendini (2013, 2018), Sissom and González-Santillán (2004), Sissom and Hendrixson (2005). Digital microphotographs were taken with a Leica EZ4HD stereoscope and habitus with a Nikon Z7. All photographic edition was made with Adobe Photoshop CS5.1.
Nomenclature and homology follow González-Santillán and Prendini (2013), except for cheliceral dentition (Sissom, 1990). We proposed a name to identify a distinctive but unnamed denticle of the family Buthidae as the ventral medial denticle of the cheliceral fixed finger (Fig. 2A). This denticle lies between the distal and subdistal denticles but on the ventral surface. This denticle is a diagnostic character —and probably a synapomorphy— for the family Buthidae (Sissom, 1990) and thus is only present in the 2 species of the genus Centruroides.
Several authors have used museum and collection label data to estimate species richness through nonparametric estimators, overcoming the fact that this kind of data suffers from a standardized sampling effort, but at the same time, recognizing the value of this information as an estimate of inventory completeness (Basualdo, 2011; Beck & Kitching, 2007; Fattorini, 2013; Guralnick & Van Cleve, 2005; Meier & Dikow, 2004; Petersen & Meier, 2003; Petersen et al., 2003; Soberón-Mainero et al., 2000).
Collection records deposited in the CZUAA were georeferenced remotely using Google Earth Pro 7.3.4.8248 and, in some cases, directly registered during fieldwork using a Garmin eTrexH GPS. We generated 2 incidence databases, one considering spatial and another temporal species accumulation. For the spatial perspective, we created a layer with a grid of 0.025° × 0.025° —approximately 10 × 10 km— cells, recording the appropriated incidence (0 = absence, 1 = presence) per species (Appendix 1). For the temporal species accumulation, we divided the species incidence into classes of 5 years from 1979 to 2022 (Appendix 2). Diversity analyses were conducted using the function specpool of the R package vegan (Oksanen et al., 2019). Centruroides balsasensis was excluded from this analysis because we consider it an introduced species. Distributional maps with an elevation model (Fick & Hijmans, 2017) were generated with QGIS 3.16.
Acronyms used in the records are as follow: AMCC, Ambrose Monell Cryocollection at AMNH; AMNH, American Museum of Natural History; BM, British Museum; CAS ARA, California Academy of Sciences, Arachnid collection; CIBUAEM, Colección de Entomología del Laboratorio de Parasitología Vegetal del Centro de Investigaciones Biológicas de la Universidad Autónoma del Estado de Morelos; CNAN-SC, Colección Nacional de Arácnidos, Scorpion Collection; CZUAA SCO, Colección Zoológica de la Universidad Autónoma de Aguascalientes, Scorpion Collection; ENCB IPN, Escuela Nacional de Ciencias Biológicas, Instituto Politécnico Nacional; FSCA, Florida State Collection of Arthropods; GL, Graeme Lowe’s personal collection; INDRE, Instituto Nacional de Diagnóstico y Referencia Epidemiológica; JCC, J. C. Cockendolpher’s personal collection; MES, Michael E. Soleglad’s personal collection; MNHN, Museum National d´ Historie Naturelle; MWSU, Midwestern State University; SAM, Indiana University School of Medicine; SAS, S. A. Stockwell’s personal collection; TMM, Texas Memorial Museum; TOR, Museo ed Instituto di Zoologia Sistematica della Universita di Torino, Italy; UAQ, Universidad Autónoma de Querétaro; UCLB, University of California Long Beach; VF, Victor Fet’s personal collection; WDS, W. D. Sissom’s personal collection; WTAMU, West Texas A & M University. Notice that some records from the literature are devoid of numerical code because they were not found in the CNAN despite the authors listing them in their publications.
Results
We examined 934 specimens and identified 13 species corresponding to the families Buthidae, Diplocentridae, and Vaejovidae (Table 1). The results of analyses of non-parametric estimators using spatial and temporal approaches reflected similar completeness of Aguascalientes biodiversity (Table 2). Under the 10 × 10 km grid approach, all estimators produced coverage of over 80%, the lowest for first order Jackknife at 85.7% and the highest for Jackknife 2 at 100%. On the other hand, the estimation constructed through the 5-year classes lays a higher percentage of coverage, the lowest for Bootstrap at 92.3% and the highest Jackknife 2 at 100%. The overall most conservative estimation was 85.7%, and the least conservative one was 100%.
Nonparametric estimators of species richness. Abbreviations as follows: Boot = bootstrap estimator; Boot.se = standard error for bootstrap estimator; Chao = Chao estimator; Chao.se = standard error for chao estimator; DB = database, (1) 10 × 10 km grids as spatial units, (2) 5 years classes; Jack1 = first order Jackknife; Jack1.se = standard error for first order Jackknife; Jack2 = second order Jackknife; N = number of units; Sp = number of observed species.
DB
Sp.
Chao
Chao.se
Jack1
Jack1.se
Jack2
Boot
Boot.se
N
1
12
12.24
0.71
12.98
0.98
12.04
12.72
0.77
61
2
12
12
0
12
0
10.63
12.24
0.72
9
Figure 3. Habitus of female of C. balsasensis, scale = 1 cm.
Holotype specimen: was not localized in the CNAN. The only available information from the original description is as follow: “El holotipo es un macho adulto recolectado en Churumuco, municipio del mismo nombre en Michoacán, México el 08 de junio de 2000 por Erwin P. Miranda López y será depositado en la Colección Nacional de Arácnidos del Instituto de Biología de la Universidad Nacional Autónoma de México (CNA-IBUNAM)”.
Records from literature: Córdova-Athanasiadis (2005): México, Morelos, Municipality of Amacuzac: Huajuntlán, 18°36’36.00” N, 99°25’48.00” W, 1,510 m, 4-09-2004, M. Córdova, A. Gotilla, 5 ♀, CNAN-SC106. San Gabriel de las Palmas, 18°36’36.00” N, 99°21’00.00” W, 1,420 m, 4-09-2004, M. Córdova, A. Gotilla, 8 ♀, CNAN-SC131. Municipality of Axochiapan: Quebrantadero, 18°31’48.00” N, 98°47’24.00” W, 1,280 m, 2-09-2003, M. Córdova, D. Morán, 8 ♀, 6 ♂, 2 juv., CNAN-SC105. Municipality of Coatlán del Río: El Oyanco, 18°43’48.00” N, 99°25’48.00” W, 1,022 m, 6-08-2004, M. Córdova, O. Sotelo, 17 ♀, 6 ♂, CNAN-SC132. Municipality of Emiliano Zapata: Temimilcingo, 18°44’24.00” N, 99°09’00.00” W, 1,060 m, 28-04-2004, M. Córdova, A. Jaimes, 6 ♀, 4 ♂, CNAN-SC74. Municipality of Jonacatepec: Chalcatzingo, 18°40’48.00” N, 98°46’12.00” W, 1,371 m, 5-04-2004, M. Córdova, D. Morán, 11 ♀, 6 ♂, CNAN-SC978. Las Trancas, 13-11-1938, 2 ♀, CNAN-SC185. Municipality of Miacatlán: Palpan, 18°51’00.00” N, 99°25’12.00” W, 1,587 m, 7-08-2004, M. Córdova, O. Vázquez, 3 ♀, CNAN-SC93. Municipality of Temixco: Pueblo Viejo, 18°52’12.00” N, 99°15’00.00” W, 1,378 m, 11-06-2004, M. Córdova, A. Jaimes, O. Sotelo, 6 ♀, 6 ♂, 1 juv., CIBUAEM. Municipality of Tepalcingo: Cerro del Venado, 18°36’36.00” N, 98°51’36.00” W, 1,380 m, 1-09-2003, M. Córdova, D. Morán, 17 ♀, 9 ♂, CNAN-SC80. El Limón, 18°32’24.00” N, 98°55’48.00” W, 1,191 m, 12-09-2004, M. Córdova, G. Obregón, 4 ♀, 7 ♂, CIBUAEM. Municipality of Tlaltizapán: Barranca Honda, 18°49’12.00” N, 99°06’00.00” W, 1,200 m, 20-06-2004, M. Córdova, M. Barrios, 4 ♀, 2 ♂, CNAN-98; M. Córdova, M. Barrios, 1 ♀, 18 juv., CNAN. Municipality of Tlalquiltenango: Chimalacatlán, 18°27’36.00” N, 99°06’00.00” W, 1,066 m, 11-07-2004, M. Córdova, O. Sotelo, 4 ♀, 5 ♂, CNAN-SC976. Huautla, 18°23’24.00” N, 99°01’48.00” W, 976 m, 12-07-2004, M. Córdova, A. Jaimes, 17 ♀, 8 ♂, 1 juv., CNAN-SC81; 1 ♀, 24 juv., CNAN; 18°26’24.00” N, 99°01’12.00” W, 11-06-1994, A. Burgos, 3 ♀, CIBUAEM. Quilamula, 18°31’12.00” N, 99°01’12.00” W, 1,100 m, 7-06-2004, M. Córdova, E. Maison, 2 ♀, 3 juv., CIBUAEM; 15-08-2003, M. Córdova, A. Jaimes, H. Lagunas, 11 ♀, 9 ♂, 2 juv., CNAN-SC165. Xicatlacotla, 18°33’36.00” N, 99°13’48.00” W, 812 m, 26-06-2004, M. Córdova, 1 ♀, 28 juv., CNAN-SC917; 3♀, CIBUAEM. Xalostoc, 18°43’12.00” N, 98°54’00.00” W, 1,602 m, 21-11-2003, M. Córdova, 6 ♀, 1 ♂, CNAN-SC159. Municipality of Yautepec: San Isidro, 18°49’12.00” N, 99°06’00.00” W, 1,378 m, 20-06-2004, M. Córdova, M. Barrios, 5 ♀, 1 ♂, CNAN-SC96; 1 ♀, 19 juv., CNAN. Municipality of Zacatepec: Galeana, 15-08-1991, G. Peña, 4 ♀, 3 ♂, 2 juv., CIBUAEM. Zacatepec, 30-06-1981, F. Guerrero, 3 ♀, CNAN-SC118. Municipality of Zacualpan de Amilpas: El Curiel, 18°46’48.00” N, 98°45’36.00” W, 1,668 m, 31-07-2004, M. Córdova, O. Sotelo, A. Sotelo, 18 ♀, 4 ♂, 1 juv., CNAN-SC79. Ponce-Saavedra & Francke (2004): México, Guerrero, Municipality of Tzirándaro: 18°28’25” N, 100°57’17” W. Michoacán, Municipality of Apatzingán: Altamira, El Tesorero, 18°57’42” N, 102°22’58” W. Las Anonas, 18°51’36” N, 102°35’00” W. Valle Verde, 19°02’54” N, 102°23’18” W. Municipality of Arteaga: El Descansadero, 19°34’17” N, 101°49’17” W. El Puerto, road to Tumbiscatío, 18°09’18” N, 102°23’18” W. Las Cañas, 18°33’20” N, 101°58’19” W. Municipality of Buenavista Tomatlán: Buenavista, 19°120’24” N, 102°35’12” W. El Puerto, 19°14’48” N, 102°35’37” W. Municipality of Carácuaro: 19°00’54” N, 102°07’05” W. Km 4 from San Antonio de las Huertas towards Carácuaro, 19°06’13” N, 101°12’06” W. Municipality of Churumuco: Cerro de Las Letras, 18°39’37” N, 101°39’17” W. Churumuco, 18°39’48” N, 101°38’64” W. El Ahuijote, 18°42’30” N, 101°46’00” W. Potrero de Corpus, El Chocolate, 18°52’48” N, 101°37’47” W. Municipality of Gabriel Zamora: Cerro de la Cruz, 19°09’55” N, 102°04’03” W. El Jagüey, 19°10’49” N, 102°01’24” W. El Ranchito, 19°11’00” N, 102°03’11” W. Km 128 Morelia-L.C road, 19°04’51” N, 102°00’59” W. Municipality of Huacana: Presa de Zicuirán, 18°55’18” N, 101°55’49” W. Municipality of Huetamo: road to Baztán, near El Rodeo, 18°46’13” N, 100°59’54” W. Cerro de Turitzio, near Arúa, 18°31’49” N, 100°55’45” W. Municipality of Mújica: Km 135 road La Huacana-Cuatro Caminos, 18°31’49” N, 100°55’45” W. Nueva Italia, 19°01’24” N, 102°05’30” W. Municipality of Nuevo Urecho: breach towards Nueva Jerusalem, 19°05’06” N, 101°30’15” W. Km 3.8 road Puruarán-Turicato, 19°’05’48” N, 101°30’24” W. Municipality of Parácuaro: La Tuna, 19°05’48” N, 102°13’55” W. Municipality of San Lucas: 18°35’12” N, 100°47’11” W. Municipality of Tacámbaro: Arroyo Frío, 19°10’53” N, 101°28’30” W. Municipality of Taretán: 19°20’00” N, 101°55’05” W. Municipality of Tepalcatepec: El Taixtán, 19°00’49” N, 102°59’12” W. Estado de México, Municipality of Tejupilco: 1 km SE of Mango Matus, 18°40’00” N, 100°26’39” W. Quijano-Ravell & Ponce-Saavedra (2016): México, Michoacán, Municipality of Churumuco: 18°39’39.00” N, 101°38’46.00” W, 4 ♀, 3 ♂. Municipality of Huetamo: Arúa, 18°32’25.00” N, 100°55’35.00” W, 3 ♀, 4 ♂. Reyes-Moya et al. (2021): Mexico, Chihuahua, Municipality of Ciudad Juárez: 31°38’31” N,106°26’34.4” W, 03/04-2019.
Examined material: México, Aguascalientes, Municipality of Aguascalientes: Universidad Autónoma de Aguascalientes, 18-05-2012, N. Ubario-Guevara, 1 ♀, CZUAA SCO-107; 15-05-2016, A. A. Martínez-Durón, 1 ♀, CZUAA SCO-411. Jardín Botánico Rey Netzahualcóyotl, 25-04-2014, J. E. Gutiérrez-Montoya, 1 ♀, CZUAA SCO-106; 04-2015, J. E. Díaz-Plascencia, 3 ♀, CZUAA SCO-108. Fraccionamiento Casa Blanca, 13-04-2016, M. A. Delgado, 1 ♀, CZUAA SCO-434. Fraccionamiento El Dorado, 14-10-2019, 1 ♀, CZUAA SCO-551. Tlaxcala #107, colonia San Marcos, 21-06-2020, V. Esparza, 4 ♀, CZUAA SCO-535. Pozo Hondo 141, colonia Pozo Bravo, 29-06-2020, N. Palacios, 1 ♀, CZUAA SCO-546. Tlaloc 519, colonia Prados del Sur, 8-03-2022, I. Martínez, 1 ♀, CZUAA SCO-672. Municipality of Calvillo: Colomos, plantación de guayaba, 21°52’44.11” N, 102°39’16.70” W, 1,798 m, 27-01-2022, I. J. Rodríguez-Elizalde, J. Brito-Ruiz de Velasco, 1 ♀, CZUAA SCO-686; 29-08-2021, I. J. Rodríguez-Elizalde, J. Brito-Ruiz de Velasco, L. I. Rodríguez-Rodríguez, M. E. Herrera-Rodríguez, 1 ♀, CZUAA SCO-692. El Terrero, 17-04-2011, J. Ruvalcaba-Calderón, 1 ♀, CZUAA SCO-104. Los Adobes, 21°48’39.22” N, 102°41’21.34” W, 1,875 m, 17-09-2019, F. Chávez-Samayoa, L. R. Haro-Tapia, 4 ♀, CZUAA SCO-509; 21°48’39.22” N, 102°41’57.34” W, 1,875 m, 11-10-2019, F. Chávez-Samayoa, 2 ♀, CZUAA SCO-698. Calvillo, 10-11-2021, R. García, 2 ♀, CZUAA SCO-670. Municipality of Jesús María: Alegría #122, colonia Gómez Portugal, 23-03-2022, 1 ♀, CZUAA SCO-695. Cerro del Muerto, 8-05-2005, A. Ramírez, 1 ♀, CZUAA SCO-111. Michoacán, Municipality of Uruapan: F. A. Guerrero-Roque, 1 ♀, CZUAA SCO-54. Zacatecas, Municipality of Jalpa: 21-04-2016, V. E., 1 ♀, CZUAA SCO-407. Municipality of Juchipila: 25-04-2010, C. Y. Gómez-Aranzazú, 2 ♀, CZUAA SCO-102; 13-05-2000, D. Magaña-Ortíz, 1 ♀, CZUAA SCO-110.
Remarks
Other than the Churumuco site (18°39’48” N, 101°38’64” W), in the Michoacan Balsas Depression, C. balsasensis has been recorded in the states of Guerrero, Mexico, Morelos, and Puebla (Córdova-Athanasiadis, 2005; Ponce-Saavedra & Francke, 2004; Ponce-Saavedra et al., 2022; Santibáñez-López et al., 2015). However, the records from Morelos are questionable (González-Santillán & Possani, 2018).
Reyes-Moya et al. (2021) recently recorded C. balsasensis in Ciudad Juárez, Chihuahua, indicating that the species collected may represent an “accidental introduction” into the city likely due to (Ciudad Juárez is) “the northern largest and busiest border crossing of Mexico and the USA, experiencing massive local and non-local human transit”. We were able to examine some of the specimens cited in that contribution and concluded that they are not conspecific with C. balsasensis. We base our conclusion on the comparison of the following set of the characters readily observed in their published figures: 1) there is an areola created by pigmentation circling each median ocellus on the carapace in Reyes-Moya et al. (2021, their Fig. 1A), whereas in the original description of Ponce-Saavedra & Francke, 2004 (their Fig. 9), in Quijano-Ravell & Ponce-Saavedra 2016 (their Fig. 6[2]), and in our figure 4A, the areola is not complete with the retrolateral area lacking pigmentation; 2) the body length of the females in Reyes-Moya et al. (2021) is 37 and 40 mm, whereas in the original description, the body length is 60 and 73 mm, a difference of more than 20 mm; 3) the pectens’ basal piece of the females is wider than longer (Reyes-Moya et al., 2021), but those of the original description are trapezoid, almost as long as wide, with a deep medial depression. The description of the specimens provided by Reyes-Moya et al. (2021), however, is more like Centruroides sculpturatus, particularly due to the pigmentation pattern of the carapace and tergites exhibited by phase 2 or 3 identified by Stahnke (1971). The likelihood of introduction from the Balsas Basin to Ciudad Juárez is considerably lower compared to the introduction of this species from Sonora or even Arizona because of the proximity of these areas. Our conclusion is that the specimens reported and illustrated by Reyes-Moya et al. (2021) are conspecific to C. sculpturatus instead of C. balsasensis.
Figure 4. Carapace of C. balsasensis (A) and C. infamatus (B).
We recorded C. balsasensis for the first time in Aguascalientes with 20 samples (32 individuals) from the Municipalities of Aguascalientes, Calvillo, and Jesús María. The first sample dates to 2005 (CZUAA SCO 111), and the most recent one to May 2023 (CZUAA SCO-732). Specimens deposited in the CZUAA were associated mainly with urban areas or meadows. Remarkably, we only observed adult or juvenile females; males are absent in the collection. It is likely that this species was transported accidentally and has invaded Aguascalientes and other northern states (we also examined 3 samples from Zacatecas: CZUAA SCO-102, CZUAA SCO-110, CZUAA SCO-407). However, further investigation to elucidate the establishment of this species is needed. Our data also suggest that the establishment of the population in Aguascalientes may have occurred by parthenogenesis due to the presence of only females in colonized urban and suburban areas. This hypothesis finds support by the occurrence of the same phenomenon in the South American species Tityus serrulatus, Lutz and Mello, 1922, which exhibits indigenous sexual populations and asexual populations in colonized habitats (Braga-Pereira & Santos, 2021). Intriguingly, this is also a medically relevant species in Brazil, suggesting parallel ecological mechanisms to establish in novel locations in different parts of the world.
Centruroides infamatus (C. L. Koch, 1844) (Fig. 5)
Taxonomic summary
Holotype specimen: Zoologisches Museum, Humbolt Universität, Berlin, Germany. Sex and type locality unknown (Fet & Lowe, 2000).
Records from literature: Esposito et al. (2018): México, Michoacán, Municipality of Tangamandapio: Los Tabanos, 19°58’29.64” N, 102°50’32.14” W, 223 m, 31-05-2006, O. F. Francke, H. Montaño, A. Valdez, A. Ballesteros, 2 ♀, AMCC (LP6420). Municipality of Tingambato: Tingambato 4 km W, under stones, 23-03-2000, E. González, 1 ♂, AMCC (LP1822). Ponce-Saavedra & Francke (2004): México, Guanajuato, Municipality of Romita: San Antonio del Pochote, 20°55’47.00” N, 101°33’48.00” W. Michoacán, Municipality of Coalcomán: 18°48’47.00” N, 103°09’57.00” W. Municipality of Morelia: 19°42’00.00” N, 101°11’18.00” W. Tiripetío, 19°32’00.00” N, 101°21’00.00” W. Municipality of Salvador Escalante: Salvador Escalante, 19°24’00.00” N, 101°38’18.00” W. Municipality of Uruapan: La Cofradía, 19°26’00.00” N, 102°01’00.00” W. Zumpimito, 19°22’18.00” N, 102°03’19.00” W. Ponce-Saavedra et al. (2009): México, Michoacán, Municipality of Uruapan: Zumipito, 19°21’25.00” N, 102°04’13,00” W, GenBank AF439753. Quijano-Ravell & Ponce-Saavedra (2016): México, Guanajuato, Municipality of León: 21°01’02.00” N, 101°37’44.00” W, 3 ♂ 2 ♀. Michoacán, Muncipality of Uruapan: Zumipito, 21°07’30.00” N, 101°01’49.00” W, 4 ♂ 4 ♀.
Figure 5. Habitus of male (top) and female (bottom) of C. infamatus, scale = 1 cm.
Examined material: Mexico, Aguascalientes, Municipality of Aguascalientes: Central de abastos, 02-1996, J. G. Estrada-A., 1 ♂, CZUAA SCO-54. Cerro de los Gallos, 21-10-1989, L. Silva-López, 1 ♀, CZUAA SCO-117; 26-04-1984, H. Gallegos-Rangel, 1 ♀, CZUAA SCO-118. Municipality of Calvillo: Cascada Los Huenchos, 21°52’52.90” N, 102°47’06.25” W, 1756 m, 22-05-2021, J. L. Reyes-Hernández, 1 ♂, CZUAA SCO-614. Cercano a balneario “La Cueva”, 21°48’47.70” N, 102°49’34.82” W, 28-09-2019, F. Chávez-Samayoa, L. R. Haro-Tapia, 1 ♀, CZUAA SCO-483; 15-10-2019, F. Chávez-Samayoa, 19 ♂, 10 ♀, CZUAA SCO-495; 19-10-2019, F. Chávez-Samayoa, 23 ♂, 12 ♀, CZUAA SCO-503. Cercano a restaurante “La Fragua”, 21°59’52.32” N, 102°40’35.36” W, 1,825 m, -05-2021, T. Huerta, 3 ♂, 2 ♀, CZUAA SCO-644. El Cuervero, 19-06-2004, A. D. González, 1 ♀, CZUAA SCO-162. El Zapote, 8-12-2021, R. García, 1 ♀, CZUAA SCO-666. Calvillo, 29-04-2017, E. M. Flores-Villalpando, 1 ♀, CZUAA SCO-431; 4-05-2017, A. Hernández, 1 ♀, CZUAA SCO-435. Crucero de las Pilas, 11-11-2020, R. García, 1 ♂, CZUAA SCO-700. La Calixtina, 16-05-2017, I. Rodríguez-Ortiz, 1 ♀, CZUAA SCO-424. La Labor, 10-04-2011, M. P. Ramírez-Guillen, 1 ♂, CZUAA SCO-139. La Mezquitera, 21°51’37.47” N, 102°46’04.20” W, 30-08-2019, F. Chávez-Samayoa, J. A. Escoto-Moreno, 1 ♂, 1 ♀, CZUAA SCO-484; 5-10-2019, F. Chávez-Samayoa, 23 ♂, 8 ♀, CZUAA SCO-508; 7-09-2019, F. Chávez-Samayoa, R. Haro-Tapia, 4 ♂, 2 ♀, CZUAA SCO-514; 10-10-2019, F. Chávez-Samayoa, 2 ♂, CZUAA SCO-558. Los Adobes, 21°48’39.22” N, 102°41’21.34” W, 1-09-2015, J. E. Díaz-Plascencia, 1 ♀, CZUAA SCO-330; 11-10-2019, F. Chávez-Samayoa, 15 ♂, 4 ♀, CZUAA SCO-480; 17-09-2019, F. Chávez-Samayoa, R. Haro, 26 ♂, 13 ♀, CZUAA SCO-497; 6-09-2019, J. A. Escoto-Moreno, F. Chávez-Samayoa, 1 ♂, CZUAA SCO-555. Los Alisos, 9-10-1989, J. Moreno-Lara, 1 ♂, CZUAA SCO-121; 2-06-1982, Z. M. Vela-Ortiz, 1 ♂, CZUAA SCO-133; 8-09-1984, Morales, Franco, Montoya, 1 ♂, CZUAA SCO-134; 19-06-2004, G. Guerrero, 1 ♀, CZUAA SCO-154. Los Lobos, 21-10-1990, J. A. Sánchez-García, 1 ♀, CZUAA SCO-129. Presa Malpaso, 19-06-2004, G. Villalobos, 1 ♂, CZUAA SCO-123; 3-05-1999, R. P. Arteaga-Hernández, 1 ♂, CZUAA SCO-125; 13-06-2004, E. Ortiz-Martínez, 1 ♂, CZUAA SCO-126; 20-03-1999, M. Morga, 1 ♂, CZUAA SCO-131; 3-05-1999, M. Martínez-Garnica, 1 ♀, CZUAA SCO-135; 26-11-1986, E. Alvizo-Flores, 1 ♀, CZUAA SCO-138. Palo Alto, 18-11-2021, R. García, 1 ♂, 3 ♀, CZUAA SCO-671; 20-11-2021, R. García, 4 ♂, CZUAA SCO-667. Presa La Codorniz, 22°00’39.07” N, 102°40’15.19” W, 1,894 m, 1-11-2020, E. González-Martínez, J. L. Reyes-Hernández, I. E. Gallegos-Vieyra, D. F. Simijaca-Salcedo, F. Chávez-Samayoa, 5 ♂, 5 ♀, CZUAA SCO-589; 21°59’50.78” N, 102°40’42.78” W, 2,068 m, 5-06-2021, F. Chávez-Samayoa, D. Ortiz-Álvarez, C. Huerta, 5 ♂, 10 ♀, CZUAA SCO-612. Presa La Ordeña, 25-04-2005, C. A. Díaz-Delgado, 1 ♀, CZUAA SCO-145. Presa de los Serna, 20-10-2003, S. García, 1 ♀ CZUAA SCO-124; 14-06-2004, S. García, 1 ♀, CZUAA SCO-137. San Tadeo, -04-1996, J. Martínez-de Lara, 1 ♀, CZUAA SCO-127; -05-2015, C. A. Franco-Servín de la Mora, 1 ♂, 2 ♀, CZUAA SCO-149. Sierra del Laurel, 25-10-1982, E. Padilla-R., 1 ♂, CZUAA SCO-128. Terrero de la Labor, 22°01’32.02” N, 102°39’58.00” W, 22-10-2021, F. Chávez-Samayoa, D. Ortiz-Álvarez, 25 ♂, 20 ♀, CZUAA SCO-655. Municipality of Jesús María: Cerro El picacho, 23-05-2014, E. A. Hernández-Medrano, 1 ♂, CZUAA SCO-109; 29-04-2016, D. Martínez, 1 ♂, CZUAA SCO-418. Municipality of Rincón de Romos: 17-04-2004, N. Arroyo-Chávez, 1 ♂, CZUAA SCO-112; 17-04-2004, A. F. Ramos-Martínez, 1 ♂, CZUAA SCO-113. Guanajuato, Municipality of Comonfort: 04-2007, D. García, 1 ♂, CZUAA SCO-402. Municipality of León: Fraccionamiento La Luz, 27-04-2013, V. H. González-Sánchez, 1 ♀, CZUAA SCO-75; 27-04-2003, K. A. de Luna-Gómez, 1 ♀, CZUAA SCO-85. León, 30-05-2009, C. García-Balderas, 1 ♀, CZUAA SCO-77; 13-06-2004, C. Moreno, 1 ♂, CZUAA SCO-84; 21-06-2004, M. A. Gómez, 1 ♂, CZUAA SCO-87; 4-06-2000, M. Chávez-Andrade, 1 ♂, CZUAA SCO-88; 7-06-2004, S. Flores, 1 ♂, CZUAA SCO-90; 15-06-2004, M. A. B. López, 1 ♂, CZUAA SCO-94; 16-06-2006, Miguel, 1 ♀, CZUAA SCO-96; R. A. Carbajal-Márquez, 1 ♀, CZUAA SCO-99. Municipality of Moroleón: Presa Quiahuyo, 25-03-2016, K. Rosales, 1 ♀, CZUAA SCO-445. Municipality of Pénjamo: 21-09-1983, O. A. Rodríguez, M. G. Flores, 1 ♀, CZUAA SCO-79. Municipality of Salamanca: L. Flores, 1 ♂, CZUAA SCO-70; J. A. Berlín-Diosdado, 1 ♀, CZUAA SCO-71. Municipality of Yuriria: 13-06-1991, V. Villalobos-Sánchez, 1 ♀, CZUAA SCO-74. Michoacán, Municipality of Uruapan: M. A. Domínguez-de la Riva, 1 ♀, CZUAA SCO-51. Municipality of Tancítaro: El Cuate, -04-1996, R. E. Martínez, 1 ♀, CZUAA SCO-58. Zacatecas, Municipality of Guadalupe Victoria: 9-11-1986, M. Torres-Romero, 1 ♂, CZUAA SCO-60. Municipality of Juchipila: 16-04-2016, K. I. Molina, 1 ♂, CZUAA SCO-413; 25-03-2016, E. A. Bernal-Montoya, 1 ♀, CZUAA SCO-425; 15-05-2016, A. Barba, 1 ♂, CZUAA SCO-448. Municipality of Nochistlán: 2-03-2010, E. F. Pulido-Hornedo, 1 ♀, CZUAA SCO-53. Municipality of Tabasco: 10-06-2010, A. Lara, 1 ♂, CZUAA SCO-57. Municipality of Valparaiso: 4-04-2017, S. D. López-González, 1 ♂ CZUAA SCO-416.
Remarks
Known records for C. infamatus include the southern half of Aguascalientes, northwestern Guanajuato, Jalisco, Michoacán, and the southern third of Zacatecas (González-Santillán & Possani, 2018). State records without precise locality information were published for Colima, Durango, Nayarit, Oaxaca, Puebla, Querétaro, and Sinaloa (Ponce-Saavedra & Francke, 2013a; Ponce-Saavedra et al., 2022; Santibáñez-López et al., 2015).
Centruroides infamatus is a component of Aguascalientes species richness, and before our work, it was the only species of medical importance reported for the state. This species inhabits the area corresponding to the Trans Mexican Volcanic Belt biogeographic province. However, its distribution in Aguascalientes is restricted to the southwestern municipalities, most abundantly in Calvillo, which corresponds to the lower lands of the Pacific biogeographic province. Centruroides infamatus was recorded in high densities in altitudes between 1,700 and 2,100 m on the slopes of a canyon formed by the Sierra del Laurel and Sierra Fría. We hypothesized that as part of the diversification of the infamatus species group of the genus Centruroides (sensu Ponce-Saavedra & Francke, 2019), the populations established in this area of Aguascalientes and most likely in Zacatecas, may represent a separate species from the Trans Mexican Volcanic Belt biogeographic province populations due to their geographical disjunction created by the Sierra del Laurel to the east and the arid zone corresponding to the Chihuahuan desert, north to the Aguascalientes City. In another scenario, we surmise that this species may be a component of the Pacific Lowlands province that has penetrated the mainland and most likely represents a distinctively independent taxon from the populations inhabiting the Trans Mexican Volcanic Belt. Further molecular and ecological studies may clarify these hypotheses.
Figure 6. Habitus of male (top) and female (bottom) of D. zacatecanus, scale = 1 cm.
Diplocentridae Karsch, 1880
Diplocentrus zacatecanus Hoffmann, 1931 (Fig. 6)
Taxonomic summary
Lectotype: deposited in the CNAN. México: Aguascalientes: Tepezalá (22°13.3629’ N, 102°10.0149’ W, 2,100 m.), no date or collector 1 ♂ (CNAN-T0761). Paralectotypes: 2 ♂♂ and 1 ♀ (CNAN-T0762) same locality and collection event (Santibáñez-López & Francke, 2013).
Records from literature: Hoffmann (1931): México, Aguascalientes, Municipality of Tepezalá. Zacatecas, Municipality of Pinos. Ponce-Saavedra et al. (2009): México, Aguascalientes, Municipality of Tepezalá: 22°13’20.94” N, 102°10’17.53” W, 2100 m. Durango, Municipality of San Juan de Guadalupe: Loma Alta, 24°37’58.05” N, 102°45’2.80” W, 1,560 m. Vicente Guerrero, 23°43’53.99” N, 103°59’14.55” W, 1,922 m. Estado de México, Municipality of Aculco: La Loma, 20°06’07.03” N, 99°51’25.71” W, 2,450 m. Municipality of Soyaniquilpan: San José Deguedo, 20°05’09.04” N, 99°33’48.78” W, 2,514 m. Guanajuato, Municipality of Coroneo, 20°11’54.81” N, 100°21056.60” W, 2,280 m. Hidalgo, Municipality of Tula de Allende: Michimaloya, 20°05’34.88” N, 99°23’57.93” W, 2,078 m. Michoacán, Municipality of Contepec: 19°57’10.44” N, 100°09’48.90” W, 2,480 m. Querétaro, Municipality of Cadereyta: Cadereyta, 20°41’38.29” N, 99°48’36.21” W, 2037 m. El Organal, 20°37’09.49” N, 99°38’27.98” W, 1,733 m. Vizarrón de Montes, 20°50’03.63” N, 99°43’09.27” W. Municipality of Huimilpan: 20°22’22.23” N, 100°16’27.48” W, 2,288 m. San Luis Potosí, Municipality of Villa de Ramos: 22°49’53.21” N, 101°54’36.01” W, 2,200 m. Zacatecas, Municipality of Cañitas de Felipe Pescador: 23°36’20.10” N, 102°43’47.50” W, 2,027 m. Municipality of Sain Alto: Emiliano Zapata, 23°34’16.66” N, 103°18’02.75” W, 2,067 m. Municipality of Zacatecas: 22°46’19.52” N, 102°34’32.01” W, 2,440 m. Santibáñez-López and Francke (2013): México, Aguascalientes, Municipality of Tepezalá: 22°13’21.77” N, 102°10’00.89” W, 2,100 m, CNAN-T0761, lectotype, 1 ♂; CNAN-T0762, paralectotypes, 2 ♂, 1 ♀; 1 km N, 22°14’20.88” N, 102°10’28.02” W, 2,048 m, 4 ♂, CNAN-S03075, 4-07-2005, O. F. Francke, J. Ponce-Saavedra, M. Córdova, A. Jaimes, G. Francke, V. Capovilla, 2 ♂, AMNH. Zacatecas, Road Sombrerete-Durango: km 179, 23°40’47.88” N, 103°41’42.72” W, 2,448 m, 9-08-2005, O. F. Francke, W. D. Sissom, C. Lee, K. McWest, L. Jarvis, C. Durán, H. Montaño, A. Ballesteros, 3 ♀, CNAN-SC1731; 3 ♀, AMNH.
Examined material: Mexico, Aguascalientes, Municipality of Asientos: Asientos, 10-02-2013, V. Martínez-Salazar, 1 ♀, CZUAA SCO-06; 17-03-2013, C. Franco-Servín de la Mora, 1 ♀, CZUAA SCO-10; 22-02-2013, R. A. Rosales, 1 ♀, CZUAA SCO-12. Municipality of El Llano: Juan el Grande, 21°56’21.00” N, 101°55’06.00” W, 2,495 m, 18-10-2019, N. A. Pulido-Hornedo, X. A. Ruiz, 3 ♀, CZUAA SCO-473; 18-10-2019, F. Chávez-Samayoa, 4 ♂, 6 ♀, CZUAA SCO-475; 21°55’54.55” N, 101°56’09.28” W, 2,117 m, 22-09-2019, F. Chávez-Samayoa, 2 ♂, 4 ♀, CZUAA SCO-490; 21°56’14.57” N, 101°55’24.35” W, 2,285 m, 1-06-2020, P. C. Hernández-Romero, D. F. Simijaca-Salcedo, F. Chávez-Samayoa, 1 ♀, CZUAA SCO-541; 21°56’21.08” N, 101°55’17.87” W, 2,395 m, -10-2019, E. González-Martínez, 1 ♂, 2 ♀, CZUAA SCO-543; 22-01-2021, F. Chávez-Samayoa, A. Palacios, D. F. Simijaca-Salcedo, 1 ♂, CZUAA SCO-633; 21°56’14.57” N, 101°55’24.35” W, 2,284 m, -04-2021, F. Chávez-Samayoa, D. F. Simijaca-Salcedo, 1 ♂, CZUAA SCO-645; -03-2021, F. Chávez-Samayoa, D. M. Reyes-Páramo, 1 ♀, CZUAA SCO-652. Municipality of Tepezalá: Cerro del Capulín, 22°14’45.06” N, 102°09’14.90” W, 2,189 m, 6-10-2019, F. Chávez-Samayoa, I. Villalobos-Juárez, E. González-Martínez, 2 ♂, 2 ♀, CZUAA SCO-488; 13-10-2019, F. Chávez-Samayoa, 5 ♀, CZUAA SCO-505; 22°14’01.00” N, 102°09’27.58” W, 2,130 m, 21-08- 2020, F. Chávez-Samayoa, 2 ♀, CZUAA SCO-525; 30-11-2020, I. Villalobos-Juárez, D. F. Simijaca-Salcedo, F. Chávez-Samayoa, 1 ♀, CZUAA SCO-595; 25-04-2021, F. Chávez-Samayoa, D. F. Simijaca-Salcedo, I. Villalobos-Juárez, 1 ♂, CZUAA SCO-662. Tepezalá, -04-2006, O. Ortega, 1 ♂, CZUAA SCO-01; -03-2006, M. de la Riva, 1 ♂, CZUAA SCO-02; 27-04-2006, L. Reséndiz, 1 ♂, CZUAA SCO-04; -04-2006, R. A. Carbajal, 1 ♀, CZUAA SCO-07; -06-2006, L. Flores, 1 ♀, CZUAA SCO-09; -06-2006, J. Salazar-López, 1 ♀, CZUAA SCO-11; 15-06-2006, E. Medina-Alcantar, 1 ♂, CZUAA SCO-15; 15-06-2006, V. Revilla-Castellanos, 1 ♀, CZUAA SCO-16; 28-02-2006, M. Domínguez-De la Riva, 1 ♀, CZUAA SCO-17; -03-2006, D. Rendón, 1 ♀, CZUAA SCO-18; -05-2006, F. A. Guerras-Roque, 1 ♀, CZUAA SCO-20. San Luis Potosí, Muncipality of San Luis Potosí: Cerro de San Pedro, 7-04-2007, L. Argüello, 1 ♀, CZUAA SCO-449.
Remarks
This species is recorded from Aguascalientes, Durango, Estado de México, Guanajuato, Hidalgo, Michoacán, Querétaro, San Luis Potosí, and Zacatecas (Ponce-Saavedra et al., 2009; Santibáñez-López & Francke, 2013).
Formerly a subspecies of Diplocentrus keyserlingii Karsch, 1880, it was described by Hoffmann from specimens collected in the Municipality of Tepezalá, Aguascalientes. We confirmed its presence in the type locality Tepezalá and additionally in the Municipalities of El Llano and Asientos. Diplocentrus zacatecanus inhabits the portion of the state that belongs to the Chihuahuan Desert biogeographic province (Morrone et al., 2017), which is nearly half of Aguascalientes’s surface.
The external morphology and the hemispermatophore of D. zacatecanus are either conserved or too variable to delimit species (Santibáñez-López & Francke, 2013). One possible explanation is the propensity of being substrate specialists and their strong adaptation to construct galleries where they spend most of their life exhibiting scarcely superficial activity. Diplocentrus zacatecanus is a substrate specialist requiring a particular type of soil, like other pelophilous species (Polis, 1990; Prendini, 2001). Soil-type discontinuity hinders its dispersal, promoting isolated populations and may promote allopatric speciation. Due to its wide distribution range in Mexico, D. zacatecanus may comprise a species complex that needs molecular studies to clarify and guide the correct species delimitation within such a broad distribution area.
Vaejovidae Thorell, 1876
Syntropinae Kraepelin, 1905
Chihuahuanus bilineatus (Pocock, 1989) (Fig. 7)
Taxonomic summary
Holotype: British Museum of Natural History, London, UK: San Diego Texas, USA. 1 ♀. Williams (1970) and Sissom (2000) indicated that this is a spurious locality and is not found in Texas.
Figure 7. Habitus of male (top) and female (bottom) of C. bilineatus, scale = 1 cm.
Records from literature: Hoffmann (1931): México, Aguascalientes, Municipality of Tepezalá: 20 exemplars (♂, ♀). González-Santillán and Prendini (2013): México, Tamaulipas, Municipality of Jaumave: El Salto, between Palmillas and Jaumave, 23°21’26.39” N, 99°30’56.45” W, 1,115 m, 23-08- 2006, O. F. Francke, W.D. Sissom, G. Casper, T. Anton, V. Torti, H. Montaño, C. Santibáñez, 1 ♂, 1 ♀, CAS(ARA-1883). González-Santillán and Prendini (2015): México, Guanajuato, Municipality of San Luis de la Paz: San Luis de La Paz, 7 km E, 21°18’42.84” N, 100°25’36.06” W, 2,117 m, 24-08-2006, O. F. Francke, W. D. Sissom, G. Casper, T. Anton, V. Torti, H. Montaño, C. Santibáñez, A. Ballesteros, 1 ♀, AMCC (LP 6594). San Luis Potosí, Municipality of Ciudad del Maíz: Puerto Santa Catarina, 22°18’13.38” N, 99°37’16.08” W, 1,214 m, 22-08-2006, O. F. Francke, W. D. Sissom, G. Casper, T. Anton, V. Torti, H. Montaño, C. Santibáñez, A. Ballesteros, 1 ♀, AMCC (LP 6507). Tamaulipas, Municipality of Jaumave: El Salto, between Palmillas and Jaumave, 23°21’26.39” N, 99°30’56.45” W, 1,115 m, 23-08-2006, O.F. Francke, W. D. Sissom, G. Casper, T. Anton, V. Torti, H. Montaño, C. Santibáñez, 1 ♂, 1 ♀, AMNH (ARA 1129). Zacatecas, Municipality of Fresnillo: Colonia Guanajuato, 23°04’44.94” N, 103°05’08.34” W, 2,250 m, 6-07-2005, O. F. Francke, J. Ponce, M. Córdova, A. Jaimes, G. Francke, V. Capovilla, 1 ♀, AMCC (LP 5306). Yahia & Sissom (1996): México, Aguascalientes, Municipality of Asientos: 3.2 km W Asientos, 2,225 m, 9-06-1956, B. Banta, 2 ♂, 1 ♀, 19 juv., AMNH. Muncipality of Tepezalá: Tepezalá, C. C. Hoffmann, 4 ♂, 4 ♀, AMNH. Coahuila, Municipality of Saltillo: 8.6 km W Buñuelos in Valle de Guerra, 15-07-1977, E. A. Liner, Chaney, 2 ♀, FSCA. Nuevo León, Municipality of La Asención: 7.24 km N La Ascension, 19-07-1975, E. A. Liner, 2 ♀, 9 juv., FSCA. 4.34 km N, 3.86 km SE La Ascension on La Caballada Road, 19-07-1975, E. A. Liner et al., 2 ♂, 3 ♀, FSCA. 12.39 km N La Ascension, 19-07-1975, E. A. Liner et al, 2 ♂, 1 ♀, FSCA. 11.1 km W El Carmen, 15-06-1976, E. A. Liner et al., 1 ♀, FSCA. 3 km S San Roberto, under cactus, 13-08-1972, N.V. Horner, 1 ♀, WDS. San Luis Potosí: 35.40 km S Huizache, 20-09-1979, J.C., J. E. Cokendolpher, 1 ♂, WDS. km 20 on highway 70, 1 juv, -03-1972, 2 ♀, 1 ♀, AMNH. Hwy 70, 112.65 km W Valles, 19-02-1970, J. A. L. Cooke, R. W. Mitchell, 1 ♂, 2 ♀, 1 juv., AMNH. Municipality of Ciudad de Maíz: near Ciudad del Maíz, 19-08-1947, C. & M. Goodnight, 1 ♀, AMNH; km 50 on Hwy 57, 18-03-1972, J. M. Rowland, TMM 1 ♂. Tamaulipas: Km 14 on Hwy 101, 22-02-1973, W. Graham, T. R. Mollhagen, C. McConnell, 3 ♂, 8 ♀, 2 juv., AMNH. Km 53 on Hwy 101, 23-02-1973, T. R. Mollhagen, 1 ♂ subadult 1 ♀, AMNH. Km 92 on Hwy 101, 22-02-1973, T. R. Mollhagen, 1 ♂, 8 ♀, AMNH. Km 15 on Hwy 19, 18-03-1972, J. A. L. Cooke, 1 ♀, AMNH. Municipality of Ciudad Victoria: Ciudad Victoria, -06-1977, F. D. White, 1 ♀, WDS. 1 km NW La Presita, 20-09-1979, J. C. & J. E. Cokendolpher, 2 ♀, WDS. Palmillas, T. Raines, 2 ♀, AMNH. Municipality of Jaumave: 6.43 km N Jaumave, 20-09-1979, J.C. & J. E. Cokendolpher, 1 ♀, WDS.
Examined material: Mexico, Aguascalientes, Municipality of Asientos: Cerro Altamira, 2015, J. E. Díaz-Plascencia 1 ♀, CZUAA SCO-470. Asientos, 21-06-2015, J. E. Díaz-Plascencia, J. L. Aguilar-Aguilar, 1 ♀, CZUAA SCO-325. Municipality of El Llano: Juan el Grande, 21°56’21.00” N, 101°55’05.99” W, 2,493 m, 18-10-2019, N. A. Pulido-Hornedo, X. A. Ruiz, 5 ♂, 20 ♀, CZUAA SCO-474; 21°56’21.00” N, 101°55’06.00” W, 2,148 m, 8-08-2020, F. Chávez-Samayoa, 1 ♂, CZUAA SCO-524; 21°56’20.00” N, 101° 55’08.90” W, 2,492 m, 20-05-2020, F. Chávez-Samayoa, D. F. Simijaca-Salcedo, 1 ♂, CZUAA SCO-540; 21°56’01.53” N, 101°55’42.29” W, 2,155 m, 25-09-2020, D. F. Simijaca-Salcedo, F. Chávez-Samayoa, 4 ♀, CZUAA SCO-577; 21°56’08.88” N, 101°55’30.72” W, 2,228 m, 22-01-2021, D. F. Simijaca-Salcedo, A. Palacios, F. Chávez-Samayoa, 2 ♀, CZUAA SCO-628; 21°56’21.88” N, 101°55’18.44” W, 2,384 m, -03-2021, F. Chávez-Samayoa, D. M. Reyes-Páramo, 2 ♂, 1 ♀, CZUAA SCO-648. Municipality of Tepezalá: Cerro del Capulín, 22°14’45.06” N, 102° 09’14.90” W, 2,189 m, 13-10-2019, F. Chávez-Samayoa, I. Villalobos-Juárez, 15 ♂, 16 ♀, CZUAA SCO-494; 22°14’19.46” N, 102° 09’58.03” W, 2,082 m, 31-05-2020, F. Chávez-Samayoa, D. F. Simijaca-Salcedo, I. Villalobos-Juárez, 1 ♂, CZUAA SCO-520; 22°14’01.00” N, 102°09’27.58” W, 2,129 m, 21-08-2020, F. Chávez-Samayoa, 4 ♀, CZUAA SCO-527; 22°13’52.88” N, 102°09’36.76” W, 2,125 m, 23-10-2020, F. Chávez-Samayoa, I. Villalobos-Juárez, I. E. Gallegos-Vieyra, D. F. Simijaca-Salcedo, 1 ♀, CZUAA SCO-575. Cerro de San Juan, ladera N, 8-10-1988, J. A. Rodríguez-Ávalos, 3 ♀, CZUAA SCO-305. Tepezalá, 22°13’54.26” N, 102°10’03.06” W, 2,116 m, 7-08-2015, M. Rodríguez, CNAN; Tepezalá, 15-06-2006, V. Revillo-Castellanos, 1 ♀, CZUAA SCO-301; 28-03-2006, Z. Y. González-Saucedo, 1 ♀, CZUAA SCO-302. Nuevo León, Municipality of Galeana: 2 km hacia mina “La Huiche”, 24°41’33.72” N, 100°03’19.91” W, 1,945 m, 28-09-2013, O. F. Francke, A. Valdez, D. Barrales, J. Cruz, A. Guzmán, CNAN-SC003911. Zacatecas, Municipality of Luis Moya: Griegos community, 15-11-1996, J. R. Treviño, 1 ♀, CZUAA SCO-303.
Remarks
Chihuahuanus bilineatus is distributed in Aguascalientes, Coahuila, Guanajuato, Nuevo León, San Luis Potosí, and Tamaulipas (Sissom, 2000; Yahia & Sissom, 1996).This species was reported for the first time in Aguascalientes by Hoffmann (1931) for the Municipality of Tepezalá. This species has an affinity for arid environments and could be classified as a lapidicolous species (González-Santillán & Prendini, 2013). It also inhabits mainly the Chihuahuan Desert province, and collection records in the state include the municipalities of Aguascalientes, Asientos, El Llano, Jesús Maria, and Tepezalá.
Chihuahuanus coahuilae (Williams, 1968) (Fig. 8)
Taxonomic summary
Holotype: California Academy of Sciences: Mexico: Coahuila: 0.5 km SW Cuatro Ciénegas de Carranza, 1 ♂ and 19 ♂♂, 25 ♀♀ paratypes (type No. 10170).
Figure 8. Habitus of male (top) and female (bottom) of C. coahuilae, scale = 1 cm.
Records from literature: González-Santillán and Prendini (2013): México, Coahuila, Municipality of Cuatro Ciénegas: Ojo de Agua, ejido El Oso, 27°00’03.35” N, 102°00’13.57” W, 1,039 m, 19-07-2006, O. F. Francke, W. D. Sissom, K. McWest, B. Hendrixson, S. Grant, A. Jaimes, M. Córdova, 2 ♂, 2 ♀, CNAN-T84). González-Santillán and Prendini (2015): Mexico, Coahuila, Municipality of Cuatro Ciénegas: Ojo de Agua, Ejido el Oso, 27°00’03.35” N, 102°00’13.57” W, 1,039 m, 19-07-2006, O. F. Francke, W. D. Sissom, K. McWest, B. Hendrixson, S. Grant, A. Jaimes, M. Córdova, 2 ♂, 2 ♀, AMNH (ARA 1120); 19-07-2006, O. F. Francke, W. D. Sissom, K. McWest, B. Hendrixson, S. Grant, A. Jaimes, M. Córdova, E. González, A. Ballesteros, 1 ♂, AMCC(LP6600). Durango, Municipality of Gómez Palacio: Dinamita, 25°44’05.34” N, 103°40’24.00” W, 1,328 m, 29-07-2005, O. F. Francke, H. Montaño, J. Ballesteros, C. Durán, 1 ♂, AMCC (LP 5353). USA, New Mexico, Luna County: Little Florida Mountains, 1.6 km SE on Bonita Road from turnoff of Gap Road, 32°09’29.4” N, 107°35’18.9” W, 1,761 m, L. Prendini, J. Huff, 1 juv., AMCC(LP7095). McWest et al. (2017): USA; Texas, Armstrong County: SE Claude, Palo Duro Canyon, Mulberry Creek arm, S side of Mulberry Creek, 12.8 km S junction US 287/FM 28889, 34°57’01.01” N, 101°13’32.99” W, 11-06-2004, 3 ♂, 1 juv., WTAMU. Tx 207, 23.9 km S US 87, 34°53’42.40” N, 101°22’06.71” W, 1-09-2000, 1 ♀, WTAMU. Briscoe County: Caprock Canyons State Park, 34°26’40.78” N, 101°04’34.54” W, 1 ♂ 3 ♀, WTAMU. Lake Mackenzie, 34°32’40.49” N, 101°26’25.55” W, 14-10-1996, 1 ♀, WTAMU; 16-09-1998, 4 ♀ 4 juv., WTAMU. Tx 256, 22.2 km SW of South Brice, 34°31’28.20” N, 101°00’08.64” W, 739 m, 24-07-2009, 4 ♂, WTAMU. 32.1 km SW of South Brice, 34°28’20.57” N, 101°05’11.04 W, 818 m, 24-06-2009, 1 ♀, WTAMU. Cottle County: Matador Wildlife Management Area, 34°07’09.01” N, 100°27’10.01” W, 1 ♂, WTAMU; Matador WMA, Headquarters Pasture, 34°07’00.16” N, 100°21’32.98” W, ?-05~09-2009, 4 ♂ 3 ♀, 1 juv., WTAMU. Crosby County: White River Lake, 33°27’33.48” N, 101°05’28.61” W (approximate), 23-09-1973, 1 ♀, AMNH; White River Lake, 12-04-1985, Taylor, S. W., SAS. Dickens-Crosby County line: FM 2794, 33°28’09.34” N, 101°02’19.79” W, 26-09-2009, 3 ♂ 3 ♀, 1 juv. ♀, WTAMU. Garza County: Post, 33°11’27.20” N, 101°22’41.56” W (approximate), 11-04-1983, 2 ♀ (one with juveniles), AMNH. 1.6 km S Justiceburg, 33°01’47.53” N, 101°11’41.82” W (approximate), 10-06-1984, 1 ♂, SAS. Justiceburg, 33°02’34.30” N, 101°12’10.44” W (approximate), 16-09-1975, 1 ♂, AMNH. FM 2458, 1.1 km E jct US 84, 33°02’58.67” N, 101°11’43.08” W, 26-09-2009, 6 ♂ 3 ♀, WTAMU; FM 2458, 1.4~1.7 km E jct US 84, 26-09-2009, 3 ♂ 5 ♀, WTAMU; FM2458, 2.2 km E jct US 84, 33°02’46.00” N, 101°10’58.01” W, 26-09-2009, 3 ♀, WTAMU; jct FM 2458 and FM 3519, 33°02’46.46” N, 101°09’37.51” W, 26-09-2009, 3 ♂ 4 ♀, WTAMU. Hall County: N Estelline, sand dunes along S side of Red River at US 287, 34°33’38.30” N, 100°26’33.83” W, 545 m, 19-09-1996, 2 ♂ 1 ♀, WTAMU. Turkey, 34°23’33.18” N, 100°53’51.54” W (approximate), 18-06-1970, 1 ♀, AMNH. TX 70/256, 34°40’17.15” N, 100°55’25.68” W, 650 m, 24-07-2009, 8 ♂ 2 ♀, WTAMU; TX 70/256 6.4 km SW South Brice, 34°38’44.88” N, 100°55’52.90” W, 658 m, 24-07-2009, 2 ♂, WTAMU. King County: Outskirts, E side of Guthrie, 33°37’01.31” N, 100°18’58.32” W, -10-2006, 6 ♂ 22 ♀ 1 juv., WTAMU. Lubbock County: Yellowhouse Canyon, 33°37’33.67” N, 101°53’05.64” W (approximate), 26-04-1973, 1 ♂, AMNH. Motley County: Starkey Ranch, 3.2 km W and 1.6 km S Flomot, 34°12’40.93” N, 101°01’27.62” W (approximate), 19-09-1996, 1 ♂ 3 ♀, WTAMU. 6.4 km NW Matador, 34°03’35.71” N, 100°52’00.88” W (approximate), 11-06-1979, 1 ♀, AMNH. Oldham County: Dirt road off US 385, on grade edge, SE of Canadian River, S Boys Ranch, 35°31’16.64” N, 102°15’26.03” W, 07-04-1996, 1 juv., WTAMU. FM 1061, 7.5 km E jct US 385, 35°28’39.00” N, 102°11’03.98” W, 14-08-1999, 1 ♂, WTAMU. Potter County: Crossbar ranch, E-facing slope above W Amarillo Creek, 35°25’14.99” N, 101°54’38.99” W, 1 subadult ♂, WTAMU. Randall County: Amarillo (south side), 35°09’30.46” N, 101°53’26.81” W (approximate), 07-07-1998, 1 ♀ 1 juv. ♀, WTAMU. Canyon, 34°58’49.04” N, 101°55’07.50” W (approximate), 04-02-1968, 1 juv., WTAMU. RR 1541, 35°01’57.58” N, 101°50’51.65 W, 1,053 m, 24-06-2009, 6 ♂ 1 ♀, WTAMU. Ceta Canyon, 27-09-1998, 1 ♀, WTAMU. FM 1541, N side of Palo Duro Creek bridge, 35°01’58.55” N, 101°50’51.29” W, 1,055 m, 14-10-2005, 1 ♂ 1 juv. ♂, WTAMU. About 11.2 km NE Canyon, FM 1541, S side of canyon at Palo Duro Creek, 35°01’53.29” N, 101°50’53.63” W, 01-08-1997, 1 ♂, WTAMU. Lake Tanglewood, 35°03’24.19” N, 101°46’11.57” W, 26-09-2006, 2 ♂ 7 ♀ 2 juv., WTAMU, 35°02’37.43” N, 101°45’31.57” W, 08-07-2002, 2 ♂, WTAMU; 35°03’10.01” N, 101°45’07.99” W, 11-07-2002, 1 ♂, WTAMU; 35°02’26.40” N, 101°45’56.04” W, 11-07-2002, 2 ♂, WTAMU; 35°03’11.23” N, 101°45’16.49” W, 08-07-2002, 2 ♂, WTAMU; 35°03’08.89” N, 101°45’35.10” W, 08-07-2002, 1 ♂, WTAMU. Palo Duro Canyon State Park, 34°56’01.39” N, 101°38’34.58” W, 05-06-1996, 1 ♂, WTAMU; 34°55’56.21” N, 101°38’05.89” W, 05-06-1996, 2 ♂ 3 ♀ 1 subadult ♀, WTAMU. Tangle Aire Estates, 35°04’05.12” N, 101°47’49.49” W, 22-10-1998, 1 ♀, WTAMU. Timbercreek Canyon, 19.3 km NE Canyon, 14-10-1998, 2 juv, WTAMU, 35°02’54.49” N, 101°49’41.41” W, 24-09-2006, 3 ♂ 22 ♀ 2 juv., WTAMU. Scurry County: 11.7 km W Ira, 32°35’54.67” N, 101°07’08.65” W (approximate), 21-04-1979, 1 ♀ 2 juv., WDS. Yoakum County: Plains, Co. Rd 230, about 0.8 km S jct US 82/US 380, 33°10’49.62” N, 102°50’09.28” W, 17-07-2009, 1 ♂ 1 ♀, WTAMU; Co. Rd 230, about 2.5 km S Plains, jct US 82/US 380, 33°10’04.08” N, 102°50’21.16” W, 17-07-2009, 1 ♀, WTAMU. Santibáñez-López et al. (2019): México, Zacatecas, Municipality of Concepción del Oro: Anahuac, 24°31’51.60” N, 101°19’09.12” W, -04-2015, H. Carmona. Stockwell (1986): México, Coahuila, Municipality of Cuatro Ciénegas: 0.5 km SW of Cuatro Ciénegas de Carranza, 28-07-1967, S. C. Williams, W. S. Brown, 1 ♂ paratype 1 ♀ paratype, AMNH. 1.6 km S of Cuatro Ciénegas de Carranza, 12-08-1968, M. A. Cazier, J. Bigelow, 1 ♂ 1 ♀, AMNH. Cuatro Ciénegas Basin, 22-04-1973, J. Landy, 1 ♀, AMNH. USA, Arizona, Cochise County: Peloncillo mountains., 4-08-1976, M. A. Cazier, J. Hubbard, 1 ♂, AMNH. New Mexico, Bernardillo County: 5 km W of Albuquerque, 9-08-1981, R. A. Bradley, 1 ♀, AMNH; 2-09-1981, R. A. Bradley, 2 ♀, AMNH. Dona Ana County: 32.1 km N of Las Cruces, 31-05-1970, R. Smith, 6 ♂, 7 ♀, AMNH; Las Cruces, 28-05-1970, R. Smith, 3 ♂, AMNH; 16.09 km. S of Las Cruces, 15-05-1970, R. Smith, 3 ♂, AMNH. Eddy County: Guadalupe Mts., 1 ♀, AMNH. Carlsbad Caverns National Park, 6-10-1976, V. Roth, 1 ♂, AMNH. 24.14 km E of Loving, Summer 1978, C. Rudolf, 3 ♂ 6 ♀, AMNH. Hidalgo County: 1.6 km N of Rodeo, 20-07-1976, J. Hubbard, M. A. Cazier, 21 juv., AMNH; 25-07-1976, J. Hubbard, M. A. Cazier, 2 ♂, 2 ♀, AMNH. Lincoln County: Valley of Fires State Park, 19-06-1974, L. Draper, M. A. Cazier, O. F. Francke, 1 ♂, AMNH. Luna County: 17.70 km E of Deming, J. Bigelow, 1 ♀, AMNH. Valencia County: 32.83 km NW of Los Lunas, 17-06-1970, M. A. Cazier, et al., 1 ♀, AMNH. Texas, Brewster County: Alpine, 2-10-1955, H. L Stahnke, 2 ♂, CAS; 7-10-1964, J. Scudday, 1 ♀, CAS. 4 km S of Alpine, 19-08-1968, S. C. Williams, J. Bigelow, M. M. Bentzien, 1 ♀, 7 ♂, CAS. 35.4 km S of Alpine (Babcock Ranch), 25-04-1964, S. Sikes, 1 ♀, CAS; 26-04-1964, S. Sikes, 1 ♂, CAS. Marathon, 20-07-1956, H. L. Stahnke, 1 ♂, CAS. 41.8 km S of Alpine, 28-07-1978, O. F. Francke, J. V. Moody, 1 ♀, AMNH. 12.87 km NE of Marathon, 27-07-1978, O. F. Francke, J. V. Moody, 1 ♂, AMNH; Big Bend National Park, 4-05-1966, E. Lehnert, 1 ♀, CAS. Big Bend National Park, Grapevine Hills, 18-08-1968, S. C. Williams, 2 ♀, CAS. Big Bend National Park, N base of Grapevine Mt., 7-09-1969, M. A. Cazier, et al., 35 ♂ 25 ♀, AMNH. Big Bend National Park, Burrow Spring Road, 22-03-1986, S. A. Stockwell, J. M. Steele, 1 ♀, CAS. Big Bend National Park, K-Bar Ranch, 25-07-1972, R. C. Stephens, 1 ♀, UCLB. Big Bend National Park, Panther Jct., 23-07-1956, H. L. Stahnke, 1 ♂, CAS. Big Bend National Park, Panther Jct., 17-08-1968, S. C. Williams, M. M. Bentzien, 29 ♀ 39 ♂, CAS; Big Bend National Park, 19.31 km SE of Panther Jct., 17-08-1968, S. C. Williams, M. M. Bentzien, 1 ♀, CAS. Big Bend National Park, 21.24 km SE of Panther Jct., 17-08-1968, S. C. Williams, M. M. Bentzien, 2 ♀, CAS. Big Bend National Park, Basin Jct., 17-08-1968, M. A. Cazier, J. Bigelow, 2 ♀ 5 ♂, CAS. Big Bend National Park, Rio Grande Village, 21-06-1970, M. A. Cazier, L. Welch, O. F. Francke, 27 ♂, 24, ♀, AMNH; 16-06-1974, M. A. Cazier, O. F. Francke, 19 ♂, 9 ♀, AMNH; -07-1978, 1 ♀, AMNH; 29-07-1978, O. F. Francke, J. V. Moody, 1 ♂, 1 ♀, AMNH. Big Bend National Park, 27-01-1973, C. McConnell, 1 ♂, AMNH. Crocket County: 16.09 km N of Iraan, 15-09-1985 S. A. Stockwell, 7 ♀, 1 ♂, SAS; 17.7 km N of Iraan, 29-09-1985, S. A. Stockwell, 1 ♀, SAS. 16.1 km N of Iraan, 8-03-1986, S. A. Stockwell, 3 ♀, SAS. 24.1 km S of Rankin, 21-03-1978, O. F. Francke, J. V. Moody, Hall, 1 ♂, 1 ♀, AMNH. Crosby County: White River Lake, 23-09-1973, J. M. Rowland, 1 ♀, AMNH; 12-04-1985, S. W. Taber, 1 ♀, 1 ♂, SAS. Bar X Ranch, 17-09-1977, O. F. Francke, J. R. Reddell, F. W. Wagner, 1 ♀, AMNH. Culberson County: Guadalupe Mts. National Park, McKittrick Canyon, 14-05-1978, O. F. Francke, J. V. Moody, 2 ♂, AMNH. Guadalupe Mts., Pine Springs Canyon, 18-06-1974, M. A. Cazier, O. F. Francke, 4 ♂, 1 ♀, AMNH. Guadalupe Mts., 5.6 km S of Pine Springs, 3-09-1972, O. F. Francke, J. Davidson, 2 ♂, AMNH. Guadalupe Mts., 12.07 km S of Pine Springs, 3-09-1972, O. F. Francke, J. Davidson, 1 ♂, AMNH. Guadalupe Mts. foothills below El Capitan, 30-08-1969, W. S. Parker, 1 ♀, CAS. Kent, 23-07-1956, H. L. Stahnke, 1 ♀, CAS; 1.6 km N of Kent, 23-06-1970, M. A. Cazier, L. Welch, O. F. Francke, 4 ♂, 6 ♀, AMNH. 6.4 km NE of Kent, 14-03-1981, N. V. Horner, 1 ♀, 1 ♂, MWSU. 125.5 km NE of Van Horn, 6-07-1979, O. F. Francke, J. V. Moody, Merikel, 1 ♀, AMNH. 31.38 km NE of Van Horn, 2-06-1978, O. F. Francke, J. V. Moody, Hall, 1 ♂, 1 ♀, AMNH. Van Horn, 28-06-1964, M. H. Muma, 1 ♂, CAS. El Paso County: Anthony, 19-06-1970, M. A. Cazier, L. Welch, O. F. Francke, 1 ♂, 1 ♀, AMNH; Franklin Mts., 19-05-1978, O. F. Francke, J. V. Moody, 1 ♂, AMNH; Franklin Mts. McKelligan Canyon Park, 13-04-1969, W. S. Parker, 1 ♂, CAS, 22-06-1969, W. S. Parker, 4 ♂, CAS, 12-07-1969, W. S. Parker, 1 ♀ 1 ♂, CAS. Garza County: Post, 11-04-1983, F. Rose, 1 ♂ 1 ♀ with young, AMNH; Justiceburg, 16-09-1975, Webb, 1 ♂, AMNH; 1.6 km mi. S of Justiceburg, 10-06-1984, S. A. Stockwell, 1 ♂, SAS. Hall County: Turkey, 18-06-1970, D. Kiser, 1 ♀, AMNH. Hudspeth County: 57.9 km E of El Paso, 15-03-1986, S. A. Stockwell, J. M. Steele, 1 ♀, SAS. 9.6 km E of Salt Flat, 8-09-1972, O. F. Francke, J. Davidson, 1 ♀, AMNH. 9.6 km E of Hueco, 5-06-1974, L. Draper, M. A. Cazier, O. F. Francke, 5 ♂, 4 ♀, AMNH. 22.5 km N of Sierra Blanca, 21-05-1978, O. F. Francke, J. V. Moody, 1 ♀, AMNH. 4.5 km S of Sierra Blanca, 21-05-1978, O. F. Francke, J. V. Moody, 1 ♂, 3 ♀, AMNH. Jeff Davis County: 16.1 km S of Kent, 18-04-1980, W. W. Dalquest, 1 ♀, MWSU. 20 km S of Toyahvale, 13-03-1977, J. C. Cokendolpher, 1 ♂, MWSU. 40.1 km S of Van Horn, 3-06-1978, O. F. Francke, J. V. Moody, Hall, 3 ♀, AMNH. 50.4 km S of Van Horn, 2-06-1978, O. F. Francke, J. V: Moody, Hall, 1 ♂, AMNH. 6.4 km W of Fort Davis, 6-06-1978, O. F. Francke, Hall, J. V. Moody, 2 ♀, AMNH. Fort Davis, 7-06-1978, O. F. Francke, J. V. Moody, Hall, 2 ♀, AMNH. Fort Davis National Park, 11-09-1963, “Staff”, 1 ♀, 1 ♂, CAS. Davis Mts. State Park, 20-06-1970, M. A. Cazier, L. Welch, O. F. Francke, 3 ♀, AMNH; 20-08-1974, J. V. Moody, 1 ♂, 1 ♀, AMNH; Davis Mts. State Park Limpia Canyon, 5-06-1974, L. Draper, M. A. Cazier, O. F. Francke, 3 ♀, AMNH. Loving County: 12.9 km N of Mentone, 1-06-1978, O. F. Francke, J. V. Moody, Hall, 1 ♀, AMNH. Lubbock County: Yellowhouse Canyon, 26-04-1973, T. R. Mollhagen, 1 ♂, AMNH. Motley County: 6.4 km NW of Matador, 11-06-1979, O. F. Francke, J. V. Moody, W. D. Sissom, 1 ♀, AMNH. Pecos County: 16.1 km N of Ft. Stockton, Will Banks Ranch, 27-12-1966, R. Winokur, 2 ♀ paratypes, CAS. 6.4 km E of Sheffield, along Pecos River, 7-06-1974, M. A. Cazier, L. Draper, O. F. Francke, 7 ♂, 5 ♀, AMNH. Presidio County: 76.6 km N of Candelaria, 3-06-1978, O. F. Francke, J. V. Moody, Hall, 1 ♀, AMNH. Candelaria, 14-06-1977, R. Wilson, 3 ♀, 1 ♂, CAS; R. Wilson, 2 ♀, 5 ♂, one ♀ with 40 first instar young, CAS; 29-07-1977, R. Wilson, 4 ♀ 1 ♂, CAS; 14-08-1977, R. Wilson, 3 ♀, 2 ♂, CAS; 23-08-1977, R. Wilson, 3 ♀, CAS; 26-09-1977, R. Wilson, 2 ♂, CAS. 61.1 km NE of Presidio, 5-06-1978, O. F. Francke, J. V. Moody, Hall, 1 ♂, 2 ♀, AMNH. 49.8 km NE of Presidio, 5-06-1978, O. F. Francke, J. V. Moody, Hall, 2 ♀, AMNH. 5.3 km N of Presidio, 2-09-1972, O. F. Francke, J. Davidson, 2 ♂, AMNH. 53.1 km S of Marfa, 5-06-1978, O. F. Francke, J. V. Moody, Hall, 2 ♂, AMNH. 0.8 km N of Shafter, 2-09-1972, O. F. Francke, J. Davidson, 3 ♂ 4 ♀, AMNH. Reeves County: Pecos, 13-07-1973, J. J. Landye, 1 ♀, AMNH. Balmorhea State Park, 26-08-1971, K. M., M. A. Cazier, 4 ♂ 1 ♀, AMNH. Terrel County: 30.6 km S of Sheffield, 8-06-1974, O. F. Francke, 1 ♂, AMNH. 8 km W of Sanderson, 8-06-1974, L. Draper, M. A. Cazier, O. F. Francke, 3 ♀, AMNH. 40.2 km N of Dryden, 28-07-1970, R. C. Stephens, 1 ♂, UCLB. 12.8 km N of Dryden, 21-10-1978, J. V. Moody, Meeks, 1 ♀, AMNH. Val Verde County: 1.6 km SE of Langtry, 7-06-1974, L. Draper, M. A. Cazier, O. F. Francke, 6 ♂, 7 ♀, AMNH. Wrinkler County: 9.6 km N of Winkler, 1-06-1978, O. F. Francke, J. V. Moody, Hall, 2 ♀, AMNH. 20.9 km S of Kermit, 7-06-1979, O. F. Francke, 1 ♂, AMNH. Williams (1968): México, Coahuila, Cuatro Ciénegas Municipality: Laguna Tio Candido, 14 km S of Cuatro Ciénegas, 15-04-1965, W. L. Minckley, 2 ♀, CAS. Laguna Churince, 16 km S of Cuatro Ciénegas, 24-12-1965, W. L. Minckley, C. O. Minckley, 3 ♀, CAS. Town of Cuatro Ciénegas, 05-04-1967, L. E. Cullum, 3 ♀, CAS. 4 km E of Cuatro Ciénegas, 27-07-1967, S. C. Williams, W. S. Brown, 10 ♂ 17 ♀, CAS. Poza la Becerra, 14 km SW of Cuatro Ciénegas, 28-07-1967, S. C. Williams, W. S. Brown, 2 ♂ 1 ♀, CAS. Gypsum sand dunes, 13 km SW of Cuatro Ciénegas, 27-07-1967, S. C. Williams, W. S. Brown, 2 ♂ 2 ♀, CAS. Travertine Ridge, 12 km SW of Cuatro Ciénegas, 15-08-1967, W. L. Minckley, 1 ♀, CAS. Above Rio Cañon, 4.3 km NW of Cuatro Ciénegas, 15-08-1967, W. L. Minckley, 1 ♂, 2 ♀. USA, Texas, Pecos County: Will Banks Ranch, 16 km N of Fort Stockton, 27-12-1966, R. Winkour, 1 ♂, 1 ♀, CAS.
Examined material: Mexico, Aguascalientes, Municipality of Aguascaientes: El Chicalote, 22°00’43.26” N, 102°15’11.84” W, 1,895 m, -10-2019, D. A. Perales-Olivares, 1 ♂, 1 ♀, CZUAA SCO-504. Universidad Autónoma de Aguascalientes, edificio 132, 28-06-2022, M. Martínez, 1 ♂, CZUAA SCO-673. Cerro de Los Gallos, -04-2015, C. A. Franco-Servín de la Mora, 1 ♂, CZUAA SCO-321. Area NO de la ciudad, 15-06-2006, M. A. López, 1 ♀, CZUAA SCO-322. Municipality of Asientos: Cerro Altamira., 2015, J. E, Díaz-Plascencia, 1 ♂, CZUAA SCO-404. Ojo de Agua de los Sauces, 25-04-2016, G. S. García-Macias, 1 ♂, CZUAA SCO-433. Municipality of Cosío: Estación de Adames, 16-08-2016, I. Chávez, 1♀, CZUAA SCO-412. Municipality of El Llano: Juan el Grande, 21°56’21.00” N, 101°55’06.00” W, 18-10-2019, F. Chávez-Samayoa, 1 ♀, CZUAA SCO-553. Municipality of Jesús María: Los Arquitos, 21°55’21.68” N, 102°23’17.92” W, 1,931 m, 5-09- 2019, F. Chávez-Samayoa, I. Villalobos-Juárez, 1 ♀, CZUAA SCO-486; 21°55’11.50” N, 102°23’26.02” W, 2,014 m, 23-01-2021, F. Chávez-Samayoa, D. F. Simijaca-Salcedo; 1 ♀, CZUAA SCO-617, 26-03-2021, F. Chávez-Samayoa, D. F. Simijaca-Salcedo, 1 ♀, CZUAA SCO-653. Municipality of Tepezalá: Cerro del Capulín, 22°14’01.00” N, 102°09’27.58” W, 2,129 m, 21-08- 2020, F. Chávez-Samayoa, 1 ♂, 1 ♀ juv., CZUAA SCO-526, 23-10-2020, F. Chávez-Samayoa, I. Villalobos-Juárez, I. E. Gallegos-Vieyra, D. F. Simijaca-Salcedo, 1 ♂, CZUAA SCO-573; 22°13’57.46” N, 102°09’40.41” W, 2,119 m, 26-09-2020, F. Chávez-Samayoa, I. Villalobos-Juárez, 1 ♂, CZUAA SCO-582; 22°14’30.30” N, 102°09’13.93” W, 2,184 m, 31-05-2020, F. Chávez-Samayoa, I. Villalobos-Juárez, P. C. Hernández-Romero, D. F. Simijaca-Salcedo, 1 ♀, CZUAA SCO-584; 22°13’54.26” N, 102°10’03.06” W, 2,116 m, 7-08-2015, M. Rodríguez, CNAN. Coahuila, Municipality of Cuatro Ciénegas: Ejido el Oso, 27°03’35.64” N, 102°13’34.90” W, 1,039 m, O.F. Francke et al., 5 ♂, CNANSC2437.
Remarks
Chihuahuanus coahuilae (Williams, 1968)is distributed inAguascalientes, Chihuahua, Coahuila, and Durango (Sissom, 2000) and in the USA in Texas and New Mexico (Sissom & Hendrixson, 2005; Stockwell, 1986).
Although Escoto-Rocha & Delgado-Zaldívar (2008) reported Chihuahuanus coahuilae for the first time in Aguascalientes, subsequent national and regional scale studies (Francke, 2019; Ponce-Saavedra & Francke, 2013b; Santibáñez-López et al., 2015) fail to enlist this species as a part of Aguascalientes scorpion richness. Herein, we confirm the presence of C. coahuilae in the municipalities of Aguascalientes, Asientos, El Llano, Jesús María, and Tepezalá. Chihuahuanus coahuilae is a lapidicolous species that prefers arid environments within the Chihuahuan Desert province. We observed during fieldwork C. coahuilae in sympatry with D. zacatecanus, C. bilineatus, C. glabrimanus Sissom & Hendrixson, 2005, M. spadix, P. gracilior, and Vaejovis aguazarca Díaz-Plascencia & González-Santillán, 2022. Interestingly, no buthid scorpion was sympatric with C. coahuilae in Aguascalientes, suggesting a distinctive transition between scorpion faunas. The current distribution of the scorpion fauna established in Aguascalientes can be correlated to the geological history that created the interdigitation between the Sierra Madre Occidental, Pacific lowlands, and the Chihuahuan Desert biogeographic provinces.
Figure 9. Habitus of male (top) and female (bottom) of C. glabrimanus, scale = 1 cm.
Holotype: Florida State Collection of Arthropods, Gainesville, Florida, USA. México, Nuevo Léon: 7.8 km N La Ascension, 24°19’0.00” N, 99°54’00.00” W, 18-07-1972, E.A. Liner, R. M. Johnson, A. H. Chaney, 1 adult ♂. Paratype Mexico, Coahuila: 10.8 km S, 0.16 km E Arteaga at Los Pinos, 25°17’00.00” N, 100°50’00.00” W, 17-09-1975, leg. E.A. Liner et al.
Records from literature: González-Santillán and Prendini (2013): Mexico, Guanajuato, Municipality of San Diego de la Union: San Diego de la Unión, 8 km S, 21°23’08.67” N, 100°53’27.14” W, 2,078 m, 28-07-2006, E. González, M. Córdova, A. Jaimes, A. Ballesteros, O. F. Francke, 1 ♂, AMNH. San Luis Potosí, Municipality of Villa de Arista: Villa de Arista, 10 km E, 22°30’45.65” N, 100°45’29.99” W, 30-08-2006, O. F. Francke, W. D. Sissom, G. Casper, T. Anton, V. Torti, H. Montaño, C. Santibáñez, A. Ballesteros, 4 ♂ 1 ♀, CAS (ARA1909). González-Santillán and Prendini (2015): México, Guanajuato, Municipality of San Diego de la Unión: San Diego de la Unión, 8 km S, 21°23’08.64” N, 100°53’27.12” W, 2078 m, 28-07-2006, O. F. Francke, M. Córdova, A. Jaimes, E. González, A. Ballesteros, 1 juv. AMCC (LP 6611). Nuevo León, Municipality of Galeana: Providencia, 3 km E, 25°08’39.06” N, 100°39’02.40” W, 1,980 m, 17-07-2006, O. F. Francke, E. González, M. Córdova, J. Ballesteros, A. Jaimes, 1 ♂, AMCC (LP6558). San Luis Potosí, Muncipality of Ciudad del Maíz: Puerto Santa Catarina, 22°18’13.38” N, 99°37’16.08” W, 1,214 m, 22-08-2006, O. F. Francke, W. D. Sissom, G. Casper, T. Anton, V. Torti, H. Montaño, C. Santibáñez, A. Ballesteros, 1 juv, AMCC (LP6610).
Examined material: Mexico, Aguascalientes, Municipality of Aguascalientes: Jardín Botánico Rey Netzahualcoyotl, 10-08-2004, V., 1 ♂, CZUAA SCO-172; 8-06-, G. García, 1 ♂, CZUAA SCO-178; 8-01-2004, J. Escoto, 1 ♀, CZUAA SCO-180; 27-06-2015, J. E. Díaz-Plascencia, 1 ♂, 1 ♀, CZUAA SCO-183. Universidad Autónoma de Aguascalientes, edificio 1 A, 13-10-2015, M. Croce-Hernández, 1 ♀, CZUAA SCO-373; edificio 132, 28-08-2019, I. Villalobos-Juárez, 1 ♂, CZUAA SCO-469; 23-06-2015, G. De la Riva-Hernández, 1 ♀, CZUAA SCO-181; 21-09-2017, M. Martínez, 1 ♂, 1 ♀, CZUAA SCO-438. Avenida Circunvalación lado E, 24-11-1985, O. Rosales-Carrillo, 1 ♀, CZUAA SCO-170. Fraccionamiento Asturias, 18-12-2002, J. A. Escoto-Moreno, 1 ♂, CZUAA SCO-175. Carretera Aguascalientes-San Luis Potosí km 2.5, 15-08-2004, J. A. Escoto-Moreno, 1 ♂, 1 ♀, CZUAA SCO-171. Los Pericos, 29-05-2000, V. Herrera, 1 ♀, CZUAA SCO-165; 28-05-2000, R. M. Morales-Contreras, 1 ♀, CZUAA SCO-169. Rancho El Cocuyo, 23-10-1993, L. Delgado-Saldívar, 1 ♀, CZUAA SCO-173. Centro de Salud Urbano, colonia Guadalupe Peralta, 15-06- 2023, I. Martínez, 2 ♂, CZUAA SCO-734. Municipality of Asientos: Francisco Villa, hogar particular, 22°05’19.00” N, 101°58’05.00” W, 15-10-2002, F. Aguinaga, CNAN-SC4043. Municipality of Calvillo: Cercano a balneario “La Cueva”, 21°49’57.00” N, 102°48’58.82” W, 15-10-2019, F. Chávez-Samayoa, 1 ♀, CZUAA SCO-560. Presa Malpaso, 10-09-1985, C. Ortiz-de L., 1 ♀, CZUAA SCO-164; 1 ♀, 26-09-1993, J. M. González-Martínez CZUAA SCO-174. Municipality of Cosío: Soledad de Abajo, unidad médica, 25-10-2002, F. Aguinaga, CNAN-SC4044. Casa del centro, 1-01-2002, F. Aguinaga, CNAN-SC4045. Municipality of El Llano: Juan el Grande, 21°55’58.40” N, 101°55’42.49” W, 2,198 m, 8-08-2020, F. Chávez-Samayoa, 1 ♂, CZUAA SCO-523. Municipality of Jesús María: Los Arquitos, 21°55’21.68” N, 102°23’17.92” W, 4-09-2019, I. Villalobos-Juárez, F. Chávez-Samayoa, 1 ♀, CZUAA SCO-559. Buenavista, 11-06-2000, R. M. Muñoz, 1 ♂, CZUAA SCO-179. Municipality of Pabellón de Arteaga: Río San Pedro, 23-06-2015, J. L. Aguilar-Aguilar, 1 ♂, CZUAA SCO-182. Municipality of Tepezalá: Cerro del Capulín, 22°14’30.30” N, 102°09’30.13” W, 31-05-2020, I. Villalobos-Juárez, P. C. Hernández-Romero, D. F. Simijaca-Salcedo, F. Chávez-Samayoa, 1 ♂, CZUAA SCO-515; 22°14’16.19” N, 102°09’15.88” W, 6-06-2020, F. Chávez-Samayoa, 1 ♂, CZUAA SCO-542; 22°14’07.25” N, 102°09’25.16” W, 26-09-2020, F. Chávez-Samayoa, D. F. Simijaca-Salcedo, I. Villalobos-Juárez, 1 ♀, CZUAA SCO-563. Tepezalá, 21°13’54.41” N, 102°10’03.06” W, 2,116 m, 7-08-2015, M. Rodríguez. Guanajuato, Municipality of San Luis de la Paz: 7 km E of San Luis de la Paz, 21°18’42.84” N, 100°25’36.06” W, 2,117 m, 24-08-2006, O. F. Francke, H. Montaño, C. Santibáñez, A. Ballesteros, 2 ♂, CNAN-SC02455. Nuevo León, Municipality of Galeana: Carretera San Roberto-Galeana, km 78, 24°40’57.6” N, 100°06’24.0” W, 1,944 m, O. F. Francke, W. D. Sissom, K. McWest, B. Hendrixson, S. Grant, E. González S., M. Córdova, A. Jaimes, A. Ballesteros, 1 ♀, CNAN-SC2136. Providencia, 3 km NE, 25°08’39.06” N, 100°39’02.40” W, 1,980 m, 17-07-2006, O. F. Francke, E. González, M. Córdova, J. Ballesteros, A. Jaimes, 1 ♂, AMCC (LP 6558). 3km NW of La Providencia, 25°08’39.12” N, 100°39’02.88” W, 1,980 m, 17-07-2006, O. F. Francke, E. González, A. Jaimes, M. Córdova, A. Ballesteros, 5 ♂, CNAN-SC3108. Querétaro: Estación de Microondas Santa Lucia hacia Peña Miller, matorral espinoso, 21°03’28.30” N, 99°47’01.90” W, 13-11-2009, O. F. Francke, J. Cruz-López, C. Santibáñez, A. Valdez, 1 ♀ juv., CNAN-SC2133. San Luis Potosí, Municipality of Ciudad del Maíz: Puerto Santa Catarina, 22°18’13.38” N, 99°37’16.08” W, 1,214 m, 22-08- 2006, O. F. Francke, W. D. Sissom, G. Casper, T. Anton, V. Torti, H. Montaño, C. Santibáñez, A. Ballesteros, 1 juv., AMCC (LP 6610). Municipality of Villa de Arista: 10 km E of Villa de Arista, 22°38’45.60” N, 100°45’29.94” W, 1,624 m, 20-08-2006, O. F. Francke, D. W. Sissom, T. Anthon, V. Totti, G. Casper, H. Montaño, C. Santibáñez, A. Ballesteros, 2 ♂, CNAN-SC03107. Zacatecas, Municipality of Fresnillo: 23-05-2009, S. R. López-Navarro, 1 ♀, CZUAA SCO-168; 21-06-2009, R. López-Navarro, 1 ♂, CZUAA SCO-176. Municipality of Jalpa: 15-04-2005, J. Silva, 1 ♀, CZUAA SCO-167. Municipality of Saín Alto: Emiliano Zapata, 9-09-1971, S. Guijosa, 1 ♀, CNAN SC02456.
Remarks
Chihuahuanus glabrimanus is distributed in Aguas-calientes, Coahuila, Guanajuato, Nuevo León, Querétaro, and San Luis Potosí (González-Santillán & Prendini, 2013, 2015).This speciesexhibits somewhat variable external morphology but is not correlated with its distribution, complicating its separation into morphospecies. Unlike diplocentrids, C. glabrimanus and C. coahuilae present some degree of substrate-specialism, having more and less elongated and alienated setae on the telotarsi, which is characteristic of the psammophilic ecomorphotype, an adaptation to digging in sandy soils (Polis, 1990; Prendini, 2001). Although we collected specimens in sandy areas, we failed to find a significant relationship between their presence and sandy habitats.
Figure 10. Habitus of male (top) and female (bottom) of M. spadix, scale = 1 cm.
Mesomexovis spadix (Hoffmann, 1931) (Fig. 10)
Taxonomic summary
Holotype: deposited in the American Museum on Natural History, New York, USA. México, Zacatecas, Municipality of Jalpa, 1 ♂, paratypes same locality deposited in UNAM 053, 1 ♂, 1 ♀ (Sissom, 2000).
Records from literature: González-Santillán & Prendini (2013): México, Guanajuato, Municipality of León: León, -04-2004, P. Berea, 1 ♂, 1 ♀, CNAN. Hoffmann (1931): México, Zacatecas, Jalpa. Santibáñez-López et al. (2015): México, Aguascalientes, Jalisco, Zacatecas. Sissom (2000): México, Aguascalientes, Jalisco, Zacatecas.
Examined material: Mexico, Aguascalientes, Municipality of Aguascalientes: Cerro de Los Gallos, 16-09-2014, J. E. Díaz-Plascencia, 2 ♀, CZUAA SCO-197; 27-11-1997, V. Villalobos-Sánchez, 1 ♀, CZUAA SCO-289; 26-11-1984, H. Gallegos-Rangel, 2 ♀, CZUAA SCO-295; 21-10-1989, M. E. Serafín-Luevano, 2 ♂, CZUAA SCO-297; -04-2015, C. A. Franco-Servín de la Mora, 2 ♀, CZUAA SCO-316. Cerro del Muerto, 23-05-2014, E. A. Hernández-Medrano, 1 juv. ♂, CZUAA SCO-248; 14-06-1979, J. Á. Uyoa, 1 ♀, CZUAA SCO-259; 10-04-2010, L. Consuelo-Márquez, 1 ♀, CZUAA SCO-268; 19-10-1988, J. A. Rodríguez-Avalos, 3 ♂, 4 ♀, CZUAA SCO-275; 21-10-1982, M. E. Serafín-Luevano, 2 ♂, CZUAA SCO-297. El Sauz, km 35, 19-04-1996, F. Arenas-Luevano, 1 ♂, CZUAA SCO-227. Municipality of Calvillo: Peña Blanca, 21°54’09.76” N, 102°45’15.48” W, 31-01-2022, I. J. Rodríguez-Elizalde, J. Brito-Ruiz de Velasco, 1 ♂, CZUAA SCO-724. Sierra Escondida, 21°43’32.12” N, 102°43’14.52” W, 10-02-2022, I. J. Rodríguez-Elizalde, J. Brito-Ruiz de Velasco, 1 ♂ juv., CZUAA SCO-725. 7 km NE of Temazcal, 22°02’36.46” N, 102°44’07.22” W, 2,246 m, 6-09-2021, I. J. Rodríguez-Elizalde, J. Brito-Ruiz de Velasco, 1 ♀, CZUAA SCO-682. Cercano a balneario “La Cueva”, 21°49’57.00” N, 102°48’58.82” W, 1,781 m, 28-10-2019, F. Chávez-Samayoa, S. S. Gutiérrez-Martínez, 1 ♀, CZUAA SCO-482; 15-10-2019, F. Chávez-Samayoa, 6 ♂, 22 ♀, CZUAA SCO-485. Los Adobes, 21°48’39.22” N, 102°41’21.34” W, 1,874 m, 11-10-2019, F. Chávez-Samayoa, L. R. Haro-Tapia, 2 ♀, CZUAA SCO-487. La Mezquitera, 21°51’39.85” N, 102°46’03.47” W, 5-10-2019, F. Chávez-Samayoa, M. E. Samayoa-Sepúlveda, L. F. Chávez-Rodríguez, 2 ♀, CZUAA SCO-511; 7-09-2019, F. Chávez-Samayoa, 7♂, 5♀, CZUAA SCO-513; 30-08-2019, J. A. Escoto-Moreno, F. Chávez-Samayoa, 4 ♀, CZUAA SCO-592. Presa La Codorniz, 21°59’50.78” N, 102°40’42.78” W, 2,068 m, 5-07-2021, F. Chávez-Samayoa, D. Ortiz-Álvarez, C. Huerta, 10 ♂, 12 ♀, CZUAA SCO-613; 22°00’39.07” N, 102°40’19.51” W, 1-11-2020, E. González-Martínez, J. L. Reyes-Hernández, I. E. Gallegos-Vieyra, D. F. Simijaca-Salcedo, F. Chávez-Samayoa, 1 ♀, CZUAA SCO-590. Presa Los Alamitos, 21°43’49.44” N, 102°42’50.04” W, 14-06-2021, M. E. Samayoa-Sepúlveda, F. Chávez-Samayoa, 1 ♀, CZUAA SCO-635; 17-05-2021, F. Chávez-Samayoa, D. Ortiz-Álvarez, 1 ♀, CZUAA SCO-649; 13-02-2021, D. G. Castillo-Arceo, N. D. Morales, 1 ♀, CZUAA SCO-663. Los Alisos, 4-03-2005, M. Orozco, 1 ♀, CZUAA SCO-311. El Ocote, 13-06-2009, M. Gómez, 1 ♀, CZUAA SCO-208; 11-06-2004, G. Guerrero, 1 ♀, CZUAA SCO-215; 12-06-2004, Benjamín, 1 ♀, CZUAA SCO-217; 13-06-2004, A. Del Río, 1 ♀, CZUAA SCO-255; 13-06-2004, S. Saucedo, 1 ♀, CZUAA SCO-267; -06-2002, E. N. Manzo-Mata, 2 ♀, CZUAA SCO-284; 13-06-2004, R. S. Pérez, 1 ♂, 1 ♀, CZUAA SCO-293. El Pilar, 2-05-2004, P. O. Hernández, 1 ♀, CZUAA SCO-214. La labor, caseta de vigilancia, 17-06-1992, J. A. Castorena Rangel, 1 ♀, CZUAA SCO-260. Las lomas, 3.5 km hacia Presa de los Serna, 14-10-1992, H. J. Cruz-González., 1 ♂, 1 ♀, CZUAA SCO-256. Las moras, 15-03-2007, S. Álvarez-Betancourt, 1 ♀, CZUAA SCO-442. Los Alisos, 12-09-1988, J. A. Rodríguez-Avalos, 2 ♀, CZUAA SCO-219; 22-01-2014, A. Farfán-Castañeda, 1 ♂, CZUAA SCO-224; 19-05-1982, V. Quintero, A. Salado, 2 ♂, CZUAA SCO-231; 9-10-1989, M. Y. Quezada, J. I. Soriano, 4 ♂, 4 ♀, CZUAA SCO-294; 3-10-2014, J. E. Díaz-Plascencia, 2 ♀, CZUAA SCO-417. Presa Malpaso, 13-06-2004, Hernández-Camacho, 1 ♀, CZUAA SCO-210; 1-06-2005, C. C. Herrada, 2 ♂, 3 ♀, CZUAA SCO-225; 13-06-2004, E. J. Ortiz-Martínez, 1 ♀, CZUAA SCO-244; 13-06-2004, L. Muro, 2 ♀, CZUAA SCO-250. Mesa Montoro, 4-05-1996, F. Arenas-Luevano, 1 ♀, CZUAA SCO-291. Río Gil, 11-06-2004, A.E.G.E., 2 ♀, CZUAA SCO-296. Sierra del Laurel, 18-04-2010, A. G. Pérez D., 1 ♀, CZUAA SCO-237; 29-08-2015, J. E. Díaz-Plascencia, 4 ♂, 3 ♀, CZUAA SCO-319; 11-02-2017, V. M. Arano-Sierra, 1 ♂, CZUAA SCO-415. Municipality of El Llano: Juan el Grande, 21°56’21.00” N, 101°55’06.00” W, 18-10-2019, F. Chávez-Samayoa, E. González-Martínez, 1 ♂, 1 ♀, CZUAA SCO-476; 21°56’22.45” N, 101°55’22.22” W, 23-08-2020, F. Chávez-Samayoa, 1 ♀, CZUAA SCO-534; 21°56’21.08” N, 101°55’17.87” W, -10-2019, E. González-Martínez, 6 ♂, 5 ♀, CZUAA SCO-544; 21°56’20.00” N, 101°55’09.84” W, 2,488 m, 27-02-2021, F. Chávez-Samayoa, D. F. Simijaca-Salcedo, 1 ♂, CZUAA SCO-642. Municipality of Jesús María: Los Muñozes, 21°57’00.14” N, 102°34’00.66” W, 2,179 m, 12-10-2019, F. Chávez-Samayoa, M. J. Morán-Gutiérrez, V. M. Arano-Sierra, 3 ♂, 9 ♀, CZUAA SCO-478; 16-10-2019, F. Chávez-Samayoa, 2 ♂, 7 ♀, CZUAA SCO-479. Los Arquitos, 21°55’21.68” N, 102°23’17.92” W, 1,931 m, 4-09-2019, F. Chávez-Samayoa, 6 ♂, 22 ♀, CZUAA SCO-485; 4-09-2019, I. Villalobos-Juárez, 4 ♀, CZUAA SCO-512; 21°55’12.51” N, 102°23’47.53” W, 2,034 m, F. Chávez-Samayoa, D. F. Simijaca-Salcedo, 3 ♀, CZUAA SCO-639; 21°55’18.66” N, 102°23’34.79” W, 1,964 m, 26-03-2021, F. Chávez-Samayoa, D. F. Simijaca-Salcedo, 2 ♀, CZUAA SCO-640. Pileta, 21°57’20.92” N, 102°30’02.92” W, 2,167 m, 6-09-2019, J. A. Escoto-Moreno, F. Chávez-Samayoa, 1 ♀, CZUAA SCO-593. Campamento Yuca, 22°02’20.37” N, 102°24’43.12” W, 2,262 m, 7-10-2019, M. J. Perales-Olivares, 1 ♀, CZUAA SCO-465. Cerro El Picacho, 18-10-1986, P. Serna-Pérez, 1 ♀, CZUAA SCO-263; 13-11-1985, J. G. Vázquez A., 1 ♀, CZUAA SCO-267; -08-2020, C. Ramírez, 1 ♀, CZUAA SCO-587. La Posta, 5-06-2014, E. Águila-Lira, 1 ♂, CZUAA SCO-236. Rancho Seco, 21-04-2019, V. M. Arano-Sierra, 1 ♂, 1 ♀, CZUAA SCO-472. Municipality of Pabellón de Arteaga: 25-06-1999, C. A. Ramírez, 1 ♀, CZUAA SCO-228. Municipality of Rincón de Romos: Sierpe, Y. Calvillo Lezama, 1 ♂, 1 ♀, CZUAA SCO-298. Rincón de Romos, 17-04-2004, N. Arroyo-Chávez, 1 ♂, CZUAA SCO-243; 20-06-1999, P. Hernández, 1 ♀, CZUAA SCO-258; 20-11-1999, L. F. de Alba, 1 ♀, CZUAA SCO-271; 23-03-1999, B. Saucedo, 1 ♀, CZUAA SCO-274. Municipality of San Francisco de los Romo: 6-06-2016, A. Bernal, 1 ♀, CZUAA SCO-446. Municipality of San José de Gracia: Estación Biológica Agua Zarca, 22°05’32.3” N, 102°33’20.3” W, 2,149 m, 20-03-2019, E. C. Ramírez, 1 ♂, 4 ♀, CZUAA SCO-547; 12-03-2003, Y. Gámez-Roldán, 1 ♂, CZUAA SCO-198; -02-2003, A. Morales, 1 ♀, CZUAA SCO-201; 18-03-2003, C. Quiñones-Valles, 1 ♀, CZUAA SCO-203; 29-03-2003, C. A. Morales-Asencio, 1 ♀, CZUAA SCO-204; 30-03-2014, J. Montero, 1 ♀, CZUAA SCO-211; 5.-04-2014, J. E. Díaz-Plascencia, 1 ♂, 2 ♀, CZUAA SCO-213; 31-05-2014, F. Chávez-Samayoa, 1 ♀, CZUAA SCO-238; 31-05-2014, R. González-Muñoz, 1 ♀, CZUAA SCO-241; -02-2003, A.P.R.A., 1 ♂, CZUAA SCO-288; 30-05-2014, A. Mejía-Arellano, 1 ♂, CZUAA SCO-314; 28-04-2004, L. Rodríguez, 1 ♀, CZUAA SCO-315; 13-05-2016, O. Herrera, 1 ♀, CZUAA SCO-406; 20-05-2016, L. R. Haro-Tapia, 1 ♂, CZUAA SCO-409; 18-05-2018, F. S. Álvarez-Solís, 1 ♀, CZUAA SCO-414; 27-05-2016, I. Rodríguez-Ortiz, 1 ♀, CZUAA SCO-428. Guanajuato, Municipality of León: Colonia La Luz, V. H. González, 1 ♂, CZUAA SCO-230; León, 25-06-2007, M. Ávila, 1 ♀, CZUAA SCO-410. Municipality of Guanajuato: 26-05-2007, D. García, 1 ♀, CZUAA SCO-426. Municipality of Salamanca: J. A. Berlín-Diosdado, 1 ♀, CZUAA SCO-226. Jalisco, Municipality of Lagos de Moreno: Cerro La Bola, 18-02-2012, R. E. Rea-Reyes, 1 ♀, CZUAA SCO-222. Lagos de Moreno, 24-04-2016, C. E. Valdivia-Muñoz, 1 ♀, CZUAA SCO-451. Municipality of Guadalajara: 6-06-2017, O. Gutiérrez-Muñoz, 1 ♂, 1 ♀, CZUAA SCO-423. Zacatecas, Municipality of Guadalupe: Cerro de la Virgen, 1-06-2003, C. A. Barrón, 1 ♀, CZUAA SCO-262. Municipality of Jerez de García: Sierra de Los Cardos, 14-10-2015, R. A. Rosales-García, 1 ♂, 1 ♀, CZUAA SCO-313. Cerro de la Campana, 17-03-2014, R. A. Rosales-García, 1 ♂, 1 ♀, CZUAA SCO-209. Jerez, 2-11-1986, R. Macías-Ramírez, 1 ♀, CZUAA SCO-234. Municipality of San Pedro Piedra Gorda: Chiquihuitillo, 22-09-1990, M. G. Flores Olivares, 1 ♂, CZUAA SCO-245.
Remarks
Mesomexovis spadix occurs in Aguascalientes, Guanajuato, Jalisco, and Zacatecas (González-Santillán & Prendini, 2013; Hoffmann, 1931; Santibáñez-López et al., 2015; Sissom, 2000).
Hoffmann (1931) synonymized Vaejovis punctatus spadix and Vaejovis punctatus variegatus Pocock, 1898 with Vaejovis punctatus punctatus, although he recognized some differences, he did not consider them enough to separate species. Later, González-Santillán and Prendini (2013) erected Mesomexovis and elevated them to species rank as M. spadix and Mesomexovis variegatus. Some authors have enlisted Mesomexovis punctatus as part of Aguascalientes species richness (Ponce-Saavedra & Francke, 2013b; Contreras-Félix et al., 2015), probably confounding the former nominotypical subspecies.
Mesomexovis spadix is a very abundant lapidicolous species covering most of the territory of Aguascalientes and tolerates disturbed environments. We collected specimens in 7 of the 11 municipalities of the state: Aguascalientes, Calvillo, El Llano, Jesús María, Pabellón de Arteaga, Rincón de Romos, and San José de Gracia. Although M. spadix occupies the 3 biogeographical provinces in Aguascalientes, the Chihuahuan desert appears to limit its distribution to the northern territories, which is congruent with the prediction of González-Santillán and Prendini (2013), who mentioned that Chihuahuanus ecologically substitutes Mesomexovis in more arid areas.
Figure 11. Habitus of male (top) and female (bottom) of T. intrepidus, scale = 1 cm.
Thorellius intrepidus (Thorell, 1876) (Fig. 11)
Taxonomic summary
Holotype: deposited in the Naturhistoriska Riksmuseets Stockholm, Sweden. The only information associated to the holotype is: México 1 ♀ (Sissom, 2000).
Records from literature: González-Santillán and Prendini (2013): México, Colima, Municipality of Armería: Mine la Salada, NW Ixtlahuacan, 19°01’40.85” N, 103°47’02.21” W, 275 m, mine staff, 1 ♂, 1 ♀, AMNH. Municipality of Tecomán: Tecomán, 18°54’30.00” N, 103°52’28.00” W, 1 ♂, 1 ♀, AMNH. González-Santillán & Prendini (2018): México, Aguascalientes, Municipality of Calvillo: Chiquihuitero, 21°52’27” N, 102°42’09” W, 1,680 m, 29-06-2007, A. Valle Colis , 1 ♂, INDRE; El Rodeo, 21°52’09” N, 102°44’50” W, 1,620 m, 25-06-2007, A. Valle Colis, 1 ♀, INDRE; La Labor, 21°57’43” N, 102°41’46” W, 1,740 m, 15-18-06-2007, I. Escalante-Piña, 1 ♂, 1 ♀, INDRE; Rancho Media Luna, 21°47’56” N, 102°48’05” W, 1,560 m, 9-11-2008, I. Franchini, 1 ♀, INDRE; Mesa Grande, 21°48’18” N, 102°43’18” W, 1,760 m, 24-06-2003, G. Vargas, 1 ♀, INDRE, 24-06-2007, M. Sema, 1 ♂, INDRE. Colima, Municipality of Armeria: Armeria, 18°56’03” N, 103°57’52” W, 40 m, 2-01-2003, H. Rodríguez, 1 ♂, 1 ♀, CNAN SC2628. Mina La Salada, NW Ixtlahuacán, at mine headquarters, 19°01’40.80” N, 103°47’02.16” W, 275 m, 2005, mine staff, 11 ♀, AMNH. Municipality of Camotlán: Punta de Agua, 19°09’00.00” N, 104°16’00.00” W, 2-09-2003, E. González, 1 ♀, CNAN SC2242. Municipality of Colima: Colima, 19°14’36.00” N, 103°43’28.98” W, 30-12-1927, J. C. Chamberlin, 1 ♂, AMNH. Colima, 16 km S, 19°14’37” N, 103°43’51” W, 30-07-1954, W. J. Gertsch, 1 ♂, AMNH. Los Ortices, 19°06’46.8” N, 103°44’22.6” W, 343 m, 9-04-2004, P. Berea, 1 ♂, AMCC (LP 6379). Municipality of Comala: Comala, 19°19’00.00” N, 103°45’00.00” W, 9-04-2004, P. Berea, 1 juv. ♀, AMCC (LP 6377). Municipality of Coquimatlán: near Coquimatlán, 19°18’00.00” N, 104°06’00.00” W, 2008, L. L. Valdez, 1 ♂, CNAN SC2921. Municipality of Manzanillo: Los Parajes, 19°14’07” N, 104°24’52” W, 230 m, 3-02-2008, 1 ♂, INDRE. Manzanillo, 19°03’08” N, 104°18’57” W, 5 m, 1 ♀, INDRE, 17-01-1947, 2 ♂, 4 ♀, 1 subad. ♂CNAN SC2634. Manzanillo, 10 km of El Colomo, 19°03’08” N, 104°18’57” W, 16-04-2008, P. Berea, 1 ♀, CNAN SC2619. Colonia Valle de Las Garzas, 19°03’08” N, 104°18’57” W, 29-09-2008, 5 m, 1 ♀, INDRE. Manzanillo, Sector 7, 19°03’08” N, 104°18’57” W, 5 m, 6-02-2004, 1 ♂, INDRE. Nuevo Petatero Ranch, 19°03’38.94” N, 104°16’36.12” W, 4-02-2008, 1 ♀, INDRE. Potrero Grande, 19°10’19” N, 104°32’27” W, 6 m, 27-11-2008, 1 ♀, INDRE. Veladero de Otates, 19°15’38” N, 104°20’14” W, 280 m, 4-02-2008, 1 ♀, INDRE. Municipality of Minatitlán: Junction to Saus, on way to Minatitlán, 19°25’22.74” N, 103°58’59.94” W, 1,006 m, 26-05-2006, O. F. Francke, A. Valdez, H. Montaño, A. Ballesteros, 1 ♂, AMCC (LP 6469). Municipality of Tecomán: Tecomán, 18°54’30” N, 103°52’28” W, 8-05-1961, E. López, 1 subad. ♀, INDRE, -03-1992, Orozco, R. G., 1 ♂, INDRE, 30 m, 9-03-1992, R. Lezama, 3 ♂, 6 ♀, CNAN SC2629, around village, 29-11-1995, E. López, 1 ♀ 1 subad. ♂, CNAN SC2611, 12-01-1996, M. González, 1 ♀, CNAN SC2605, 18-02-1996, H. Arredondo, 1 ♀, CNAN SC2641, 19-06-1996, H. Arredondo, 1 ♀, INDRE. Municipality of Villa de Álvarez: Villa de Álvarez, 19°16’00.00” N, 103°44’15.00” W, 530 m, 11-02-1995, E. Polanco, 1 ♀, CNAN SC2618. Guanajuato, Municipality of León: Hacienda de Arriba, NE of León, in house, 2008, L. Olguín, 2 ♀, CNAN SC2922; León, 21°07’00.00” N, 101°41’00.00” W, 2-06-2006, 1 ♂, CNAN SC2612. Jalisco, Municipality of Jocotepec: San Juan Cosola, 1.6 km E, 20°17’12.00” N, 103°20’13.02” W, 10-07-1959, C. M. Bogert, 1 ♀, AMNH. Muncipality of La Huerta: Ejido E. Zapata, 19°22’58” N, 104°57’55” W, 10 m, 9-07-1994, I. Ramírez, 1 ♀, CNAN SC2606. Estación Biológica Chamela, 19°29’52.50” N, 105°02’36.48” W, 5-04-1981, M. V. Julia, 1 ♀, CNAN-SC2244, 20 m, 19-05-1985, A. Pescador, 1 subad. ♀, CNAN-SC2607; 26-04-1993, E. Ramírez, 1 ♂, CNAN SC2614; 25-03-1998, S. H. Bullock, 1 ♀, CNAN-SC2920; 14-09-1999, A. M. Corona, R. Ayala, 1 ♀, CNAN-SC2621; 19-09-1999, A. M. Corona, 1 ♀, CNAN-SC2622; 1-09-2011, O. F. Francke, A. Valdez, H. Montaño, A. Ballesteros, C. Santibáñez, 3 ♂, 1 ♀, CNAN-SC2245; 19°29’52.50” N, 105°02’36.48” W, 97 m, 30-08-2007, O. Francke et al., 1 juv. ♀, AMCC (LP 7670); Estación Biológica Chamela, El Tejon Trail, 19°29’50.16” N, 105°02’29.46” W, 18-08-2005, J. L. Castelo, UV detection at night, 1 juv., AMCC (LP 5309). Michoacán, Municipality of Aquila: Aquila, 18°35’57” N, 103°30’15” W, 180 m, 21-02-1992, R. Mares, 1 ♀, CNAN-SC2636. Arroyo de la Cruz, 5 km NE of Maquili, 18°34’33.5” N, 103°35’47.8” W, 24-01-2004, 1 ♂, 2 ♀ 1 subad. ♂ 1 subad. ♀, CNAN-SC2992. El Faro de Bucerías, tropical dry forest, 18°21’00.00” N, 103°29’00.00” W, 13/14-01-2002, E. González, 1 ♀, AMCC (LP 2022); El Faro de Bucerías, near La Llorona 18°20’40.74” N, 103°30’32.04” W, 17-01-2006, G. Suárez, CNAN-SC2624. Pomaro, 18°20’28” N, 103°18’29” W, 380 m, 1 ♂, 18-02-1992, R. Álvarez, 1 ♀, CNAN-SC2608. Municipality of Coahuayana: Coahuayana, 18°45’00.00” N, 103°40’00.00” W, 24-06-1991, M. J. Nereida, 1 ♀, CNAN-SC2615. Municipality of Jiquilpan: Jiquilpan, 19°59’37” N, 102°43’02” W, 1,560 m, G. Ignacio, 1 ♂, 1 ♀, CNAN-SC2616. University of Michoacán, 19°41’27.96” N, 101°12’09.78” W, 1 ♂, CNAN-SC2613. Municipality of Uruapan: Uruapan, 19°25’10” N, 102°03’30” W, 1,620 m, J. Julia, 1 ♂, CNAN-SC2610. Nayarit, Municipality of Tepic: La Loma motel, 21°30’30.00” N, 104°53’34.98” W, C.M. Bogert, 1 ♀, AMNH. Santibáñez-López et al. (2019): México, Colima, Municipality of Coquimatlán: El Palapo, 19°11’54.60” N, 102°54’49.68” W, 3-04-2015, J. Valencia, J. López, E. González. Soleglad & Fet (2008): México, Nayarit, Municipality of Tepic: 1 ♀, MES, 1 ♀, GL.
Examined material: Mexico, Aguascalientes, Municipality of Calvillo: Calvillo, 9-06-2021, I. J. Rodriguez-Elizalde, 1 ♂, CZUAA SCO-609. Terrero de la Labor, 22°01’32.02” N, 102°39’58.00” W, 1,927 m, 22-10-2021, F. Chávez-Samayoa, D. Ortiz-Álvarez, 1 ♀, CZUAA SCO-656. Presa de los Serna, 3-10-2003, S. García, 1 ♀, CZUAA SCO-188; 3-10-2003, S. García, 1 ♂, CZUAA SCO189. Calvillo, 8-11-2021, R. García, 1 ♂, CZUAA SCO-669. Jalisco, Municipality of Encarnación de Diaz: 5-06-2009, E. Duar, 1 ♀, CZUAA SCO-378. Municipality of San Juan de los Lagos: 14-04-2011, F. A. Rubalcaba-Castillo, 1 ♀, CZUAA SCO-194.
Remarks
Thorellius intrepidus inhabits the states of Aguascalientes, Colima, Guanajuato, Jalisco, Michoacán, and Nayarit, inhabiting tropical dry forests, deciduous and broadleaf forests between 5 and 1,760 m altitude (González-Santillán & Prendini, 2018).
In Aguascalientes, we recorded T. intrepidus at 1,927 m of altitude (CZUAA SCO-656), which may represent most likely its altitudinal distribution limit at circa 2,000 m. Thorellius intrepidus is restricted to the tropical deciduous forest of the Calvillo Municipality. Like C. infamatus, T. intrepidus inhabits the Pacific Lowlands province, which may be a second component that invaded or diversified within that area. However, all the species of Thorellius are distributed in tropical to subtropical habitats (González-Santillán & Prendini, 2018) connected to the Pacific Lowlands, which suggest that the linage may have originated in the Pacific Lowlands province.
Smeringurinae Soleglad & Fet, 2008
Figure 12. Habitus of male (top) and female (bottom) of P. gracilior, scale = 1 cm.
Paruroctonus gracilior Hoffmann, 1931 (Fig. 12)
Taxonomic summary
Lectotype: deposited in the American Museum of Natural History, New York, USA. Tepezalá, Aguascalientes, México, 1 ♂ and 2 paralectotypes ♂♂.
Records from literature: Brown et al. (2002): USA, Texas, Terrel County: Chandler Independence Creek Preserve, 30°26’30.00” N, 101°43’26.00” W. Bryson Jr. (2014): USA, Arizona, Cochise County. Fet et al. (2006): México, Coahuila, Municipality of Cuatro Ciénegas: 2 ♂, MES. USA, New Mexico, Hidalgo County: Lordsburg, 1 ♂, GL. Gertsch & Soleglad (1966): México, Aguascalientes, Municipality of Tepezalá: C. C. Hoffmann, 3 ♂ cotypes, AMNH. Coahuila, Municipality of Saltillo: 32.1 km E of Saltillo, 16-07-1965, W. J. Gertsch, V. Roth, 1 ♂. USA, Arizona, Cochise County: Portal, 1-07- to 4-09-1965, R. M. Hastings, W. J. Gertsch, V. Roth, 27 ♂, 4 ♀. New Mexico, Hidalgo County: Rodeo, 29-08-1964, R. Hastings, 1 ♂. Eddy County: Hope, 23-09-1950, W. J. Gertsch, 1 ♀. Hoffmann (1931): México, Aguascalientes, Municipality of Tepezalá: 4 ♀. Sissom & Francke (1981): USA, New Mexico, Chaves County: 30.8 km W Caprock, 21-03-1980, J. E. Cokendolpher, 1 ♀, JCC. Eddy County: Carlsbad Caverns National Monument, 8-09-1969, M. A. Cazier, J. Bigelow, 4 ♂, 5 ♀, AMNH. 24.1 km E Loving (creosote scrub and dunes), -07-1978, C. Rudoph, 9 ♂, AMNH. Hidalgo County: 20.9 km N Rodeo, 25-06-1973, O. F. Francke, 2 imm., AMNH. Hope, 23-09-1950, W. J. Gertsch, 1 ♀. Rodeo, 29-08-1964, R. Hastings, ♂. Luna County: Rock Hound State Park, 14.4 km E Deming, J. Bigelow, 1 ♂, 1 ♀, AMNH. Texas, Brewster County: Castolon, Big Bend National Park, 8-08-1979, O. F. Francke, J. V. Moody, F. Merickel, 1 ♂, AMNH; Grapevine Ranch, N base of Grapevine Mountain, Big Bend National Park, 7-09-1969, M. A. Cazier, J. Bigelow, 15 ♂, 3 ♀, 2 imm, AMNH. Culberson County: 1.6 km N Kent, 23-06-1970, M. A. Cazier, L. Welch, O. F. Francke, 4 ♀, 3 imm., AMNH. Jeff Davis County: Panthon Spring, 25-06-1968, J. C. Lewis, 1 ♀, AMNH. 5.3 km N Presidio, 2-09-1972, J. Davidson, O. F. Francke, 8 ♂, 11 ♀, AMNH. 4.6 km E Presidio, 2-09-1972, J. Davidson, O. F. Francke, 6 ♂, 3 ♀, 1 imm., AMNH. 57.9 km S Marfa, 2-05-1980, L. Robbins, 2 juv., AMNH. Val Verde County: 0.8 km S Langry, 14-06-1974, L. Draper, A. Cazier, O. F. Francke, 1 ♀, AMNH. Winkler County: 4.8 km W Wink, 7.-04-1979, W. D. Sissom, 2 ♂, WDS. Soleglad and Fet (2008): México, Coahuila, Municipality of Cuatro Ciénegas: 1 ♂ 1 ♀, MES. USA, New Mexico: 1 ♂, MES. Texas, Brewster County: Lajitas, 1 ♂, GL. Stockwell (1986): USA, Texas, Brewster County: 4 km S of Alpine, 19-08-1968, S. C. Williams, J. Bigelow, M. M. Bentzien, 1 ♂, CAS. Big Bend National Park Grapevine Ranch, N base of Grapevine Mt., 7-09-1969, J. Bigelow, M. A. Cazier, 19 ♂, 5 ♀, AMNH; Big Bend National Park, 19.3 km SE Panther Jct., 17-08-1968, S. C. Williams, M. A. Cazier, 3 ♂, 3 ♀, CAS. 21.2 km SE of Panther Jct., 17, 17-08-1968, S. C. Williams, M. M. Bentzien, 14 ♂, 10 ♀, CAS. Big Bend National Park, Castalon, 8-08-1979, O. F. Francke, J. V. Moody, 1 ♂, AMNH. Crockett County: 10 mi. N of Iraan, 8-03-1986, S. A. Stockwell, J. M. Steele, 2 ♂, 4 ♀, SAS. Culberson County: 19.3 km E of Van Horn, 3-07-1965, M. H. Muma, 1 ♀, CAS. 1.6 km N of Kent, 25-06-1970, M. A. Cazier, Welch, O. F. Francke, 3 ♂, 4 ♀, AMNH. Hudspeth County: 12.8 km W of Van Horn, 11-06-1982, W. D. Sissom, 1 ♀, AMNH. Jeff Davis County: Phantom Springs, 25-06-1968, J. C. Lewis, 1 ♀, AMNH. Pecos County: 16.1 km N, 3 mi. W of Fort Stockton, 6-08-1967, W. L. Minckley, 1 ♂, CAS. Presidio County: Candelaria, 26-09-1977. R. Wilson, et al., 2 ♂, 1 ♀, CAS. 57.9 km S of Marfa, 2-05-1980, L. Robbins, 2 ♀, MWSU. 11.26 km N of Presidio, 27-11-1975, J. C. Cokendolpher, 1 ♀, MWSU. 5.3 km N of Presidio, 2.ix.1972, J. Davidson, O. F. Francke, 10 ♂, 11 ♀, AMNH. Val Verde County: 0.8 km S of Langtry, 14-06-1974, L. Draper, M. A. Cazier, O. F. Francke, 1 ♀, AMNH.
Examined material: Mexico, Aguascalientes, Municipality of Tepezalá: Cerro del Capulín, 22°14’30.30” N, 102°09’30.13”, 2159 m, 31-05-2020, F. Chávez-Samayoa, D. F. Simijaca-Salcedo, P. C. Hernández-Romero, 1 ♂, CZUAA SCO-517; 22°14’16.19” N, 102° 09’15.88” W, 2,138 m, 29-06-2020, F. Chávez-Samayoa, 1 ♀, CZUAA SCO-521; 22°14’06.83” N, 102°09’15.77” W, 2,130 m, 21-08-2020, F. Chávez-Samayoa, 2 ♂, 3 ♀, CZUAA SCO-539; 22°14’07.25” N, 102° 09’25.16” W, 2,117 m, 26-09-2020, F. Chávez-Samayoa, 1 ♀, CZUAA SCO-562; 22°13’52.88” N, 102°09’36.77” W, 2,127 m, 23-10-2020, I. Villalobos-Juárez, F. Chávez-Samayoa, D. F. Simijaca-Salcedo, 1 ♂, CZUAA SCO-576. San Luis Potosí, Municipality of Charcas: 23°16’00.36” N, 100°54’06.06” W, 2,029 m, -08-2010, O. F. Francke, D. W. Sissom, T. Anthon, G. Casper, V. Totti, H. Montaño, C. Santibáñez-López, A. Ballesteros, CNANSC2008. San Luis Potosí Municipality: 6-11-2009, D. Muro, 1 ♂, CZUAA SCO-394.
Remarks
Paruroctonus gracilior is distributed in Aguascalientes, Chihuahua, Coahuila, Durango, San Luis Potosí and the southern states of Arizona, New Mexico, and Texas in the USA (Francke, 2019).
Paruroctonus gracilior type locality is Tepezalá, the only municipality with specimens deposited in the CZUAA. Clearly, a psammophilous species component of the Chihuahuan desert adapted to sandy soils. We infer that populations could be established only in places with adequate substratum. In consequence, we suspect that, like D. zacatecanus, P. gracilior is a case of a complex of substrate-specialist species and is an excellent candidate to evaluate under a multispecies coalescence model (Degnan & Rosenberg, 2009) to test whether the species represents 1 or multiple lineages in such a wide distribution area, encompassing almost all Chihuahuan Desert.
Vaejovinae Thorell, 1876
The genus Vaejovis C. L. Koch in Aguascalientes is represented in the state by the mexicanus (Contreras-Félix & Francke, 2019) and nitidulus (Sissom & González-Santillán, 2004) species group.
Vaejovis nigrescens Pocock, 1898 (Fig. 13)
Taxonomic summary
Holotype: deposited in the British Museum of Natural History, England, UK. The only information associated to the specimen is a label indicating Mexico, 1 ♀ (Sissom, 2000).
Vaejovis nigrescens is distributed in Aguascalientes, Estado de México, Guanajuato, Jalisco, Michoacán, Querétaro, and Zacatecas (Sissom & González-Santillán, 2004).
Records from literature: Fet et al. (2006): México, Hidalgo, Muncipality of Pachuca: 2 ♀, MES. Sissom and Francke (1985): México, Aguascalientes, unspecified municipality: Río de Pirules, 1 ♀, AMNH. Ciudad de México: Mexico City, 4 ♂, 2 ♀, TOR Sc 516, ex. 617. Durango, Muncipality of Gómez Palacio: Dinamita, TOR Sc 517, ex. 656. Guanajuato, Muncipality of Guanajuato: Duges, 4 ♀, MNHN RS-0668; 2 ♀, MNHN RS-0678; 1 ♀, MNHN RS-0684; 1 ♂, 5 ♀, 7 first instars, MNHN RS-0671; in houses, Duges, 3 ♂ 4 ♀, TOR Sc 515; ex. 616, 2 ♀, BM; 1 ♀, BM; -06-1963, S. A. Minton, 1 ♀, SAM. Sissom and González-Santillán (2004): Mexico, Guanajuato, Municipality of Apaseo de Alto: 3 km S Huapango, 12-09-98, L. Ramírez, 1 ♂, UAQ LE00043. Municipality of Apaseo El Grande: El Tunal, 28-05-2000, A. R. Arias, 1 ♀, INDRE. Municipality of Atarjea: El Pilar (El Pilón) on wall of house, 12-05-2001, M. Suárez, 1 ♀, INDRE. Municipality of Celaya: 23-06-1979, M. Robledo, 2 ♂, 3 ♀, ENCB-IPN No. 49. Municipality of León: 27-05-1965, 1 ♂, 3 ♀, INDRE. Municipality of Irapuato: Rancho Cuchichuato, 25-04-2001, E. Martínez Zavala, 1 ♂, INDRE. Municipality of Samalanca: 20-05-2001, V. Jaime, 1 ♂, 1 ♀, ENCB-IPN. Municipality of Salvatierra: Emenguaro, -02-1969, 1 ♀, INDRE Sc 88199. Salvatierra, 31-10-1999, J. Callzontzin, 1 ♀ juvenile, UAQ. San José del Carmen, -01-1969, 2 ♂, 1 ♀, INDRE Sc 88195. San Pedro de los Naranjos, -02-1969, 3 ♂, 12 ♀, 2 juv. ♀, INDRE. Santiago Maravatio, -02-1969, 1 ♀, 2 juv. ♀, INDRE Sc 88198. Municipality of Victoria: Agua Fría, in house, 10-05-2001, M. Rivera-Díaz, 1 ♂, 1 ♀, INDRE. Jalisco, Municipality of La Huerta: Chamela, 04-04-1977, 1 ♀, CNAN-SC2497. Municipality of San Juan de los Lagos: 31-03-1979, H. Plascencia, 1 ♂, ENCB-IPN no. 189. Estado de México, Municipality of Ixtapan del Oro: 8-06-1941, CNAN-SC2499. Michoacán, Municipality of Apatzingan: 30-06-1989, L. Rios, 2 ♂, CNAN. Municipality of Hidalgo: Ciudad Hidalgo, 12-06-1987, I. Estrella, 1 ♂, CNAN-SC2505. Municipality of Huandacareo: 18-05-1989, D. A. Fernández, 1 ♂, CNAN; 15-05-1989, 2 ♀, CNAN. Municipality of Juárez: Parícuaro, 31-06-1988, B. Castro-Zarco, 1 ♀, CNAN -SC2506. Municipality of Junganpeo: Agua Blanca, in house, 1 ♂, CNAN-SC2508. Municipality of La Piedad: 25-06-1987, M. Méndez, 1 ♀, CNAN-SC2504. Municipality of Morelia: 15-06-1987, Á. Tinoco, 1 ♂ juv., CNAN-SC2502; 7-09-1986, J. Fabela, 1 ♂, CNAN; 30-06-1987, Ma. De J. Nereyda, 1 ♂, 1 ♀, CNAN-SC2496; 28-05-1987, R. Maya, 2 ♂, CNAN-SC2501; 7-06-1987, I. Tinoco, 1 ♂, CNAN-SC2494; 12-05-1986, 2 ♀, CNAN-SC2498; 11-07-1987, O. Barriga, 1 ♀, CNAN-SC2491; 8-08-1984, J. López, 1 ♂, CNAN-SC2516. El Reolito, 2 juv., J. Ponce, CNAN-SC2510. Municipality of Taretan: 12-07-1996, 1 ♂, CNAN-SC2492. Municipality of Uruapan: 3-05-1988, M. Moreno G, 1 ♂, CNAN- SC2511. Municipality of Zamora: 2-06-1991, A. R. Santos, 1 ♀, CNAN-SC2509. Municipality of Zitacuaro: 6-06-1985, 1 ♀, CNAN-SC2500. Querétaro, Municipality of Querétaro: 7-09-1998, R. Barron, Cid, Morales, 1 ♀, UAQ-LE0008. Zacatecas: Aguas Frías, -06-1963, 1 ♂, INDRE Sc 88203.
Examined material: Mexico, Aguascalientes, Municipality of Aguascalientes: Puertecito de la Virgen, 21°57’41.90” N, 102°16’04.37” W, 20-10-2020, C. Ramos, D. Rivero, 1 ♂, CZUAA SCO-569; -05-2015, L. Ruíz, 1 ♂, CZUAA SCO-354. Cañada Honda, 12-05-2010, N. Parga-Flores, 1 ♀, CZUAA SCO-353. Jardín Botánico Rey Netzahualcóyotl, 25-04-2014, R. Rivera-Martínez, 1 ♂, CZUAA SCO-346. Aguascalientes, 29-05-2012, S. Valencia-Chico, 1 ♀, CZUAA SCO-348; 12-05-2014, L. P. Cervantes-Zavalsa, 1 ♂, CZUAA SCO-351. Municipality of Asientos: Presa Charcos Verdes, 6-04-1994, A. Muñoz, 1 ♀, CZUAA SCO-361. Municipality of Calvillo: Presa Malpaso, 10-06-2004, F. Ramos-Martínez, 1 ♀, CZUAA SCO-345; 13-06-2023, E. Calvillo, 1 ♂, 2 ♀, CZUAA SCO-735. Municipality of Jesús María: Maravillas, 7-05-2004, L. F. López, 1 ♀, CZUAA SCO-350; Jesús María área urbana, A. Carmona, 1 ♂, CZUAA SCO-344. Municipality of Rincón de Romos: 17-04-2004, C. Arias-Camino, 1 ♀, CZUAA SCO-352. Guanajuato, Municipality of Guanajuato: 25-06-1999, L. L. O., 1 ♀, CZUAA SCO-336; 15-04-2014, C. D. Andrade-Moreno, 1 ♀, CZUAA SCO-341; 25-06-2007, M. C. Flores-Banderas, 1 ♂, CZUAA SCO-427. Municipality of Irapuato: 25-04-1999, M. Martínez-Garnica, 1 ♂, CZUAA SCO-333; 05-09-1987, Eliazarrás-Rivera, González-López, 1 ♂, CZUAA SCO-338. Municipality of Jaral del Progreso: 18-04-2009, C. García-Balderas, 1 ♀, CZUAA SCO-339; 18-04-2009, D. Valdés-Jiménez, 1 ♀, CZUAA SCO-342. Municipality of León: 21°00’32.73” N, 101°14’57.65” W, 3-06-2015, Ernestina, 1 ♀, CZUAA SCO-359. León, -06-2007, M. Ontiveros, 1 ♀, CZUAA SCO-439; 25-05-2007, M. C. Flores-Balderas, 1 ♂, CZUAA SCO-459. Municipality of Silao: -06-1986, M. Hernández A, 1 ♀, CZUAA: SCO-337. Jalisco, Municipality of Belén del Refugio: -08-1986, S. Ruvalcaba, 1 ♀, CZUAA SCO-355. Municipality of Encarnación de Díaz: 5-03-2013, C. Franco-Servín de la Mora, 1 ♀, CZUAA SCO-356; 25-05-2000, R. Guerrero-Alba, 1 ♀, CZUAA SCO-357; 15-04-2013, J. E. Díaz-Plascencia, 1 ♀, CZUAA SCO-363; 22-05-2005, K. G. Torres-Hernández, 1 ♀, CZUAA SCO-364; 7-06-2000, R. Guerrero-A, 1 ♂, CZUAA SCO-365. Zacatecas, Municipality of Valparaíso: 5-03-1999, J. G. Macías-Barragán, 1 ♀, CZUAA SCO-367.
Remarks
The municipalities recorded here include Aguas-calientes, Asientos, Calvillo, Jesús María, Rincón de Romos, and San Francisco de los Romo. Vaejovis nigrescens is a lithophilic species distributed in the transitional area between the Trans Mexican Volcanic Belt, the Chihuahuan desert, and the Sierras Madre Occidental provinces. Like M. spadix, V. nigrescens exhibits a wide distribution in Aguascalientes. Unlike the species of Mesomexovis, several species of the nitidulus species group of Vaejovis are distributed in the Chihuahuan desert, suggesting a different origin and species diversification compared to the genus Mesomexovis, maladapted to xeric environments (González-Santillán & Prendini, 2013).
Figure 14. Habitus of male (top) and female (bottom) of V. aguazarca, scale = 1cm.
Holotype: deposited in the Colección Nacional de Arácnidos, UNAM, México City. México, Aguascalientes, Municipality of San José de Gracia: Sierra Fría, Estación Biológica Agua Zarca, 22°05’26.00” N, 102°33’22.67” W, 2,173 m, 31-08-2015, J. E. Díaz-Placencia, J. L. Aguilar, ♂, CNAN-T01492. Paratypes 22°05’31.96” N, 102°33’27.86” W, 2,190 m, 7-09-2020. F. Chávez-Samayoa, D. F. Simijaca-Salcedo, 1 ♂, 4 ♀, CNAN-T01493; 22°05’26.00” N, 102°33’22.67” W, 2,190 m, 9-11-2020, F. Chávez-Samayoa, D. F. Simijaca-Salcedo, P. García-Macías, 1 ♂, 1 ♀, CNAN-T01494; 22°05’34.58” N, 102°33’40.03” W, 2,181m, 19-02-2021, F. Chávez-Samayoa, D. F. Simijaca-Salcedo, 1♂, CNAN-T01495.
Examined material: Mexico, Aguascalientes, Municipality of Jesús María: Presa Abelardo Rodríguez, 21°55’7.64” N, 102°24’28.62” W, 1,927 m, 8-06-2003. J. E. Valencia, 1 ♀, CZUUA SCO-382. Los Arquitos, 21°55’17.94” N, 102°23’49.39” W, 1935 m, 08-2020, F. Chávez-Samayoa, S. S. Gutiérrez-Ramírez, D. F. Simijaca-Salcedo, 1 ♀, CZUAA SCO-583; 21°55’17.94” N, 102°23’49.39” W, 1935 m, 28-11-2020, F. Chávez-Samayoa, D. F. Simijaca-Salcedo, 1 ♀, CZUAA SCO-606. Municipality of Rincón de Romos: Pabellón de Hidalgo, 22°11’18.48” N, 102°21’22.56” W, 2,046 m, 15-05-2013, H. Puga-Arévalo, 1 ♀, CZUUA SCO-386. Municipality of San Francisco de los Romo: El Chicalote, 22°00’43.26” N, 102°15’11.84” W, 1,896 m, -10-2019., M. J. Perales-Olivares, 1 ♀, CZUAA SCO-500. Muncipality of San José de Gracia: Estación Biológica Agua Zarca, 22°05’31.96” N, 102°33’27.86” W, 2,190 m, 7-09-2020, F. Chávez-Samayoa, D. F. Simijaca-Salcedo, 3 ♂, 6 ♀, CZUAA SCO-552; 22°05’33.18” N, 102°33’26.21” W, 2,190 m, 9-09-2020, F. Chávez-Samayoa, D. F. Simijaca-Salcedo, P. García-Macías, 5 ♂, CZUAA SCO-571; 22°05’34.58” N, 102°33’40.03” W, 2,181 m, 19-02-2021, F. Chávez-Samayoa, D. Fernando Simijaca-Salcedo, 1 ♂, CZUAA SCO-608; 22°05’31.92” N, 102°33’27.72” W, 1-04-2021, F. Chávez-Samayoa, D. F. Simijaca-Salcedo, A. Jaime, 23 ♀, CZUAA SCO-702; 22°05’33.73” N, 102°33’53.21” W, 2,201 m, J. E. Díaz-Plascencia, C. Franco-Servín de la Mora, 1 ♂, 2 ♀, CNAN-S4005.
Remarks
Vaejovis aguazarca presents the most accentuated sexual dimorphism with body size at 23 ♂ and 32 ♀ mm among the mexicanus group species distributed in Aguascalientes. Vaejovis aquascalentensis Chávez-Samayoa & González-Santillán (2022), in contrast, is a medium size scorpion at 28 ♂ and 30 ♀ mm, and V. tenamaztlei Contreras-Félix et al. (2015), the smallest of them, is at 20 ♂ and 25 ♀ mm. The original description of Vaejovis aguazarca includes a detailed description of the natural history of the 3 species of this species group (Chávez-Samayoa et al., 2022). The authors indicated that the species uses a broad habitat, including oak bark nooks, under rocks, the base of yucca trees, and leaf litter, among others, as a refuge. The species also presents a peak of superficial activity during the rainy season, and it appears to be a well-separated altitudinal niche use when contrasted with V. aquascalentensis and V. tenamaztlei. Vaejovis aguazarca uses altitudinal levels between 1,927 and 2,201 m, whereas V. tenamaztlei uses between 2,390 and 2,864 m, a sharp difference of 100 m. However, V. aquascalentensis overlaps both altitudinal ranges from 1,601 to 2,367 m. Another difference is that V. tenamaztlei and V. aguazarca extend their distribution within the Sierra Madre Occidental and the Chihuahuan desert provinces (Chávez-Samayoa et al., 2022, their Fig. 22), whereas V. aquascalentensis seems to occupy the Pacific lowlands within Aguascalientes.
Figure 15. Habitus of male (top) and female (bottom) of V. aquascalentensis, scale = 1 cm.
Taxonomic summary
Holotype: deposited in the Colección Nacional de Arácnidos, UNAM, México City. Mexico, Aguascalientes, Municipality of Calvillo: Presa Los Alamitos, 21°43’49.85” N, 102°42’50.51” W, 2,367 m, 24-05-2021, F. Chávez-Samayoa, M. E. Samayoa-Sepúlveda ♂, CNAN-T 01496. Paratypes: 21°43’49.85” N, 102°42’50.51” W, 2,367 m, 17-05-2021, F. Chávez-Samayoa, D. Ortíz-Álvarez, 2 ♂, 1 ♀, CNAN-T01497. Presa el Adobe, inside a narrow canyon, 21°48’20.12” N, 102°40’55.99” W, 2,026 m, 3-08-2017, J. E. Díaz-Plascencia, E. González-Santillán, 3 ♂, CNAN-T01498.
Remarks
Vaejovis aquascalentensis was first recorded in the state as an undescribed species of Pseudouroctonus by Escoto-Rocha & Delgado-Saldívar (2008). However, Chávez-Samayoa et al. (2022) examined the specimens and concluded that the species belongs to the mexicanus species group. Likely, this species is also distributed in Jalisco and Zacatecas, although more fieldwork is required to confirm this supposition.
Figure 16. Habitus of male (top) and female (bottom) of V. tenamaztlei, scale = 1 cm.
Holotype: deposited in the Colección Nacional de Arácnidos, UNAM, México City, México. México, Aguascalientes, Municipality of Calvillo: 3 km to the east of Alamitos dam, Sierra del Laurel, 21º44’07.12” N, 102º41’51.11” W, 2,440 m, 24-07-2012, O. Francke, G. Contreras, D. Barrales, A. Valdez, 1 ♂, CNAN-T0871, paratypes same locality, 1 ♂, 3 ♀, CNAN T-0872 and Los Alisos, Sierra del Laurel, 21º43’32.20” N, 102º42’01.40” W, 2,415 m, 10-01-2011. J. C. Arenas. 1 ♂ deposited in the American Museum of Natural History.
Examined material: Mexico, Aguascalientes, Muni-cipality of Calvillo: Presa Los Alamitos, 21°43’49.44” N, 102°42’50.04” W, 2,368 m, 14-06-2021 F. Chávez- Samayoa, M. E. Samayoa-Sepúlveda, 2 ♂, 5 ♀, CZUAA SCO-616; 17.v.2021, F. Chávez-Samayoa, D. Ortiz-Álvarez, 5 ♂, 5 ♀, CZUAA SCO-632. Municipality of El Llano: Juan el Grande, 21°55’54.01” N, 101°55’06.18” W, 2,495 m, 18-10-2019, F. Chávez-Samayoa, E. González-Martínez, 1 ♀, CZUAA SCO-586; 21°56’22.88” N, 101°55’18.19” W, 2,390 m, 27-09-2020 F. Chávez-Samayoa, D. F. Simijaca Salcedo, I. E. Gallegos Vieyra, 2 ♂, 1 ♀, CZUAA SCO-566; 21°56’21.77” N, 101°55’18.30” W, 2,386 m, 25-09-2020, F. Chávez-Samayoa, D. F. Simijaca-Salcedo, P. C. Hernández-Romero, 7 ♂, 1 ♀, CZUAA SCO-567. Municipality of San José de Gracia: Monte Grande, 22°15’44.50” N, 102°37’43.03” W, 2,864 m, 19-09-2019, F. Chávez-Samayoa, J. J. Ayala-Rodríguez, R. Rosales, C. Franco-Servín de la Mora, E. Quiroz, 2 ♂, 3 ♀, CZUAA SCO-506; 22°15’44.50” N, 102°37’43.03” W, 2,864 m, 8-10-2019, F. Chávez-Samayoa, J. J. Ayala-Rodríguez, E. Quiroz, E. González-Martínez, 3 ♂, 2 ♀, CZUAA SCO-481.
Remarks
Vaejovis tenamaztlei was the first member of the mexicanus species group recorded in Aguascalientes and most likely is also distributed in Jalisco and Zacatecas. Like other species of the group, this species can be found in oak forests of the municipalities of Calvillo, El Llano and San José de Gracia (Chávez-Samayoa et al., 2022).
Key to identification of the scorpion genera and species of Aguascalientes Mexico.
– Cheliceral movable finger ventral medial denticle absent (Fig. 2B, C); pedipalp chela fixed and movable fingers denticles aligned as a straight line of retrolateral and prolateral denticles (Fig. 17B); pedipalp patella trichobothrial set v1-v3 present (Fig. 18B); pentagonal sternum (Diplocentridae/ Vaejovidae) 3
2. Carapace with each median ocelli surrounded by an incomplete areola of pigmentation; (Fig. 4A); pectinal basal piece with a central depression (Fig. 19A), pectinal tooth count 24-28 in males and 22-25 in females Centruroides balsasensis
– Carapace with each median ocelli surrounded by a complete areola of pigmentation; (Fig. 4B); pectinal basal piece without central depression (Fig. 19B); pectinal tooth count 23-24 in males and 20-21 in females Centruroides infamatus
6. Telson, dorsal surface with small fusiform, whitish glandular area anterior to base of aculeus (Fig. 27A) (minute to obsolete in Chihuahuanus bilineatus) [Chihuahuanus] 7
– Telson, dorsal surface without small fusiform, whitish glandular area anterior to base of aculeus (Fig. 27B) (Mesomexovis/Thorellius) 9
-Pedipalp patella dorsal retrolateral carinae granular or weakly granular (Fig. 28B); metasomal segments III-IV ventral carinae granular (Fig. 29C); telson caudal gland fusiform and evident 8
8. Carapace, pedipalp, terguites, and legs with evident dorsal patterns of infuscation (Fig. 30A); sternite VII with setae non arranged in a linear path (Fig. 31A) Chihuahuanus coahuilae
-Carapace and terguites with faint dorsal patterns of infuscation (Fig. 30B), pedipalps and legs immaculate; sternite VII with setae arranged in a linear path (Fig. 31B) Chihuahuanus glabrimanus
9. Chelicerae dorsal manus with 2 or more macrosetae (Fig. 2B); pedipalp chela carinae obsolete, fingers without median lobe, movable finger with a single denticle on seventh position; pectinal tooth count 20-21 in males, 17-18 in females; metasomal segments I-IV ventral carinae obsolete but with marked infuscation (Fig. 32) Mesomexovis spadix
– Chelicerae dorsal manus with 1 macrosetae (Fig. 2C); pedipalp chela carina granular, fingers with median lobe present, movable finger with a pair of denticles on seventh position; pectinal tooth count 23-25 in males, 20-22 in females; metasomal segments I-IV ventral carina costate without infuscation (Fig. 33) Thorellius intrepidus
10. Carapace anterior margin with 4 pairs of macrosetae; general coloration dark brown; pectinal tooth count 19-21 in males and 17-21 in females; metasomal segments I-IV ventral submedian carinae obsolete (Fig. 25B) Vaejovis nigrescens
– Carapace anterior margin with 3 pairs of macrosetae; general coloration light brown to reddish; pectinal tooth count 14-16 in males and 12-14 in females; metasomal segments I-IV ventral submedian carinae granular (Fig. 29C) 11
11. Pedipalp chela dorsal carinae immaculate; telotarsi ventral spinules grouped as a cluster (Fig. 34A); adult male telson dorsal surface with conspicuous hyaline glandular area (Fig. 27C) Vaejovis tenamaztlei
– Pedipalp chela dorsal carinae infuscated; telotarsi ventral spinules disposed as a straight row (Fig. 34B); adult male telson dorsal surface without conspicuous hyaline glandular area (Fig. 27B) 12
12. Chelicerae dorsal manus with 1 macrosetae (Fig. 2A, C); pedipalp femur retrolateral dorsosubmedian carina composed of 6 or 7 granules; chela movable finger with 7 prolateral and 6 retrolateral denticles Vaejovis aguazarca
– Chelicerae dorsal manus with 2 macrosetae (Fig. 2B); pedipalp femur retrolateral dorsosubmedian carinae costate in males or weakly granular in females; chela movable finger with 7 prolateral and retrolateral denticles Vaejovis aquascalentensis
Figure 17. Movable finger of C. infamatus (A) showing imbricated tooth rows, and M. spadix (B) showing aligned retrolateral and prolateral denticles.
Discussion
Despite being one of the smallest states of Mexico, the topography, climatic, and environmental conditions create a combination of factors that enhance biological diversity in Aguascalientes. Currently, Aguascalientes scorpion fauna comprises 13 species within the families Buthidae, Diplocentridae, and Vaejovidae (Table 1). Nonparametric estimations led us to conclude that the CZUAA currently holds a complete sample of the state’s diversity. Although these estimations must be taken, cautionary, as a lower bound of the actual species richness (Chao, 1984), this is especially true in taxa like scorpions with low vagility (Bryson Jr. et al., 2013), some of which are specialized in distinct microhabitats, making them less prone to be collected. In these terms, if we consider the upper limit that results from the sum of the standard error to the expected species number of each estimator reported in Table 2, the completeness of the CZUAA’s species inventory might be between 85.7-100% under the 10 × 10 km grids approach and between 92.3-100% under the 5-year classes approach. This last result can be explained by the fact that, under this approach, P. gracilior and V. tenamaztlei are doubletons, and thus, the calculation of Jackknife 2 resulted above 100%. Another factor to consider is that we are taking political boundaries as species limits, which make little sense in biological systems but result in a pragmatic approach. Our goal is to produce information that can be used for decision-makers.
Figure 18. Ventral view of pedipalp patella of C. infamatus (A), and Chihuahuanus glabrimanus (B).
Figure 19. Coxosternal area and pectinal basal piece of C. balsasensis (A), and C. infamatus (B).
Figure 20. Dorsal view of pedipalp patella of D. zacatecanus (A), V. aquascalentensis (B), and T. intrepidus (C).
Figure 21. Ventral view of leg III of D. zacatecanus (A), P. gracilior (B), and V. nigrescens (C).
Figure 22. Lateral view of telson of D. zacatecanus (A), and M. spadix (B).
Figure 23. Chela fingers of T. intrepidus (A), V. nigrescens (B), and P. gracilior (C). Trichobothria signaled as follows: 1 basal, 2 = internal terminal.
Figure 24. Carapace of D. zacatecanus (A), P. gracilior (B), and Vaejovis tenamaztlei (C).
Figure 25. Lateral (A), and ventral (B) view of the metasoma of V. nigrescens.
Figure 26. Lateral view of the metasoma of P. gracilior.
Figure 27. Dorsal view of telson of C. glabrimanus (A), P. gracilior (B), and V. tenamaztlei (C).
Figure 28. Dorsal view of pedipalp patella of C. bilineatus (A), and C. glabrimanus (B).
Figure 29. Ventral view of metasoma of C. bilineatus (A, B), and C. glabrimanus (C).
The key provided by Hoffmann (1931) in his original monography distinguishes M. spadix from M. punctatus Karsch based on the body base color and a higher pectinal tooth count, which led him to consider it as a subspecies. However, more recent contributions found further characteristics that differentiate these species. For instance, Fet et al. (2006) presented SEM micrographs of M. punctatus with 2-8 denticles conforming laterobasal aculear serrations (LAS) on the aculeus; however, the specimens of M. spadix examined under UV light during this study do not possess LAS. Finally, M. variegatus is devoid of ventral median carinae in metasomal segment V (Santibáñez-López & Sissom, 2010), which is present in M. spadix (Fig. 32).
Figure 30. Carapace of C. coahuilae (A), and C. glabrimanus (B).
Figure 31. Sternite VII of C. coahuilae (A), and C. glabrimanus (B).
Figure 32. Ventral view of the metasoma of M. spadix.
Figure 33. Ventral view of the metasoma of T. intrepidus.
This contribution is one of the few that present a taxonomic identification key to the species of a political state in Mexico. Currently, only the Mexican states of Baja California, Baja California Sur, Estado de México, and Morelos have a taxonomic key that allows determination to species level (Córdova-Athanasiadis, 2005; González-Santillán, 2004; Williams, 1980).
Natural history collections (NHC) are an invaluable source of information for evolutionary, ecological, taxonomical, and biogeographical research, as well as future applications and yet unexplored fields (Miller et al., 2020). Researchers focused on diverse taxonomical groups such as mammals (McLean et al., 2016), corals (Hoeksema et al., 2011), insects (Kharouba et al., 2019), parasites (Harmon et al., 2019), among others have also stressed the importance of NHC for the evaluation of impacts on biodiversity due to global change and human impact (Shaffer et al., 1998). At the same time, several authors have pointed out a decline in collecting activities and the deposition of specimens due to factors ranging from decline of taxonomical expertise to funding (Rohwer et al., 2022; Salvador & Cunha, 2020; Thompson et al., 2021), increasing regulations and ethical concerns. This contribution epitomizes the importance of local and regional NHCs because without the empirical evidence provided by the CZUAA and the CNAN, this contribution would not be possible, and valuable resources and information, such as a taxonomic key and the recognition of introduced species of public health importance, such as C. balsasensis, would have required comparatively more effort and time to discover.
Figure 34. Ventral view of the telotarsi of V. tenamaztlei (A), and V. aquascalentensis (B).
Acknowledgements
This contribution received funding from the doctoral scholarship 717372 granted to the first author by the Consejo Nacional de Humanidades, Ciencia y Tecnología (Conahcyt) and the project 321671 of Conahcyt and PIB22-2 of the Departamento de Biología de la Universidad Autónoma de Aguascalientes. We thank Fernando Álvarez Padilla of the Laboratorio de Aracnología of the Facultad de Ciencias, UNAM, and José Jesús Sigala Rodríguez of the CZUAA for their help and advice during the photography process of this contribution. We thank Daniel Alexander Carrillo Martínez, Mónica Croce and Patricia García Macías for their assistance during laboratory work. We thank all the collectors, especially Emmanuel González-Martínez, Luis Rodrigo Haro-Tapia, Pablo César Hernández-Romero, Diego Fernando Simijaca-Salcedo, and Iván Villalobos-Juárez, for their constant help. Collection permit FAUT-0213 from Semarnat to JAEM.
Appendix 1. Database of species incidence on a 10 × 10 km grid covering the state of Aguascalientes number of grids (n) = 61. Abbreviations as follows: C. inf = Centruroides infamatus, C. bil = Chihuahuanus bilineatus, C. coa = Chihuahuanus coahuilae, C. gla = Chihuahuanus glabrimanus, D. zac = Diplocentrus zacatecanus, M. spa = Mesomexovis spadix, P. gra = Paruroctonus gracilior, T. int = Thorellius intrepidus, V. agu = Vaejovis aguazarca, V. aqu = Vaejovis aquascalentensis, V. nig = Vaejovis nigrescens, V. ten = Vaejovis tenamaztlei.
C. inf
D. zac
C. bil
C. coa
C. gla
M. spa
P. gra
T. int
V. agu
V. aqu
V. nig
V. ten
0
0
0
0
0
0
0
0
0
0
0
0
1
0
0
0
0
1
0
0
0
0
0
1
1
0
0
0
1
1
0
1
0
1
0
1
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
1
0
0
0
0
1
0
0
0
0
0
0
1
0
0
0
0
1
0
0
0
0
0
0
1
0
0
0
0
1
0
0
0
1
0
0
0
0
0
0
0
1
0
0
0
1
0
0
0
0
0
0
0
0
0
0
0
0
0
1
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
1
0
0
0
0
0
0
1
0
0
0
0
1
0
0
0
0
1
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
1
0
0
1
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
1
0
0
0
0
0
0
0
0
0
0
0
1
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
1
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
1
0
0
0
0
0
0
1
0
1
1
1
1
0
0
1
0
1
0
0
0
0
0
0
1
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
1
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
1
0
0
1
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
1
0
0
1
0
0
1
0
0
0
0
0
0
1
1
0
0
0
1
0
1
0
1
0
0
0
0
1
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
Appendix 1. Continued
C. inf
D. zac
C. bil
C. coa
C. gla
M. spa
P. gra
T. int
V. agu
V. aqu
V. nig
V. ten
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
1
1
0
0
0
0
0
1
0
0
0
0
0
1
0
0
0
0
0
0
0
1
0
0
1
1
1
0
0
0
0
0
0
0
1
0
0
0
0
0
0
0
0
0
0
0
0
1
1
1
0
1
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
1
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
1
0
0
0
0
1
0
0
0
0
0
0
0
0
0
1
1
0
1
1
0
0
0
0
0
1
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
Appendix 2. Database of species incidence in Aguascalientes in 5 years classes, number of classes (n) = 9. Abbreviations as follows: C. inf = Centruroides infamatus, C. bil = Chihuahuanus bilineatus, C. coa = Chihuahuanus coahuilae, C. gla = Chihuahuanus glabrimanus, D. zac = Diplocentrus zacatecanus, M. spa = Mesomexovis spadix, P. gra = Paruroctonus gracilior, T. int = Thorellius intrepidus, V. agu = Vaejovis aguazarca, V. aqu = Vaejovis aquascalentensis, V. nig = Vaejovis nigrescens, V. ten = Vaejovis tenamaztlei.
C. inf
D. zac
C. bil
C. coa
C. gla
M. spa
P. gra
T. int
V. agu
V. aqu
V. nig
V. ten
1979-83
1
1
0
0
1
1
0
0
0
1
0
0
1984-88
1
0
1
0
1
1
0
0
0
0
1
0
1989-93
1
1
0
1
1
1
0
0
0
0
0
0
1994-98
1
0
0
1
1
1
0
0
0
0
1
0
1999-03
1
0
1
0
1
1
0
1
1
0
0
0
2004-08
1
1
1
1
1
1
0
0
1
0
1
0
2009-13
1
1
0
0
1
1
0
0
1
1
1
0
2014-18
1
1
1
1
1
1
1
1
1
1
1
1
2019-22
1
1
1
1
1
1
1
1
1
1
1
1
References
Basualdo, C. V. (2011). Choosing the best non-parametric richness estimator for benthic macroinvertebrates databases. Revista de la Sociedad Entomológica Argentina, 70 , 27–38.
Beck, J., & Kitching, I. J. (2007). Estimating regional species richness of tropical insects from museum data: a comparison of a geography-based and sample-based methods. Journal of Applied Ecology, 44, 672–681. https://doi.org/10.1111/j. 1365-2664.2007.01291.x
Braga-Pereira, G. F., & Santos, A. J. (2021). Asexual reproduction in a sexual population of the Brazilian yellow scorpion (Tityus serrulatus, Buthidae) as evidence of facultative parthenogenesis. Journal of Arachnology, 49, 185–190. https://doi.org/10.1636/JoA-S-20-001
Brown, C. A., Davis, J. M., O’Conell, D. J., & Formanowiz Jr., D. A. (2002). Surface density and nocturnal activity in a west Texas assemblage of scorpions. The Southwestern Naturalist, 47, 409–419. https://doi.org/10.2307/3672498
Bryson, R. W. Jr. (2014) Bacterial endosymbiont infections in ‘living fossils’: a case study of North American vaejovid scorpions. Molecular Ecology Resources, 14, 789–793. https://doi.org/10.1111/1755-0998.12220
Bryson, R. W. Jr., Riddle, B. R., Graham, M. R., Smith, B. T., & Prendini, L. (2013). As Old as the Hills: Montane scorpions in southwestern North America reveal ancient associations between biotic diversification and landscape history. Plos One, 8, e52822. https://doi.org/10.1371/journal.pone.0052822
Chao, A. (1984). Nonparametric estimation of the number of classes in a population. Scandinavian Journal of Statistics, 11, 265–270.
Chávez-Samayoa, F., Díaz-Plascencia, J. E., & González-Santillán, E. (2022). Two new species of Vaejovis (Scorpiones: Vaejovidae) belonging to the mexicanus group from Aguascalientes, Mexico, with comments on the homology and function of the hemispermatophore. Zoologischer Anzeiger, 298, 148–169. https://doi.org/10.1016/j.jcz.2022.04.005
Contreras-Félix, G. A., Francke, O. F., & Bryson Jr., R. W. (2015). A new species of the “mexicanus” group of the genus Vaejovis C. L. Koch, 1836 from the Mexican state of Aguascalientes (Scorpiones: Vaejovidae). Zootaxa, 3936, 131–140. https://doi.org/10.11646/zootaxa.3936.1.8
Contreras-Félix, G. A., & Francke, O. F. (2019). Taxonomic revision of the “mexicanus” group of the genus Vaejovis C. L. Koch, 1836 (Scorpiones: Vaejovidae). Zootaxa, 4596, 1–100. https://doi.org/10.11646/zootaxa.4596.1.1
Córdova-Athanasiadis, M. (2005). Escorpiofauna (Arachnida: Scorpiones) del estado de Morelos, México(Bachelor Thesis). Facultad de Ciencias Biológicas, Universidad Autónoma del Estado de Morelos, Cuernavaca, Morelos.
Degnan, J. H., & Rosenberg, N. A. (2009). Gene tree discordance, phylogenetic inference and the multispecies coalescent. Trends in Ecology & Evolution, 24, 332–340. https://doi.org/10.1016/j.tree.2009.01.009
De la Riva-Hernández, G. (2014). Colección Zoológica de la Universidad Autónoma de Aguascalientes. In J. J. Sigala-Rodríguez, M. D. Barba-Ávila, E. Meza-Rangel, G. Castorena-Esparza, & G. González-Adame (Eds.), La biología en la UAA: 40 años de desarrollo (pp. 77–82). Aguascalientes: Universidad Autónoma de Aguascalientes.
Escoto-Rocha, J., & Delgado-Saldívar, L. (2008). Insectos y arácnidos. InH. Ávila-Villegas, E. D. Melgarejo, & A. Cruz-Angón (Eds.), La biodiversidad en Aguascalientes: estudio de caso (pp. 126–128). Aguascalientes:Comisión Nacional para el Conocimiento y Uso de la Biodiversidad/ Instituto del Medio Ambiente del Estado de Aguascalientes/ Universidad Autónoma de Aguascalientes.
Esposito, L. A., Yamaguti, H. Y., Pinto-Da-Rocha, R., & Prendini, L. (2018). Plucking with the plectrum: phylogeny of the New World buthid scorpion subfamily Centruroidinae Krauss, 1955 (Scorpiones: Buthidae) reveals evolution of three pecten-sternite stridulation organs. Arthropod Systematics & Phylogeny, 76, 87–122. https://doi.org/10.3897/asp.76.e31942
Fattorini, S. (2013). Faunistic knowledge and insect species loss in an urban area: the tenebrionid beetles of Rome. Journal of Insect Conservation, 17, 637–643. https://doi.org/10.1007/s10841-013-9569-5
Fet, V., & Lowe, G. (2000). Family Buthidae C. L. Koch, 1837. In V. Fet, W. D. Sissom, G. Lowe, & M. E. Braunwalder (Eds.), Catalog of the scorpions of the world (1758-1998) (pp. 54–286). New York: New York Entomological Society.
Fick, S. E., & Hijmans, R. J. (2017). WorldClim 2: new 1km spatial resolution climate surfaces for global land areas. International Journal of Climatology, 37, 4302–4315. https://doi.org/10.1002/joc.5086
Francke, O. F. (2019). Scorpions (Arachnida: Scorpiones) from the Cuatro Ciénegas Basin. In F. Alvarez, & M. Ojeda (Eds.), Animal diversity and biogeography of the Cuatro Ciénegas Basin: an endangered hyperdiverse oasis (pp. 53–59). Switzerland: Springer International Publishing. https://doi.org/10.1007/978-3-030-11262-2_4
Gertsch, W. J., & Soleglad, M. (1966). The Scorpions of the Vejovis boreus Group (Subgenus Paruroctonus) in North America (Scorpionida, Vejovidae). American Museum Noti- vitates, 2278, 1–54.
González-Santillán, E. (2004). Escorpiofauna del Estado de México(Master Thesis). Instituto de Biología, Universidad Nacional Autónoma de México. México D.F.
González-Santillán, E., & Possani, L. D. (2018). The North American scorpion species of public health importance with a reappraisal of historical epidemiology. Acta Tropica, 187, 264–274. https://doi.org/10.1016/j.actatropica.2018.08.002
González-Santillán, E., & Prendini, L. (2013). Redefinition and Generic revision of the North American Vaejovid scorpion subfamily Syntropinae Kraeplin, 1905, with descriptions of six new genera. Bulletin of the American Museum of Natural History, 382, 1–71. https://doi.org/10.1206/830.1
González-Santillán, E., & Prendini, L. (2015). Phylogeny of the North American vaejovid scorpion subfamily Syntropinae Kraepelin, 1905, based on morphology, mitochondrial and nuclear DNA. Cladistics, 31, 341–405. https://doi.org/ 10.1111/cla.12091
González-Santillán, E., & Prendini, L. (2018). Systematic revision of the North American syntropine vaejovid scorpion genera Balsateres, Kuarapu, and Thorellius, with descriptions of three new species. Bulletin of the American Museum of Natural History, 420, 1–81. https://doi.org/10.1206/0003-0090-420.1.1
Guralnick, R. P., & Van Cleve, J. (2005). Strengths and weaknesses of museum and national survey data sets for predicting regional species richness: Comparative and combined approaches. Diversity and Distributions, 11, 349–359. https://doi.org/10.1111/j.1366-9516.2005.00164.x
Harmon, A., Littlewood, D. T., & Wood, C. L. (2019). Parasites lost: using natural history collections to track disease change across deep time. Frontiers in Ecology and the Environment, 17, 157–166. https://doi.org/10.1002/fee.2017
Hoeksema, B. W., Van der Land, J., Van der Meij, S. E. T., Van Ofwegen, L. P., Reijnen, B. T., Van Soest, R. W. M. et al. (2011). Unforeseen importance of historical collections as baselines to determine biotic change of coral reefs: the Saba Bank case. Marine Ecology, 32, 135–141. https://doi.org/10.1111/j.1439-0485.2011.00434.x
Hoffmann, C. C. (1931). Monografías para la entomología médica de México. Monografía Núm. 2, Los escorpiones de México, Primera Parte: Diplocentridae, Chactidae, Vejovida. Anales del Instituto de Biología, Universidad Nacional Autónoma de México, 2, 291–408.
Hoffmann, C. C. (1932). Monografías para la entomología médica de México Monografía NUM. 2 los escorpiones de México, Segunda Parte: Buthidae. Anales del Instututo de Biología, Universidad Nacional Autónoma de México, 3, 103–361.
Hoffmann, C. C. (1936). La distribución geográfica de los “alacranes peligrosos” en la República Mexicana. Boletín del Instituto de Higiene, 2, 321–330.
Kharouba, H. M., Lwethwaite, J. M. M., Guralnick, R., Kerr, J. T., & Vellend, M. (2019). Using insect natural history collections to study global change impacts: challenges and opportunities. Philosophical Transactions B., 374, 20170405. http://dx.doi.org/10.1098/rstb.2017.0405
McLean, B. S., Bell, K. C., Dunnnum, J. L., Abrahamson, B., Colella, J. P., Deardorff, E. R. et al. (2016). Natural history collections-based research: progress, promise, and best practices. Journal of Mammalogy, 97, 287–297. https://doi.org/10.1093/jmammal/gyv178
McWest, K. J., Valois, Z. J., & Sissom, W. D. (2017). Scorpions (Arachnida) of the high plains and adjacent canyonlands of northwestern Texas. Texas Journal of Science, 67, 3–38.
Meier, R., & Dikow, T. (2004). Significance of specimen databases from taxonomic revisions for estimating and mapping the global species diversity of invertebrates and repatriating reliable specimen data. Conservation Biology, 18, 478–488.
Miller, S. E., Barrow, L. N., Ehlman, S. M., Goodheart, J. A., Greiman, S. E., Lutz, H. L. et al. (2020). Building Natural History Collections for the Twenty-First Century and beyond. Bioscience, 70, 674–687. https://doi.org/10.1093/biosci/biaa069
Morrone, J. J., Escalante, T., & Rodríguez-Tapia, G. (2017). Mexican biogeographic provinces: Map and shapefiles. Zootaxa, 4277, 277–279. https://doi.org/10.11646/zootaxa.4277.2.8
Oksanen, J., Simpson, G. L., Guillaume-Blancjet, F., Kindt, R., Legendre, P., Minchin, P. R. et al. (2019). ‘Vegan’ Community Ecology Package. R package version 2.6-4. Accessed November 9th, 2022: https://github.com/vegan devs/vegan
Petersen, F. T., & Meier, R. (2003). Testing species-richness estimation methods on single-sample collection data using the Danish Diptera. Biodiversity and Conservation, 12, 667–686. https://doi.org/10.1023/A:1022495610021
Petersen, F. T., Meier, R., & Larsen, M. N. (2003). Testing species richness estimation methods using museum label data on the Danish Asilidae. Biodiversity and Conservation, 12, 687–701. https://doi.org/10.1023/A:1022464710930
Polis, G. A. (1990). The biology of scorpions. Standford, California: Standford University Press.
Ponce-Saavedra, J., & Francke, O. F. (2004). Una nueva especie de alacrán del género Centruroides Marx (1890) (Scorpiones, Buthidae) de la depresión del Balsas, México. Acta Zoológica Mexicana (nueva serie), 20, 221–232. https://doi.org/10.21829/azm.2004.2022340
Ponce-Saavedra, J., & Francke, O. F. (2013a). Clave para la identificación de especies de alacranes del género Centruroides Marx, 1890 (Scorpiones: Buthidae) en el Centro Occidente de México. Biológicas, 15, 52–62.
Ponce-Saavedra, J., & Francke, O. F. (2013b). Actualización taxonómica sobre alacranes del Centro Occidente de México. Dugesiana, 20, 73–79.
Ponce-Saavedra, J., & Francke, O. F. (2019). Una nueva especie del género Centruroides (Scorpiones: Buthidae) del noroeste de México. Revista Mexicana de Biodiversidad, 90, e902660. https://doi.org/10.22201/ib.20078706e.2019.90.2660
Ponce-Saaveedra, J., Francke, O. F., Cano-Camacho, H., & Hernández-Calderón, E. (2009). Evidencias morfológicas y moleculares que validan como especie a Centruroides tecomanus (Scorpiones, Buthidae). Revista Mexicana de Biodiversidad, 80, 71–84. http://dx.doi.org/10.22201/ib.20078706e.2009.001.585
Ponce-Saavedra, J., Francke, O. F., & Quijano-Ravell, A. F. (2009). Nuevos registros y distribución actualizada de Diplocentrus zacatecanus Hoffmann, 1931 (Scorpiones: Diplocentridae). Entomología Mexicana, 8, 57–60.
Ponce-Saavedra, J., Francke, O. F., Quijano-Ravell, A. F., & Cortés-Santillán, R. (2016). Alacranes (Arachnida: Scorpiones) de importancia para la salud pública en México. Folia Entomológica Mexicana (nueva serie), 2, 45–70.
Ponce-Saavedra, J., Linares-Guillén, J. W., & Quijano-Ravell, A. F. (2022). Una nueva especie de alacrán del género Centruroides Marx (Scorpiones: Buthidae) de la costa Noroeste de México. Acta Zoológica Mexicana (nueva serie), 38, 1–24. https://doi.org/10.21829/azm.2022.3812517
Prendini, L. (2001). Substratum specialization and speciation in southern African scorpions: the effect hypothesis revisited. In V. Fet, & P. A. Selden (Eds.), Scorpions 2001: In Memoriam Gary A. Polis (pp. 113–138). Plymouth, Devon: British Arachnological Society.
Quijano-Ravell, A. F., de Armas, L. F., Francke, O. F., & Ponce-Saavedra, J. (2019). A new species of the genus Centruroides Marx (Scorpiones, Buthidae) from western Michoacán state, México using molecular and morphological evidence. Zookeys, 859, 31–48. https://doi.org/10.3897/zookeys.859.33069
Quijano-Ravell, A. F., & Ponce-Saavedra, J. (2016). A new species of scorpion of the genus Centruroides (Scorpiones: Buthidae) from the state of Michoacán, México. Revista Mexicana de Biodiversidad, 87, 49–61. https://doi.org/10. 1016/j.rmb.2016.01.022
Reyes-Moya, A. G., Mejía-Zúñiga, D., Moncada-Hernández, L. J., Flores-Mendoza, F. J., Saldaña-Alcocer, J. A., González-Acosta, C. et al. (2021). First Report of Centruroides balsasensis in Northern Mexico. Southwestern Entomologist, 46, 275–278. https://doi.org/10.3958/059.046.0129
Rohwer, V. G., Rohwer, Y., & Dillman, C. B. (2022). Declining growth of natural history collections fails future generations. Plos Biology, 20, e3001613. https://doi.org/10.1371/journal.pbio.3001613
Salvador, R. B., & Cunha, C. M. (2020). Natural history collections and the future legacy of ecological research. Oecologia, 192, 641–646. https://doi.org/10.1007/s00442-020-04620-0
Sandoval-Ortega, M. H., Siqueiros-Delgado, M. E., Sosa-Ramírez, J., & Cerros-Tlatilpa, R. (2017). Amaranthaceae (Caryophyllales) richness and distribution in the state of Aguascalientes, Mexico. Botanical Sciences, 95, 203–220. https://doi.org/10.17129/botsci.909
Santibáñez-López, C. E., González-Santillán, E., Monod, L., & Sharma, P. P. (2019). Phylogenomics facilitates stable scorpion systematics: reassessing the relationships of Vaejovidae and a new higher-level classification of Scorpiones (Arachnida). Molecular Phylogenetics and Evolution, 135, 22–30. https://doi.org/10.1016/j.ympev.2019.02.021
Santibáñez-, López, C. E., & Francke, O. F. (2013). Redescription of Diplocentrus zacatecanus (Scorpiones: Diplocentridae) and limitations of the hemispermatophore as a diagnostic trait for genus Diplocentrus. The Journal of Arachnology, 41, 1–10. https://doi.org/10.1636/Ha12-65.1
Santibáñez-López, C. E., Francke, O. F., Ureta, C., & Possani, L. D. (2015). Scorpions from Mexico: from species diversity to venom complexity. Toxins, 8, 2. https://doi.org/10.3390/toxins8010002
Santibáñez-López, C. E., & Sissom, W. D. (2010). A new species of the Vaejovis eusthenura group in Oaxaca, Mexico (Scorpiones: Vaejovidae). Zootaxa, 2493, 49–58. https://doi.org/10.11646/zootaxa.2493.1.4
Shaffer, H. B., Fisher, R. N., & Davidson, C. (1998). The role of natural history collections in documenting species declines. Trends in Ecology & Evolution, 13, 27–30. https://doi.org/10.1016/S0169-5347(97)01177-4
Sigala-Rodríguez, J. J., & Greene, H. W. (2009). Landscape change and conservation priorities: Mexican herpetofaunal perspectives at local and regional scales. Revista Mexicana de Biodiversidad,80, 231–240. https://doi.org/10.22201/ib.20078706e.2009.001.599
Siqueiros-Delgado, M. E., Rodríguez-Avalos, J. A., Martínez-Ramírez, J., Sierra-Muñoz, J. C., & García-Regalado, G. (2017). Vegetación del estado de Aguascalientes. Aguascalientes: Universidad Autónoma de Aguascalientes.
Sissom, W. D. (1990). Systematics, biogeography and paleontology. In G. A. Polis (Ed.), The biology of scorpions (pp. 31–80). Stanford, CA: Standford University Press.
Sissom, W. D. (2000). Family Vaejovidae. In V. Fet, W. D. Sissom, G. Lowe, & M. E. Braunwalder (Eds.), Catalog of the scorpions of the World (1758-1998) (pp. 503–553). New York: The New York Entomological Society.
Sissom, W. D., & Francke, O. F. (1981). Scorpions of the genus Paruroctonus from New Mexico and Texas (Scorpiones, Vaejovidae). Journal of Arachnology, 9, 93–108.
Sissom, W. D., & Francke, O. F. (1985). Redescription of some poorly known species of the nitidulus group of the genus Vaejovis (Scorpiones, Vaejovidae). Journal of Arachnology, 13, 243–266.
Sissom, W. D., & González-Santillán, E. (2004). A new species and new records for the Vaejovis nitidulus group, with a key to the mexican species (Scorpiones, Vaejovidae). Texas Memorial Museum Speleological Monographs, 6, 1–8.
Sissom, W. D., & Hendrixson, B. E. (2005). A new species of Vaejovis (Scorpiones: Vaejovidae) from Coahuila and Nuevo León, and a key to the vaejovid species from northwestern and north-central Mexico. Zootaxa, 1088, 33–43. https://doi.org/10.11646/zootaxa.1088.1.5
Soberón-Mainero, J., Llorente Bousquets, J., & Oñate, L. (2000). The use of specimen-label databases for conservation purposes: An example using Mexican Papilionid and Pierid butterflies. Biodiversity and Conservation, 9, 1441–1466. https://doi.org/10.1023/A:1008987010383
Stahnke, H. L. (1971). Some observations of the genus Centruroides Marx (Buthidae, Scorpionida) and C. sculpturatus Ewing. Entomological News, 82, 281–307.
Stockwell, S. A. (1986). The scorpions of Texas (Arachnida, Scorpiones) (Master Thesis). Texas Tech University. Retrieved in: September 5th, 2023 from http://hdl.handle.net/2346/22278
Thompson, C. W., Phelps, K. L., Allard, M. W., Cook, J. A., Dunnum, J. L., Ferguson, A. W. et al. (2021). Preserve a voucher specimen! The critical need for integrating Natural History Collections in infectious disease studies. mBio, 12, e02698. https://doi.org/10.1128/mBio.02698-20
Williams, S. (1968). Scorpions from Northern Mexico: five new species of Vejovis from Coahuila, Mexico. Occasional Papers of the California Academy of Sciences, 68, 1–24.
Williams, S. (1970). A redescription of the scorpion Vejovis bilineatus Pocock (Scorpionida: Vejovidae). The Pan Pacific Entomologist, 46, 238–241.
Williams, S. (1980). Scorpions of Baja California, Mexico and adjacent islands. Occasional Papers of the California Academy of Sciences, 135, 1–127.
Yahia, N., & Sissom, W. D. (1996). Studies on the systematics and distribution of the scorpion Vaejovis bilineatus Pocock (Vaejovidae). The Journal of Arachnology, 24, 81–88.
Fausto Roberto Méndez-de la Cruz a, *, Rodrigo Macip-Ríos b y Gabriel Barrios-Quiroz c
a Universidad Nacional Autónoma de México, Instituto de Biología, Departamento de Zoología, Apartado Postal 70-153, 04510 Ciudad de México, México
b Universidad Nacional Autónoma de México, Escuela Nacional de Estudios Superiores, Unidad Morelia, Antigua Carretera a Pátzcuaro Núm. 8701, Col. Ex Hacienda San José La Huerta, 58190 Morelia, Michoacán, México
c Ecología y Conservación Dharma A.C., Carretera Federal Tepoztlán-Yautepec Km 7.5, 62520 Tepoztlán, Morelos, México
*Autor para correspondencia: faustomendez6@gmail.com (F.R. Méndez-de la Cruz)
Recibido: 11 octubre 2024; aceptado: 8 noviembre 2024
“De niño acompañaba a mi mamá, que daba clases en una escuela de Xochimilco y me gustaba ir al patio de la escuela que estaba junto a un bosque. Ese bosque estaba lleno de muchos animales, entre ellos chapulines, mariposas, plantas diversas y árboles enormes, me encantaba perderme en ese bosque lleno de vida”. Así comenzaba la admiración por la vida de un pionero de la herpetología en México, el Dr. Gustavo Casas Andreu.
El Dr. Casas-Andreu (Gus, como le llamábamos sus amigos más cercanos) fue una figura destacada en el campo de la herpetología, con una carrera que abarcó más de 6 décadas. Nacido en la Ciudad de México el 15 de mayo (día del maestro) de 1943, realizó sus estudios de educación básica y media superior en la Escuela Militarizada México. Desde temprana edad mostró una pasión por los reptiles y anfibios, lo que lo llevó a estudiar Biología en la Facultad de Ciencias de la Universidad Nacional Autónoma de México, donde sería alumno de ilustres personajes de la biología en México como el Maestro Rafael Martín del Campo y Sánchez y el Dr. Eucario López Ochoterena. Su interés por los anfibios y reptiles, particularmente por los cocodrilos, un grupo de reptiles que lo cautivó por su complejidad y su importancia ecológica, lo motivaron para realizar investigaciones pioneras que ampliaron nuestro entendimiento sobre su comportamiento, ecología y conservación.
A lo largo de su vida, Gustavo Casas comenzó su acercamiento con los reptiles trabajando como Investigador y jefe de la sección de herpetología en estudios con anfibios y reptiles acuáticos, del entonces Instituto Nacional de Investigaciones Biológico Pesqueras, perteneciente, en su momento, a la Secretaría de Industria y Comercio (1964-1971). Su tesis de licenciatura la desarrolló con las tortugas dulceacuícolas de México bajo la asesoría del Maestro Rafael Martín del Campo y Sánchez, misma que defendió en 1967. Siguiendo con su interés en la investigación en los reptiles, junto con Manuel Guzmán hicieron una recopilación del estatus de los cocodrilos de México, la cual se publicó como un número del Boletín del Instituto Nacional del Instituto Biológico Pesquero en 1970. Obtuvo la Maestría en Ciencias por la Facultad de Ciencias en el año 1973, por examen general de conocimientos.
Gustavo Casas ingresó como investigador al Instituto de Biología en 1974. Aquí empezó el trabajo curatorial de la colección de anfibios y reptiles. Posteriormente, realizó su tesis doctoral con el tema “Anfibios y reptiles de la costa suroeste del estado de Jalisco con aspectos de ecología y biogeografía”, la cual defendió en 1982, bajo la asesoría del Dr. Ismael Ferrusquía Villafranca. Como parte de su labor como curador de la Colección de Anfibios y Reptiles, en 1982 comienza un proyecto para representar la herpetofauna del país en lo que sería la Colección Nacional de Anfibios y Reptiles, y encabeza un grupo que colecta por todo el país. En esos momentos, la colección tenía representado menos de 5.6% de la herpetofauna del país. El proyecto que inició Gustavo Casas terminó en 1988, dando como resultado una representación aproximada de 60% de la herpetofauna de México en la colección del Instituto de Biología, convirtiéndose en una de las colecciones más importantes de México y del mundo.
Además de su trabajo como curador y biólogo de campo, Gustavo Casas fue un profesor dedicado y un mentor generoso en varias universidades de México. Su entusiasmo por la ciencia y su habilidad para transmitir conocimientos inspiraron a numerosas generaciones de herpetólogos y biólogos de la Universidad Nacional Autónoma de México, Universidad Autónoma Metro- politana y Universidad Autónoma del Estado de México. Sus clases y conferencias eran conocidas por su claridad, profundidad y el fervor con que abordaba cada tema, dejando una marca duradera en aquellos que tuvimos el privilegio de aprender de él. Dirigió 34 de tesis de licenciatura, 7 de maestría y 4 de doctorado. Entre los alumnos que desarrollaron tesis en diferentes niveles se encuentran: Oscar Flores Villela, Miriam Benabib Nisembaum, Aurelio Ramírez Bautista, Héctor Gadsden Esparza, Fausto R. Méndez de la Cruz, Elizabeth Arévalo Marín, Dolores Huacuz Elías, Rodrigo Macip Ríos, Anahí Guizado Rodríguez y Gabriel Barrios Quiroz, entre muchos otros, dejando un legado académico que ha trascendido y sigue dando frutos en generaciones presentes de herpetólogos.
Publicó 115 artículos de investigación, 40 de divulgación científica y 9 libros, que abarcan diversos temas, desde claves de identificación, herpetofaunas regionales, historia de la herpetología, etnoherpetología, biología de la reproducción y conservación de anfibios y reptiles. Entre los libros publicados se encuentran “Estado de las investigaciones sobre cocodrilos mexicanos”, “Anfibios y Reptiles de México”, “Nombres estándar en español, en inglés y nombres científicos de los anfibios y reptiles de México”, “Cómo hacer una colección de anfibios y reptiles”, “Sinopsis de datos biológicos y ecológicos del cocodrilo de pantano Crocodylus moreletii”, y otros. Su obra puede consultarse en el siguiente enlace: https://scholar.google.com/citations?user=jGqOlAgAAAAJ&hl=es
Gustavo Casas también fue un defensor incansable de la protección del hábitat natural de los cocodrilos y trabajó activamente con organizaciones nacionales e internacionales para promover políticas de conservación eficaces. Fue parte del Grupo de Especialistas de Cocodrilos de la IUCN, de grupos de asesores de la Conabio, además fue miembro fundador de varias sociedades científicas en México, como la Sociedad Mexicana de Zoología (SMZ), donde fue el primer presidente, de la Sociedad de Historia Natural, la Sociedad Herpetológica Mexicana (SHM), la Asociación para la Investigación y Conservación de Anfibios y Reptiles (AICAR), y más recientemente, del Colegio de Biólogos. Recibió homenajes (en vida y posmortem) de la SMZ, de la Sociedad Latinoamericana de Herpetología (en vida), de la SHM (en vida y se designó como miembro honorario) y de AICAR (en vida y posmortem, además de ser designado como miembro honorario).
Gustavo Casas fue un agradable conversador, cuando los temas que se tocaban eran diversos, desde cuestiones académicas hasta humanas y cotidianas, siempre con la oportunidad de aprender y reflexionar. Imposible olvidar las gratas charlas de sobremesa que se prolongaban hasta muy noche. Es importante mencionar que el Congreso de Herpetología de 1987, en donde participó como organizador local y reunió a las 2 sociedades de herpetólogos estado- unidenses más importantes (Herpetologists’ League y la Society for the Study of Amphibians and Reptiles) y al Comité Herpetológico Mexicano (precursor de la Sociedad Herpetológica Mexicana), sigue siendo recordada por la gran camaradería que se vivió en el Hotel Mocambo, sede del congreso. Después de una larga vida académica productiva, se jubiló el 31 de octubre de 2017 de la UNAM, que fue su alma mater e institución académica principal.
Gustavo Casas, el profesor, académico, mentor y amigo, falleció el 1 de septiembre de 2024 a los 81 años de edad. Su memoria y legado viven en el impacto duradero que ha tenido en el estudio de los anfibios y reptiles de México, así como en el corazón de todos aquellos que tuvimos el privilegio de conocerlo y que hoy continuamos con la eterna tradición de generar nuevo conocimiento, difundirlo y enseñar lo aprendido.
Le sobreviven su esposa Xóchitl y sus hijos, Gustavo, Adrián, Gustavo Antonio y Sara Sofia, además de una legión de colegas, estudiantes y amigos que lo apreciamos profundamente.
Meghan I. Zolá-Rodríguez a, Mariana Cuautle b, *, Marco Daniel Rodríguez-Flores c, Citlalli Castillo-Guevara b
a Akumal Monkey Sanctuary & Rescued Animals, Camino a Uxuxubi s/n Predio Santa Pilar Lote 16, 77776 Akumal, Quintana Roo, Mexico
b Universidad Autónoma de Tlaxcala, Centro de Investigación en Ciencias Biológicas, Km 10.5 Carretera Tlaxcala-San Martín Texmelucan, 90120 San Felipe Ixtacuixtla, Tlaxcala, Mexico
c Blue Marlin Conservation (Conservation Diver), Sunset Beach Gili Air, Gili Indah, Pemenang, North Lombok Regency, West Nusa Tenggara 83355, Indonesia
This study examines the impact of disturbance on the food preferences and dominance of an ant community in a temperate ecosystem in Mexico. The study focused on 2 types of vegetation: native oak forest and induced grassland (disturbed vegetation). Observations were conducted to record the food elements carried by ants to their nests. These data were analyzed using x2 tests. Tuna and honey baits were placed near the nests to record the presence of ants in 5-minute periods. We used a binomial model to determine whether the probability of finding an ant foraging at the baits was affected by vegetation type, bait type, and/or ant species. Additional baits were used to determine the ant dominance indices. T-tests and ANOVAs were used to compare dominance indices between vegetation types, baits, and ant species. No significant differences were observed in food preferences between vegetations. However, some species showed a preference for honey (i.e., carbohydrates), which could be limited in ground-level environments. Ants showed a submissive behavior in both vegetation types. This research shows that ants could optimize their nutrient intake, enabling them to survive efficiently even when facing disturbances, instead of increasing dominance.
Impacto del disturbio en las preferencias alimentarias y dominancia de las hormigas (Hymenoptera: Formicidae) en un bosque templado de México
Resumen
Este estudio examina el impacto del disturbio en las preferencias alimentarias y dominancia de una comunidad de hormigas en un ecosistema templado en México, en bosque de encino nativo y pastizal inducido (vegetación perturbada). Se registraron los alimentos transportados por las hormigas a sus nidos. Estos datos fueron analizados utilizando pruebas de x2. Se colocaron cebos de atún y miel cerca de los nidos para registrar la presencia de hormigas. Utilizamos un modelo binomial para determinar si la probabilidad de encontrar una hormiga en los cebos se veía afectada por la vegetación, cebo o especie de hormiga. Los índices de dominancia se determinaron usando cebos. Se emplearon pruebas t y Anova para comparar los índices de dominancia entre tipos de vegetación, cebos y especies de hormigas. No hubo diferencias significativas en las preferencias alimentarias entre tipos de vegetación, pero algunas especies mostraron una preferencia por la miel (carbohidratos), que podría ser un recurso limitado a nivel del suelo. Las hormigas mostraron un comportamiento sumiso en ambos tipos de vegetación. Esta investigación muestra que las hormigas podrían optimizar su ingesta de nutrientes, permitiéndoles sobrevivir bajo condiciones de disturbio, en lugar de aumentar su dominancia.
Palabras clave:Nidos de hormigas; Índice de dominancia; Hábitos alimenticios; Hipótesis de compensación; Carbohidratos; Proteínas
Introduction
Land use change stands as one of the primary factors contributing to global change and its adverse effects on biodiversity (Ellis et al., 2010; Foley et al., 2005; Sala et al., 2000). Land use change has reduced biodiversity through the loss, modification, and fragmentation of habitats; degradation of soil and water; and overexploitation of native species (Foley et al., 2005), and its effects depend strongly on the type, severity, frequency and timing of disturbance (Foley et al., 2005; White & Jentsch, 2001). Ants are one of the most dominant insects both ecologically and numerically (Rico-Gray & Oliveira, 2007; Schultheiss et al., 2022; Toro et al., 2012) that participate in different ecological processes —e.g., nutrient recycling, soil formation, decomposition, seed dispersion (Toro et al., 2012). Ants are model organisms to study the effect of disturbance because they respond to environmental change (Agosti et al., 2000; Andersen, 2000). It is often observed that disturbances favor behaviorally dominant ants, including invasive species. Vonshak and Gordon (2015), observed that native ant richness was highest in natural habitats, and alien species richness was highest in urban habitats, along an urban-rural gradient in the San Francisco Bay area. Nevertheless, the specific effect will depend on factors like the type of disturbance, including fires, floodings, or even treefall gaps (Cerdá et al., 2013). Hoffman and Andersen (2003) studied the response of ant functional groups to disturbance finding that the dominant Dolichoderinae and “hot climate specialists” tend to be favoured by low levels of disturbance. The opportunist and generalized Myrmicinae have wide habitat tolerances but are sensitive to competitive interactions, while “cryptic species” and “specialist predators” are highly sensitive to disturbance.
Feeding habits and foraging strategies represent vital life history traits among ants, playing a significant role in their ecological dynamics. These traits are contingent upon the availability of resources within their respective habitats (Andersen, 2000; Davidson, 2005), and the ensuing competition for those resources (Arnan et al., 2012). The feeding habits of ants play a pivotal role in determining their ecological function within the ecosystem (Spotti et al., 2015). However, despite their significance, the food habits and preferences of ants remain relatively understudied and represent one of the least understood aspects of their biology (Houdria et al., 2015).
The effects of disturbance (e.g., land use change) on ant feeding habits (especially foraging strategies) have not been studied in depth (Castillo-Guevara et al., 2019; Hernández-Flores et al., 2016; Radnan et al., 2018), and the way ants respond to habitat complexity can provide clues as to how ants could respond to disturbance. When the external disturbing factors are of high intensity (natural-fires or anthropogenic-deforestation), the disturbances can initiate a directional regression manifested as gradual or rapid simplification of the horizontal and vertical structure of a community, leading to the replacement of complex communities by a simpler one (Łaska, 2001). The level of habitat complexity can influence ant foraging patterns. For instance, higher complexity may decrease interspecific interactions and ant recruitment or minimize the trade-off between resource discovery and dominance (Parr & Gibb, 2012).
Examining the effect of soil surface complexity on food exploitation in the context of change from grassland to shrubland in Australia, Radnan et al. (2018) discovered that substrate complexity (wood debris, leaf litter, or no substrate) influenced the discovery time, ant size, and monopolization index of tuna and honey baits within testing arenas. However, at a larger scale of vegetation type, the effect was not observed. Similarly, Castillo-Guevara et al. (2019) found that the dominance level was similar in natural oak vegetation in comparison to an agricultural area in a temperate community; however, ant foraging strategies differed between the 2 communities.
Competition has been regarded as the primary factor influencing the structure of ant communities (Cerdá et al., 2013). Through the use of aggressive strategies, ants exert influence on the spatial distribution, abundance, and behavior of other ants. These strategies encompass a range of tactics, including the deployment of repellent chemicals and the establishment of territories (Cerdá et al., 2013). Moreover, ants can establish interspecific dominance hierarchies primarily based on variations in food collection behavior and aggressiveness. While there are various proposals for categorizing such hierarchies, the classification proposed by Vepsäläinen and Pisarski (1982) and Savolainen et al. (1989), as described by Cerdá et al. (2013), is considered the most well-defined hierarchical system from an ecological perspective. This classification system is founded on the aggressive behavior of ants and its impact on other ant species, and includes 3 categories: the dominant, subdominant and subordinate category. Dominant species exhibit highly aggressive behavior, exhibit numerical predominance over other species, fiercely defend their territories, and establish mutual exclusivity within their ecological communities. Subdominant species, while not actively defending territories, display a remarkable propensity for aggressively safeguarding their food resources (Cerdá et al., 2013). Lastly, subordinate species, characterized by small colonies devoid of recruitment systems, employ strategies to avoid physical confrontations with other colonies and species. Nonetheless, they exhibit a strong commitment to defending their nests against potential threats (Cerdá et al., 2013). Different foraging strategies, such as the subordinate species’ ability to discover resources before dominant species (dominance-discovery trade-off, Fellers, 1987) or their capacity to forage across a broader temperature range compared to dominant species —dominance-thermal tolerance trade-off (Fellers, 1989), can contribute to the coexistence of ants within a community.
The present study focuses on the analysis of ant feeding habits and dominance hierarchy in response to land use change within a temperate ecosystem located in central Mexico. A habitat with the native oak forest vegetation (complex habitat), was compared to a nearby area where the land use had been altered to induced grassland (simplified habitat). The study hypothesized: i) it is expected that in the oak forest, food items transported to the nest will be more varied than in the induced grassland. This variation at the species level is also anticipated due to the change in land use. The conversion from a complex habitat (oak forest) to a simplified habitat (induced grassland) will likely provide fewer resources variety for the ants; ii) it is expected that as a result of the disturbance in the induced grassland, ants will be more generalized in low heterogeneous habitats due to the dominance of generalist ant species. Additionally, the arrival times at the baits will be shorter due to the absence of leaf litter; iii) a lower dominance index is expected in the induced grassland than in the oak forest, due to the presence of subdominant species and the modification of the dominance hierarchy system by the land use change.
Materials and methods
The study was conducted within “Flor del Bosque” State Park, located in the municipality of Amozoc de Mota, in the state of Puebla. The coordinates of this protected reserve are 19°00’00”-19°01’50” N, 98°20’35”-98°20’53” W. The State Park encompasses an area of 664.03 hectares, characterized by altitudes ranging from 2,225 to 2,400 m asl. The annual average temperature in this region fluctuates between 14 °C and 16 °C, with the majority of rainfall occurring during the summer months, contributing to an average annual precipitation of 750 to 950 mm. It is important to note that the park experiences a distinct dry season lasting approximately 6 months, from November to April, as reported by Costes et al. (2006). The native vegetation of the reserve primarily consists of oak forest [Quercus castanea (Née), Q. laurina (Bonpl.), Q. laeta (Liebm.) (Fagaceae)]. However, human disturbances have led to the presence of induced grassland areas and, to a lesser extent, eucalyptus plantations [Eucalyptus spp. L´Hér) (Myrtaceae)] within the park, as documented by Costes et al. (2006). Given that the disturbed vegetation within the reserve primarily consisted of induced grassland, our research aimed to establish a meaningful comparison between native and altered vegetation.
Ant communities were surveyed once a month during specific periods (April, August and October 2015, and January to March 2016). The survey methodology involved the establishment of 6 transect plots (400 m × 20 m), with 3 plots located in the oak forest and 3 in the induced grassland. The spatial distribution of these transects can be observed in Figure 1. To locate ant nests, the transects were traversed, and various substrates such as leaf litter, stones, trunks, and branches were lifted and examined. Additionally, a total of 5 tuna baits and 5 honey baits were placed along the transects at 10 m intervals to attract ants and to follow them to locate their nest. The nests found during the survey were georeferenced for accurate spatial documentation. A 5-minute observation period was designated for each nest, wherein all food items transported by the ants to their nests were recorded. These observations were conducted between 9:00 a.m. and 3:00 p.m. on the sampling days. Each recorded item was subsequently categorized into one of the following groups: 1) plant elements, encompassing any component of plants except for seeds, 2) seeds, and 3) arthropods. After each observation period, 2 bait samples, enclosed within Petri dishes, were positioned in close proximity to the nests (approximately 10 cm), maintaining a distance of approximately 5 centimeters from each other. Various studies exploring the feeding habits, preferences, and foraging strategies of ants have employed diverse bait types. Typically, these baits consist of carbohydrates such as honey and other sources representing proteins such as tuna (Houdria et al., 2015; Lynch et al., 1980; Spotti et al., 2015; Trigos-Peral et al., 2016). The bait materials employed in the study consisted of honey and tuna, which were consistently provided in a standardized amount of one tablespoon, equivalent to approximately 5 grams. To quantify the number of individual ants on each type of food resource, we placed baits and observed them for 5 min. Ants responded very quickly to the baits; therefore, the observation time was limited to 5 min. Within this duration, the number of individuals was recorded for each bait type. After the observation periods, 1 to 3 ants were collected from each nest using a vacuum cleaner or tweezers and then preserved in Eppendorf tubes containing 70% ethanol. In the laboratory, the ants were separated, mounted, and identified to the genus level using the key by Mackay and Mackay (1989). In certain instances, the species identification was feasible by comparing the collected specimens with those present in the Entomological Collection of the Universidad de las Américas Puebla (UDLAP).
To analyze the food preferences of the ant community, we considered 3 factors. First, we determined whether the number of foragers carrying plants, seeds, or arthropods to the nest differed between the whole ant communities of each vegetation type or among ant species. We used the appropriate contingency tables and chi-square tests for such comparisons. Second, we determined whether the presence of foragers at each bait during each minute of the 5-minute period was influenced by vegetation type, bait type (honey or tuna), ant species or interactions among these factors. We used a binomial model to evaluate this response variable, with “ant presence” coded as 1 and “absence” as 0. To select the most relevant explanatory variables, we employed a stepwise forward approach. We began with the simplest model and successively added each response variable. The significance of adding each variable was assessed using an x2 test, comparing the previous model with the new model. If a variable was found to be statistically significant, it was retained in the model. Otherwise, it was removed, and we proceeded with the next explanatory variable. This stepwise procedure allowed us to build the final model with the most significant factors explaining the presence of foragers at each bait. No overdispersion was detected in the selected model. Post-hoc analyses were conducted when significant differences were detected. The statistical analysis of data was performed using R software (R Core Team, 2022).
We evaluated the dominance hierarchy of the ants in each vegetation type (oak forest and induced grassland), ant species, and bait types using the same transects as for the detection of the nests (Fig. 1), during October 2015 and January, February and March (2016). At each transect, 9 sampling points were established on the ground, spaced 10 m apart. Each sampling point consisted of a pair of Petri dishes with baits: one with honey and one with tuna, placed less than 5 cm apart. This resulted in a total of 540 baits (5 replicates × 6 transects × 9 sampling points × 2 baits; 2 samplings in February). These types of baits have been widely used for ant dominance hierarchy studies (Dáttilo et al., 2014; Parr & Gibb, 2012; Trigos-Peral et al., 2016).
For the first 3 sets of bait, we recorded the arrival times of the ants during a one-hour observation period. Most of the ant species were identified in the field. For the ants that were not identified, a few individuals (2 to 3 specimens) were collected. In the case of the remaining 6 sets of bait, they were filled with water. Ants that fell onto the Petri dish after 2 h were collected. The presence of water did not deter the ants from visiting, but it allowed us to determine which ants had been attracted to the baits. The baits were placed and retrieved from different transects in the field between 9:00 a.m. and 5:00 p.m. The order of the transects was changed on different sampling days to mitigate the potential impact of the time of day. Ant specimens collected from the baits were preserved in 70% ethanol and transported to the laboratory for further identification.
Figure 1. Localization of the transects used in the study zone (mapped by Luna F.).
We chose numerical dominance to assess the dominance hierarchy of the ants —i.e., ordering of ant species based on their numerical or behavioral dominance by vegetation types (Andersen, 1992; Cerdá et al., 1997; Stuble et al., 2017), ant species and bait type. As numerical and behavioral dominance are highly correlated, this method has been well-established and documented in the ant literature (Dáttilo et al., 2014; Dejean & Corbara, 2003; Parr, 2008; Parr & Gibb, 2012; Santini et al., 2007). This method indicates which species are consistently present at the baits, and which ones dominate the baits numerically and thus monopolize them (Parr, 2008). We represented numerical dominance using the numerical dominance index (DI) for each morphospecies calculated by the formula: DI = (Di)/(Di + Si), where, Di is the number of baits monopolized by the species of ant i, and Si is the number of baits that the species of ant i used but did not monopolize. Baits were considered to be monopolized when more than 5 individuals (workers and/or soldiers) of the same morphospecies were using the resource without the presence of other morphospecies. This measure (more than 5 individuals) takes into consideration that in temperate climates, ants are less abundant, and recruitment is considered weaker than in tropical environments where the index has been widely more (Santini et al., 2007). Therefore, dominant morphospecies are those that find and monopolize a larger proportion of the food resources in a given environment. The value of the index ranges from 0 (completely submissive species) to 1 (totally dominant species) and is similar to the “monopolization index” used in other studies (Dáttilo et al., 2014; Fellers, 1987; Parr & Gibb, 2012; Santini, et al., 2007). In this study, ant species with a DI lower than 0.5 were classified as submissive.
The arrival times of the ants were compared using survival curves using the survival package of the R Software program. The one-hour and 2-hour baits were used to calculate the ID of the ant species. To compare the ID between vegetation and bait types, t-tests were performed. To compare the DI between ant species, a one-way ANOVA test was performed after applying a square root transformation to meet the normality requirements. These analyses were performed using the program STATVIEW 5.0 (Abacus Concepts Inc., 1996).
Results
Fourteen morphospecies of ants were recorded in this study belonging to 11 ant genera (Table 1). For the analysis of the results from the nests and the baits placed near them, 2 morphospecies of Pheidole were identified. However, due to the low number of records for each morphospecies across different vegetation types, Pheidole sp. 1 and Pheidole sp. 2 were combined for the analysis. In the oak forest, 2 out of 19 records corresponded to Pheidole sp. 1, and in the grassland, 4 out of 15 records corresponded to Pheidole sp. 2. Since Pheidole species often share similar feeding habits and are functionally similar (Agosti, 2000; Andersen, 2000), these 2 morphospecies were grouped to increase statistical power, and the analysis was conducted at the genus level. In contrast, another Pheidole species, Pheidole sp. 3, was recorded in the baits used to determine the DI and was analyzed independently due to its different context of occurrence. The rest of the analyses were conducted at the species level.
In the case of the nests, we found 9 morphospecies distributed among 34 nests, 19 of these were located in the oak forest and 18 in the induced grassland (Table 2). No significant differences were observed in the types of food elements those individual ants transported to their nest when comparing different vegetation types (x2 = 2.13, df = 2, p = 0.34). In the oak forest considering all ant species, there were no significant differences in the number of individuals carrying elements from different categories (x2 = 0.03, df = 1, p = 0.86) (Fig. 2). Of the genera of ants observed carrying food elements to their nests, only 2 genera were observed with a single type of food resource: Prenolepis imparis (Say) only carried arthropods and Dorymyrmex insanus (Buckley) only seeds.
Table 1
List of ant species recorded in this study in “Flor del Bosque” State Park in Puebla, Mexico.
Conversely, ants of the genus Pheidole spp. carried a greater quantity of plant elements compared to the other categories (x2 = 10.4, df = 2, p = 0.006); only 2 of these individuals were observed carrying arthropods, and none were recorded carrying seeds. No significant differences were found for D. insanus (x2 = 2, df = 2, p = 0.37), P. barbatus (x2 = 1.6, df = 2, p = 0.450), nor P. imparis (x2 = 4, df = 2, p = 0.135) among the 3 food categories. Only P. barbatus carried all 3 types of food (Fig. 2).
Considering all ant species, there were no significant differences in the number of individuals carrying different food elements in the induced grassland (x2 = 0.66, df = 1, p = 0.41, Fig. 2). Among the observed ant species that transported food types to their nests, P.barbatus was found to carry both plant elements and seeds. Additionally, Dorymyrmex insanus and Pheidole spp. were observed carrying food from all 3 categories (Fig. 2). Pheidole spp. (x2 = 10.33, df = 2, p = 0.006) and P. barbatus (x2 < 30.33, df = 2, p < 0.001), carried a higher number of plant elements. For D. insanus no significant differences were found in the number of elements of each type (x2 < 3.77, df = 2, p = 0.15) (Fig. 2).
Figure 2. Number of individuals of the different ant species recorded carrying any food resource to their nest. DORY: Dorymyrmex insanus, PHEI: Pheidole spp., POGO: Pogonomyrmex barbatus, PREN: Prenolepis impairs.
In the induced grassland, 5 ant species were attracted to both types of baits, and 1 species was found in the tuna baits. In the oak area, 5 ant species were observed in both types of baits, and 1 species was attracted to the honey bait (Fig. 3). The probability of presence of a forager during a given minute of the observation period depended on the vegetation type (x2= 8.73, df = 1, p = 0.03), the ant species (x2= 59.64, df = 7, p < 0.001), the interaction between the ant species and the bait (x2= 57.96, df = 8, p < 0.001), and the interaction between the vegetation type, the ant species, and the bait (x2= 26.12, df = 7, p < 0.001). The Tukey contrast test for the vegetation*species*bait interaction showed (Z > 3.83, p < 0.042) that the presence of Linepithema dispertitum (Forel) on the honey bait, in the oak forest, was more likely than the presence of Pheidole spp. on either the tuna or honey bait in the oak forest, Pheidole spp. on the honey bait in the induced grassland, and P. impairs on the honey bait in the oak forest (Fig. 3). The probability of Camponothus rubrithorax (Forel) being present on the honey bait in the induced grassland, was greater than that of D. insanus in either the tuna or honey bait in the induced grassland, Pheidole spp. on either the tuna or honey bait in the oak forest, as well as its presence in the honey bait in the induced grassland and P. imparis in the honey bait in the oak forest (Fig. 3). The probability that P. barbatus was present on the honey bait in the induced grassland, was greater than the presence of Pheidole spp. in either the tuna or honey bait and P. imparis in the honey bait in the oak forest (Fig. 3). Finally, the presence of Pheidole spp. on the tuna bait was more likely than its presence on the honey bait in the induced grassland (Fig. 3).
Figure 3. Probability of finding an ant forager on the honey or tuna baits at the nest of the different ant species registered in the Oak Forest (OF) and the Induced Grassland (IG) in the 5-minute period. CAMPO: Camponotus rubrithorax, DORY: Dorymyrmex insanus, LABI: Labidus coecus, LINE: Linepithema dispertitum, MONO: Monomorium ebenium, PHEI: Pheidole spp., POGO: Pogonomyrmex barbatus, PREN: Prenolepis imparis.
Figure 4. Survival curves depicting the arrival times of ant foragers on the baits (tuna or honey) during a one-hour observation. No significant differences were found in the arrival times among ant species.
No significant differences were found in the arrival times between the vegetation types (x2 = 0.4, df = 1, p = 0.5). Moreover, no significant differences were found in the arrival times among the different ant species (x2 = 7.6, df = 7, p = 0.4) or the type of bait (x2 = 0.01, df = 1, p = 0.9; Fig. 4).
In the dominance index baits 12 ant morphospecies were recorded and different ant morphospecies were recorded in each of the vegetation types (Table 3). When comparing the average dominance index (DI) by vegetation type (mean ± SE, n; oak forest DI = 0.372 ± 0.071, 33; induced grassland DI = 0.251 ± 0.052, 44), was not statistically different (t= 1.091; df = 75; p = 0.2787), which would suggest a submissive behavior in both types of vegetation. Average dominance index by ant species indicates that M. ebenium, P. imparis and Pheidole sp. 3 behave as submissive in both vegetation types (t = 0.590, df = 20, p = 0.5617; t = -0.237, df = 10, p = 0.8171; t = -0.315, df = 11, p = 0.7590, respectively) (Table 4). It was not possible to compare the DI between vegetation types for Temnothorax sp., T. augusti, C. rubrithorax, N. austroccidua, L. dispertitum, D. insanus or P. pallidus, because they were only present in one of the vegetation types (Table 4).
The average dominance index for each ant species was low suggesting that all of them displayed submissive behaviors (F8,68 = 1.949, p = 0.06). Nylanderia austroccidua and L. dispertitum had the highest dominance indices, although it should be noted that N. austroccidua only had one record and L. dispertitum had 3 records. Additionally, Monomorium ebenium showed a tendency to behave as dominant (Table 4).
When comparing the mean dominance index by bait type, no significant differences were found (t = 1.023, df = 110, p = 0.3088; mean ± SE, n; tuna = 0.382 ± 0.060, 55; honey = 0.295 ± 0.053, 57). This indicates that ants exhibited submissive behavior in both types of bait.
According to the average dominance index per ant species in relation to the bait type, Pheidole sp. 3, P. imparis, M. ebeninum, C. rubrithorax, and D. insanus exhibited a submissive behavior in both types of baits (t = 0.888, df = 13, p = 0.3907; t= 0.988, df = 15, p = 0.3388; t = 0.189, df = 32, p = 0.8513; t = -0.918, df = 24, p = 0.3675, t = 2.390, df = 5, p = 0.0624, respectively) (Table 5) and L. dispertitum exhibited a dominant behavior in both types of baits (t = 0.421, df = 3, p = 0.7021).
Temnothorax sp. and P. pallidus were not compared statistically due to the low incidence registered; nonetheless, they presented a submissive behavior index in both types of bait. Neither T. augusti nor N. austroccidua were included in this analysis, as they were only present on the honey bait. In none of the species was there a difference in behavior between the baits.
Table 2
Number of nests found in the oak forest and the induced grassland.
Species
Oak forest
Induced grassland
Camponotus rubrithorax
0
3
Dorymyrmexinsanus
4
6
Labidus coecus
1
0
Linepithema dispertitum
2
0
Pheidole spp.
7
6
Pogonomyrmex barbatus
1
2
Prenolepis imparis
3
0
Monomorium ebenium
1
1
Discussion
This study found that certain ant species (e.g., C. rubrithorax, L. dispertitum, P. barbatus) exhibited a preference for honey within specific vegetation types when compared to the rest of the ant community. The compensation hypothesis (Davidson, 2005; Kaspari & Yanoviak, 2001) predicts that the attractiveness of a nutrient to an organism is higher the more limiting it is. It is possible that this result is related to the fact that sugar is generally less available on the ground strata than protein (Kaspari & Yanoviak, 2001; Kaspari et al., 2012).
However, when considering the overall community level, no noticeable food preferences were found between the ant communities in the oak forest and the induced grassland vegetation. This lack of preference was evident both in the items carried to their nests and the resources provided on the baits. There were no significant differences in arrival times at the baits between vegetation types. This similarity can be attributed to ants experiencing soil-level heterogeneity similarly in both oak forests and induced grasslands (see below).
The ant communities in both habitats were composed of ant species displaying submissive behavior. This characteristic could be attributed to stress factors such as low temperatures in the oak forest and disturbances in the induced grassland, which potentially reduce ant competition. In the oak forest, low temperatures may favor the presence of cold climate specialists that can forage at low temperatures without the need to display a dominant behavior. In the induced grassland, disturbances may favor the presence of generalist species that take advantage of the absence of dominant species such as the dominant Dolichoderinae (see below). This study emphasizes the significance of ant species’ response to their environment and their adaptability in dealing with disturbances.
Our findings do not provide support for vegetation-scale disparities in food preferences, first and second hypotheses, which proposed greater differences in the food items being carried to the nest in the oak forest and reduced food preferences in the induced grassland. There were no differences between vegetation types in the number of seeds, plants, or arthropods taken by the ant foragers to their nests. Similarly, there was not a preference for a specific food bait (honey or tuna) between the oak forest and induced grassland ant communities. These findings are consistent with previous studies conducted by Radnan et al. (2018) and Castillo-Guevara et al. (2019), which did not identify differences in food preferences or foraging strategies between natural and disturbed vegetation at the community level. However, our observations did reveal that certain ant species exhibited preferences for specific types of food, within particular vegetation types, in accordance with the first hypothesis and second hypothesis but at the species level, which proposed an influence of ant species on food preferences. The specific preferences of these ant species are discussed in detail below.
Table 3
Visit frequency (i.e., number of foragers) per species in each vegetation type and functional groups they belong to (Andersen, 2000). GM = Generalized Myrmicinae, CCS = cold climate specialist, SC = subordinate Camponotini, TCS = tropical climate specialist, O = opportunist.
Subfamily
Specie
Funtional group
Oak forest
Induced grassland
Myrmicinae
Monomorium ebenium
GM
753
167
Myrmicinae
Pheidole sp. 3
GM
14
236
Myrmicinae
Temnothorax sp.
CCS
5
0
Myrmicinae
Temnothorax augusti
CCS
0
1
Formicinae
Prenolepis imparis
CCS
289
11
Formicinae
Camponotus rubrithorax
SC
0
351
Formicinae
Nylanderia austroccidua
TCS
0
30
Dolichoderinae
Linepithema dispertitum
CCS
190
0
Dolichoderinae
Dorymyrmex insanus
O
0
26
Pseudomyrmecinae
Pseudomyrmex pallidus
TCS
0
10
Total
1,251
832
Table 4
Average numerical dominance index (DI) (mean ± SE, n) per ant morphospecies. (-) Unregistered species.
Specie
Oak forest
Induced grassland
ID
Monomorium ebenium
0.4 ± 0.1, 13
0.3 ± 0.1, 9
0.4 ± 0.0, 22
Pheidole sp.3
0.2 ± 0.2, 4
0.2 ± 0.1, 9
0.2 ± 0.1, 13
Temnothorax sp.
0 ± 0, 3
–
0 ± 0, 3
Temnothorax augusti
–
0, 1
0 ± 0, 1
Prenolepis imparis
0.3 ± 0.1, 10
0.5 ± 0.5, 2
0.3 ± 0.1, 12
Camponotus rubrithorax
–
0.1 ± 0.0, 15
0.1 ± 0.0, 15
Nylanderia austroccidua
–
1, 1
1, 1
Linepithema dispertitum
0.7 ± 0.1, 3
–
0.7 ± 0.1, 3
Dorymyrmex insanus
–
0.2 ± 0.1, 4
0.3 ± 0.1, 4
Pseudomyrmex pallidus
–
0 ± 0, 3
0 ± 0, 3
Pheidole spp., in the induced grassland, were observed carrying a greater quantity of plant elements to their nests in both vegetation types. However, it exhibited a preference for the tuna bait in induced grassland, possibly indicating a supplementary dietary preference. Given the extensive diversity within the Pheidole genus, which encompasses 900 species described worldwide (Wilson, 2003), it is not feasible to categorize them based on a specific food habit and our results suggest that it is omnivorous (Table 6). Nevertheless, these results should be interpreted with caution due to the grouping of species.
Camponotus rubrithorax and P. barbatus, in the induced grassland, as well as L. dispertitum, in the oak forest, were more frequently observed foraging the honey bait compared to other ant species. Camponotus (Mayr) is a genus known for its nectarivorous habits and consumption of other sweet secretions, such as honeydew which coincides with its preference for honey found in the present study (Nettimi & Iyer, 2015). In this study, L. dispertitum predominantly consumed honey, although it is a generalist forager species capable of consuming other types of food as well (Table 5), in the study site it is found exclusively in the oak forest (Cuautle et al., 2016).
Despite Pogonomyrmex (Mayr) has been recognized as a granivorous genus (Pirk & López-de Casenave, 2014), this study provided new insights into the foraging preferences of P. barbatus, revealing a notable inclination towards carbohydrates and plant elements within the induced grassland. Moreover, we even registered individuals transporting arthropods to their nests. These findings (Table 5) strongly indicate that certain species within the Pogonomyrmex genus exhibit a generalist foraging behavior. Other species such as D. insanus, which used resources more intensively in the induced grassland, showed no preference for any of the baits or items taken to the nest, which coincides with the generalist forager behavior, observed in open and disturbed habitats by Cuezzo and Guerrero (2012).
Table 5
Average numerical dominance index (DI) (mean ± SE, n) per ant species in both bait types (tuna, honey). (-) Unregistered species.
Species
Tuna
Honey
Monomorium ebenium
0.4 ± 0.1, 18
0.4 ± 0.1, 16
Pheidole sp.3
0.4 ± 0.2, 7
0.1 ± 0.1, 8
Temnothorax sp.
0, 1
0 ± 0, 2
Temnothorax augusti
–
0, 1
Prenolepis imparis
0.5 ± 0.1, 7
0.3 ± 0.1, 10
Camponotus rubrithorax
0.1 ± 0.0, 14
0.2 ± 0.0, 12
Nylanderia austroccidua
–
1, 1
Linepithema dispertitum
0.7 ± 0.2, 2
0.6 ± 0.3, 3
Dorymirmex insanus
0.6 ± 0.3, 3
0 ± 0, 4
Pseudomyrmex pallidus
0 ± 0, 3
0, 1
Table 6
The biology and ecology of the ant genera found in this study, in the Flor del Bosque State Park (Agosti et al., 2000; AntWiki, n.d.).
Genera
Microhabitat
Food habits
Camponotus
Ground nesting, decaying wood and in trees
Generalist foragers
Dorymyrmex
————–
Generalist foragers
Linepithema
————–
Generalist foragers
Labidus
Epigeous,bivouacs
Predators (Army ants)
Monomorium
————–
Generalized foragers, harvesters
Nylanderia
Nest in leaf litter, soil, or in rotten wood
Generalist foragers
Pheidole
Soil or decaying wood
Granivores or omnivores
Pogonomyrmex
Ground nesting
Generalist foragers and granivores
Prenolepis
————–
Generalist predators
Pseudomyrmex
Mostly arboreal (nesters and foragers), few epigaeic
Nesting in ground, and under stones, in wood, and in trees
Generalized foragers and parasites
The previous results (e.g., C. rubrithorax, Pheidole spp., D. insanus) support the reported food habits of specific ant genera. Nonetheless, it is also possible to interpret these results as ants taking nutrients from the baits that are not currently available or that are limited within their community to supplement their diet (Compensation hypothesis) (Davidson, 2005; Kaspari & Yanoviak, 2001). In this study, significant differences in ant species presence on baits were primarily associated with the presence of ant species on honey baits. This finding aligns with the compensation hypothesis (Davidson, 2005; Kaspari & Yanoviak, 2001), which posits that the utility of a resource remains constant across species and varies solely with availability. The hypothesis predicts a singular limiting resource that is locally in shortest supply. Consequently, habitats with relatively high protein availability should attract ants more inclined towards carbohydrates, and vice versa. Previous research has demonstrated that litter ant communities are limited by carbohydrates, whereas ant arboreal communities face protein limitations in tropical regions (Kaspari & Yanoviak, 2001; Kaspari et al., 2012). Although this study was conducted in a temperate environment, the results might be related to the usual scarcity of sugar in the ground strata compared to protein.
Our results do not align with the second hypothesis, which speculated faster arrival times in the induced grassland. We did not find significant differences in arrival times among vegetation types, ant species, or bait types. Ants could be experiencing similar heterogeneities at the soil level between the oak forest and induced grassland. While it is expected that the presence of more litter in the oak forest could hinder ant movement, within the induced grassland, the vegetation morphology itself (long grass species) could be interfering with ant movement. For instance, Hernández-Flores et al. (2016) observed that the foraging performance of P. barbatus was reduced due to the presence of herbaceous vegetation in plots where regeneration after grazing was permitted.
Dominance hierarchy. Disturbance typically favors the presence of generalist and opportunistic species, hence, we expected to find a lower dominance index within the induced grassland (third hypothesis). Nonetheless, we did not find enough evidence to support this hypothesis as we registered ant communities consisted of submissive species in both habitats. Additionally, the ants did not show a tendency to dominate a specific resource, neither at the bait level nor at the species level, suggesting a lack of food preferences. These results are consistent with the findings of Castillo-Guevara et al. (2019), who registered no significant differences in dominance indices between a native oak forest and an altered agricultural land. Moreover, the authors reported intermediate to low values of dominance within the ant communities of each vegetation type. Our findings could be attributed to the presence of other factors that could have overshadowed the role of competition in shaping the organization of ant communities. For example, a review by Parr and Gibb (2012), which encompassed data from 3 continents, indicated that the trade-off between discovery and dominance occurs primarily when parasitoids are present. In environments without parasitoids, species with high discovery abilities tend to also be dominant (Parr & Gibb, 2012). While our study did not specifically assess the discovery-dominance trade-off, the observed lack of differences in arrival times and similar dominance values among the ants suggest that dominance was not a prominent factor in our study sites. It is possible that factors such as low temperatures in the oak forest, or disturbance in the induced grassland, may have played a role in relaxing dominance. According to Andersen (2000), in disturbed vegetation like the induced grassland, it is expected to observe the presence of subdominant ant species that exploit the absence of dominant species from the native vegetation, such as dominant Dolichoderinae. The findings obtained during this study align with this prediction and provide support for it. Notwithstanding, the absence of ants with high dominance indices in the studied communities does not necessarily indicate a complete lack of dominance hierarchy. In each community, the ants can still be ordered based on their DI. For example, in the oak forest, L. dispertitum had the highest DI value (0.7 DI), M. ebenium had an intermediate value (0.4 DI) and Temnothorax spp. had the lowest value (0.0 DI).
Land use change did not seem to influence food preferences or foraging strategies at the community level. However, we observed an effect at species level, indicating that individual ant species exhibited specific food preferences. Carbohydrates could be the limiting resource in the oak forest and the induced grassland litter ant communities, as some ant species showed preference for honey baits. Although competition is typically considered a key factor in understanding food preferences among ants, it is noteworthy that both, the natural oak forest and induced grassland, were predominantly populated by submissive ant species. Therefore, it appears that other factors instead of competition may be playing a role in shaping food preferences within these communities. In conclusion, our study reveals that ant species may exhibit preferences for specific foods, which could be limited in their environment. The ability of ants to respond to available resources enables them to optimize their nutrient intake, as well as adapt and persist under variable conditions, including disturbances. Understanding the distinct dietary preferences and foraging strategies of ant species within functional groups will provide valuable insights into their ecological roles and potential impacts on ecosystem dynamics. Such investigations would enhance our ability to predict the responses of ants to diverse forms of disturbances in an anthropized world.
Acknowledgements
We appreciate the assistance provided by the authorities of “Flor del Bosque” State Park, coordinator Enrique Martínez Romero (M.S.) and director Mario Alberto Romero Guzmán (MVZ). We would also like to thank Florencio Luna Castellanos for his support with the fieldwork. This study was financed by Consejo Nacional de Humanidades Ciencias y Tecnologías (Conahcyt) as part of a grant awarded to Mariana Cuautle (223033).
References
Abacus Concepts Inc. (1996). Abacus Concepts, Stat View Reference. Berkeley, California.
Agosti, D., Majer, J. D., Alonso, L. E., & Schultz, T. R. (2000). Ants: standard methods for measuring and monitoring bio- diversity. Washington D.C.: Smithsonian Institution Press.
Andersen, A. (2000). A global ecology of rainforest ants: functional groups in relation to environmental stress and disturbance. In D. Agosti, J. D. Majer, L. E. Alonso, & T. R. Schultz (Eds.), Ants: standard methods for measuring and monitoring biodiversity (pp. 25–34). Washington D.C.: Smithsonian Institution Press.
Andersen, A.N. (1992). Regulation of “momentary” diversity by dominant species in exceptionally rich ant communities of the Australian seasonal tropics. The American Naturalist, 40, 401–420. https://www.journals.uchicago.edu/doi/abs/10. 1086/285419
Arnan, X., Cerdá, X., & Retana, J. (2012). Distinctive life traits and distribution along environmental gradients of dominant and subordinate Mediterranean ant species. Oecologia, 170, 489–500. https://doi.org/10.1007/s00442-012-2315-y
Castillo-Guevara, C., Cuautle, M., Lara, C., & Juárez-Juárez, B. (2019). Effect of agricultural land-use change on ant dominance hierarchy and food preferences in a temperate oak forest. PeerJ, 7, e6255. https://peerj.com/articles/6255/
Cerdá, X., Arnan, X., & Retana, J. (2013). Is competition a significant hallmark of ant (Hymenoptera: Formicidae) ecology? Myrmecological News, 18, 131–147. https://doi.org/10.25849/myrmecol.news_018:131
Cerdá, X., Retana, J., & Cros S. (1997). Thermal disruption of transitive hierarchies in Mediterranean ant communities. Journal of Animal Ecology, 66, 363–374.
Costes-Quijano, R., Meza, A. R., Macías-Juárez, A., Berriel-Mastreta, C. A., Cortés-Atilano, B., Martínez-Romero, L. E. et al. (2006). Plan de manejo Parque Ecológico Recreativo General Lázaro Cárdenas “Flor del Bosque”. [Management Plan of the recreative ecological Park “General Lázaro Cárdenas “Flor del Bosque”]. Ciudad de México: Gobierno del Estado de Puebla/ Secretaría de Medio Ambiente y Recursos Naturales.
Cuautle, M., Vergara, C., & Badano, E. (2016). Comparison of ant community diversity and functional group composition associated to land use change in a seasonally dry oak forest. Neotropical Entomology, 45, 170–9. https://doi.org/ 10.1155/2012/516058
Cuezzo, F., & Guerrero, R. J. (2012). The Ant Genus Dorymyrmex Mayr (Hymenoptera: Formicidae: Dolicho- derinae) in Colombia. Psyche, 51605, 1–24. https://doi.org/ 10.1155/2012/516058
Dáttilo, W., Díaz-Castelazo, C., & Rico-Gray, V. (2014). Ant dominance hierarchy determines the nested pattern in ant-plant networks. Biological Journal of the Linnean Society, 113, 405–414. https://doi.org/10.1111/bij.12350.
Davidson, D. W. (2005). Ecological stoichiometry of ants in a New World rain forest. Oecologia, 142, 221–231. https://doi.org/10.1007/s00442-004-1722-0
Dejean, A., & Corbara, B. (2003). A review of mosaics of dominant ants in rainforests and plantations. In Y. Basset, V. Novotny, S. E. Miller, & R. L. Kitching (Eds.), Arthropods of tropical forests: spatio-temporal dynamics and resource use in the canopy (pp 341–347). Cambridge: Cambridge University Press.
Ellis, E. C., Goldewijk, K. K., Siebert S., Lightman, D., & Ramankutty, N. (2010). Anthropogenic transformation of the biomes, 1700 to 2000. Global Ecology and Biogeo- graphy, 19, 589–606. https://doi.org/10.1111/j.1466-8238.20 10.00540.x
Fellers, J. H. (1987). Interference and exploitation in a guild of Woodland ants. Ecology, 68, 1466–1478. https://doi.org/ 10.2307/1939230
Fellers, J. H. (1989). Daily and seasonal activity in woodland ants. Oecologia, 78, 69–76. https://doi.org/10.1007/BF0037 7199
Foley, J. A., DeFries, R., Asner, G. P., Barford C., Bonan, G., Carpenter, S. R. et al. (2005). Global consequences of land use. Science, 309, 570–574. https://doi/10.1126/science.1111772
Hoffmann, B. D., & Andersen, A. N. (2003). Responses of ants to disturbance in Australia, with particular reference to functional groups. Austral Ecologyl, 28, 444–464. –https://doi.org/10.1046/j.1442-9993.2003.01301.x
Houdria, M., Salas-López, A., Orivel. J., Bluthgen, N., & Menzel, F. (2015). Dietary and temporal niche differentiation in tropical ants – can they explain local ant coexistence? Biotropica, 47,208–217. https://doi.org/10.1111/btp.12184
Hernández-Flores, J., Osorio-Beristain. M., & Martínez-Garza. C. (2016). Ant foraging as an indicator of tropical dry forest restoration. Environmental Entomology, 45, 991–994. https://doi.org/10.1093/ee/nvw054
Kaspari, M., Donoso, D., Lucas, J. A., Zumbusch, T., & Kay, A. D. (2012). Using nutritional ecology to predict community structure: a field test in Neotropical ants. Ecosphere, 3,93. https://doi.org/10.1890/ES12-00136.1
Kaspari, M., & Yanoviak, S. P. (2001). Bait use in tropical litter and canopy ants-evidence of differences in nutrient limitation. Biotropica, 33,207–211. https://doi.org/10.1646/ 0006-3606(2001)033[0207:BUITLA]2.0.CO;2
Łaska, G. (2001). The disturbance and vegetation dynamics: a review and an alternative framework. Plant Ecology, 157, 77–99. https://doi.org/10.1023/A:1013760320805
Lynch, J. F., Balinsky, E. C., & Vail, S. G. (1980). Foraging patterns in three sympatric forest ant species, Prenolepis imparis, Paratrechina melanderi and Aphaenogaster rudis (Hymenoptera: Formicidae). Ecological Entomology, 5,353–371. https://doi.org/10.1111/j.1365-2311.1980.tb01160.x
Mackay, W., & Mackay, E. (1989). Clave de los géneros de hormigas en México (Hymenoptera: Formicidae). El Paso, Texas: The University of Texas.
Nettimi, R. P., & Iyer, P. (2015). Patch fidelity in Camponotus compressus ants foraging on honeydew secreted by treehoppers. Current Science, 109, 362–366.
Parr, C. L. (2008). Dominant ants can control assemblage species richness in a South Africa savanna. Journal of Animal Ecology, 77, 1191–1198. https://doi.org/10.1111/j.13 65-2656.2008.01450.x
Parr, L., & Gibb, H. (2012). The discovery-dominance trade-off is the exception, rather than the rule Journal of Animal Ecology, 81, 233–241. https://doi.org/10.1111/j.1365-2656. 2011.01899.x
Pirk, G. I., & López-de Casenave, J. (2014). Effect of harvester ants of the genus Pogonomyrmex on the soil seed bank around their nests in the central Monte desert, Argentina. Ecological Entomology, 39, 610–619. https://doi.org/10.1111/een.12140
R Core Team (2022). R: a language and environment for statistical computing. Vienna, Austria: R Foundation for Statistical Computing. https://www.R-project.org/
Radnan, G. N., Gibb, H., & Eldridge, D. J. (2018). Soil surface complexity has a larger effect on food exploitation by ants than a change from grassland to shrubland. Ecological Entomology, 43, 379–388. https://doi.org/10.1111/een.12510
Rico-Gray, V., & Oliveira, P. S. (2007). The ecology and evolution of ant-plant interactions. Chicago: University of Chicago Press.
Sala, O. E., Chapin, F. S., Armesto, J. J., Berlow, E., Bloomfield, J., Dirzo. R. et al. (2000). Global biodiversity scenarios for the year 2100. Science, 287,1770–1774. https://doi.org/10.1126/science.287.5459.17
Santini, G., Tucci, L., Ottonetti, L., & Frizzi, L. (2007). Competition trade-offs in the organisation of a Medite- rranean ant assemblage. Ecological Entomology, 32, 319–326. https://doi.org/10.1111/j.1365-2311.2007.00882.x
Savolainen, R., Vepsäläinen, K., & Wuorenrinne, H. (1989). Ant assemblages in the taiga biome: testing the role of territorial wood ants. Oecologia, 81, 481–486. https://doi.org/10.1007/BF00378955
Manuel Palomo-Morales a, b, *, Luis Enrique Sánchez-Ramos c, d, Luis Gerardo Herrera-Montalvo e, Adolfo G. Navarro-Sigüenza d, f y Pedro Luis Valverde b
a Universidad Autónoma Metropolitana, Doctorado en Ciencias Biológicas y de la Salud, Av. Ferrocarril San Rafael Atlixco, Núm. 186, Col. Leyes de Reforma 1 A Sección, 09310 Ciudad de México, México
b Universidad Autónoma Metropolitana-Iztapalapa, Departamento de Biología, Av. Ferrocarril San Rafael Atlixco, Núm. 186, Col. Leyes de Reforma 1 A Sección, 09310 Ciudad de México, México
c Universidad Nacional Autónoma de México, Instituto de Geociencias, Blvd. Juriquilla 3001, La Mesa, 76230 Juriquilla, Querétaro, México
d Universidad Nacional Autónoma de México, Facultad de Ciencias, Museo de Zoología, Apartado postal 70-399, 04510 Ciudad de México, México
e Universidad Nacional Autónoma de México, Instituto de Biología, Estación de Biología Chamela, Carretera Federal Barra de Navidad-Puerto Vallarta Km 59, 48854 Chamela, Jalisco, México
f Universidad Nacional Autónoma de México, Unidad Multidisciplinaria de Docencia e Investigación, Facultad de Ciencias-Campus Juriquilla, Blvd. Juriquilla 3001, La Mesa, 76230 Juriquilla, Querétaro, México
*Autor para correspondencia: manuelpm.biol@gmail.com (M. Palomo-Morales)
Recibido: 25 junio 2024; aceptado: 15 agosto 2024
Resumen
Evaluamos la diversidad de pastos nativos, pastos no nativos y aves de pastizal en el Desierto Chihuahuense en un contexto histórico-ambiental de presión antropogénica en los periodos de 1930-1964, 1965-1981 y 1982-2019. Analizamos la riqueza regional, la diversidad beta y la composición de 41 especies de aves de pastizal, 149 especies de pastos nativos y 60 especies de pastos no nativos, así como la prevalencia de pastos nativos y su correlación con las aves de pastizal en cada periodo. Los resultados mostraron una reducción de la diversidad beta en los 3 ensambles a lo largo del tiempo, sin relaciones significativas entre el ensamble de aves y la prevalencia de pastos nativos en el último periodo. Esto sugiere que la distribución actual de las aves de pastizal es independiente del tipo de pasto a nivel regional. La expansión de pastos no nativos en el Desierto Chihuahuense, favorecida por políticas públicas a lo largo del tiempo, ha conformado un ensamble de pastizales mixtos, lo que actualmente no afecta la composición de aves de pastizal a escala regional. Sugerimos realizar evaluaciones locales para comprender mejor la relación entre las aves de pastizal y los distintos pastos presentes en la región.
Palabras clave: Diversidad beta; Presencia-ausencia; Ensamble de especies; Índice de prevalencia; NMDS
Influence of the introduction of non-native grasses on the species richness of bird assemblages in the Chihuahuan Desert region: a temporal analysis
Abstract
We assessed the diversity of native grasses, non-native grasses, and grassland birds in the Chihuahuan Desert in a historical-environmental context of anthropogenic pressure during the periods 1930-1964, 1965-1981, and 1982-2019. We analyzed the regional richness, beta diversity, and composition of 41 grassland bird species, 149 native grass species, and 60 non-native grass species, as well as the prevalence of native grasses and their correlation with grassland birds in each period. The results showed a reduction in beta diversity in the 3 assemblages over time, with no significant relationships between bird assemblage and native grass prevalence in the last period. This suggests that the current distribution of grassland birds is independent of grass type at the regional level. The expansion of non-native grasses in the Chihuahuan Desert, favored by public policies over time, has formed an assemblage of mixed grasslands, which currently does not affect the composition of grassland birds at the regional level. We suggest conducting local assessments to better understand the relationship between grassland birds and the different grasses present in the region.
Keywords: Beta diversity; Presence-absence; Species assemblage; Prevalence rate; NMDS
Introducción
Las especies introducidas de animales y plantas alteran la composición y ecología de las comunidades biológicas, tanto local como regionalmente (Davis, 2003). En particular, las investigaciones sobre plantas introducidas e invasoras se han centrado en cuantificar y describir sus impactos a diversas escalas, desde poblaciones y especies, hasta comunidades y ecosistemas (Hejda et al., 2009; Pyšek et al., 2012). Con el tiempo, muchas especies de plantas introducidas se han expandido y pueden, potencialmente, acelerar la extirpación de poblaciones de especies nativas de forma localizada y, eventualmente, aumentar la homogeneidad biótica del hábitat, lo que reduce la diferenciación de las floras a nivel regional (Qian y Ricklefs, 2006).
Las especies de pastos (familia Poaceae) que han sido introducidas en diferentes regiones son el principal agente que ha perturbado los pastizales nativos de extensas regiones del mundo, como ha sucedido por ejemplo en las praderas de California, las Grandes Planicies del centro de los EUA, así como en varias regiones del centro de Australia, entre otras (Gibson, 2009). Los efectos de la invasión de pastos exóticos dependen en parte de la gravedad de cualquier cambio ambiental o del régimen de perturbación humana, como el pastoreo excesivo, la sequía, la frecuencia de incendios, el pisoteo del ganado, la fragmentación del hábitat y la cercanía con tierras agrícolas que favorecen su dispersión (Chaneton et al., 2002; Gibson, 2009; Hamilton, 1999; Weaver et al., 1996). Algunas de las consecuencias de las invasiones por estos pastos incluyen la simplificación de la estructura de la vegetación, la reducción de la biodiversidad al disminuir el hábitat preferente de muchas especies de vida silvestre, así como la alteración de los regímenes naturales de incendios y ciclo de nutrientes, entre otras (Wied et al., 2020).
En Norteamérica, las regiones de pastizales naturales ocupan una importante porción de la superficie continental (Gibson, 2009). Se pueden encontrar áreas importantes de este tipo de vegetación desde Canadá hasta el centro de México (APCP, 2010), albergando una gran biodiversidad a lo largo de su extensión. En México este tipo de vegetación ocupa, aproximadamente, 118,320 km2 (Challenger, 1998), las áreas más importantes se encuentran en extensas zonas del norte, principalmente en el Desierto Chihuahuense (Desmond y Montoya, 2006). Existe también una gran diversidad de condiciones en las que los pastizales naturales se presentan en el país, como por ejemplo los pastizales submontanos del Eje Neovolcánico Transversal (dispersos en zonas como la sierra nevada del sistema Popocatépetl-Iztaccíhuatl, el nevado de Colima, y el volcán Ajusco), entre otros (Challenger y Soberón, 2009). Otras zonas de pastizal húmedo se pueden encontrar en áreas de selva tropical con distribución restringida en Tabasco y Campeche (Challenger, 1998). Sin embargo, también existe una considerable extensión de pastizales inducidos dispersa por el país derivado de actividades ganaderas desde hace varias décadas (Challenger y Soberón, 2009).
Ante la presencia cada vez mayor de pastizales inducidos, el sistema de pastizales nativos del Desierto Chihuahuense, pese a su fisonomía y estructura aparentemente simples, representa una región de gran importancia para la conservación de los pastizales semiáridos, por la considerable riqueza de especies vegetales y presencia de pastos endémicos (Challenger y Soberón, 2009; Desmond y Montoya, 2006). Además, la extensión de estos pastizales se ha reconocido como relevante para una gran diversidad de taxones animales, que incluyen tanto aves de pastizal residentes (y algunas endémicas; e.g., Spizella wortheni) como migratorias, que son compartidas con Canadá y EUA (Macías-Duarte et al., 2009). Factores como la deforestación, la fragmentación del hábitat y el reemplazo de las comunidades de pastos nativos por paisajes agrícolas, han contribuido en el deterioro a gran escala de los pastizales, siendo a la vez los responsables de la disminución de las poblaciones de aves de pastizal (Brennan y Kuvlesky, 2005). Adicionalmente, se puede considerar que las zonas semiáridas del norte de México son de las menos susceptibles a la invasión de plantas no nativas debido a un menor desarrollo urbano, en contraste con los enormes centros urbanos en el centro y sur de México (del Val et al., 2015). Dentro de esta región, la gran extensión de pastizales naturales ha sido ocupada por varias especies de pastos no nativos que se han establecido desde principios del siglo XX (Melgoza-Castillo et al., 2014; Valenzuela-Núñez et al., 2009). Las zonas de pastizales invadidas por gramíneas no nativas proveen una menor cantidad de hábitats disponibles y, por lo tanto, menos recursos en comparación con aquellas zonas de pasto nativo que soportan un mayor conjunto de aves de pastizal (George et al., 2013). Por lo tanto, se vuelve necesario mantener y restaurar las condiciones originales de los pastizales para evitar la reducción de las poblaciones de aves residentes y migratorias de pastizal (Macías-Duarte et al., 2017).
En México, la introducción y expansión de especies de pastos exóticos obedece, probablemente, a la aplicación de políticas públicas impulsadas para promover la producción cárnica (Challenger y Soberón, 2009). En la historia del desarrollo agropecuario de México se pueden distinguir 3 periodos principales que implican cambios radicales en las prácticas ganaderas y que, por consiguiente, guiaron la transformación de los pastizales naturales (Chauvet-Sánchez, 1999). El primero, de 1930 a 1964 se caracterizó por la sustitución de las importaciones ganaderas para incentivar el mercado nacional, los intentos de erradicación de la tuberculosis y la fiebre aftosa en el ganado, así como la consolidación de la medicina veterinaria en México (Cervantes-Sánchez y Román de Carlos, 2001; Chauvet-Sánchez, 1999). El segundo periodo refleja la consolidación del mercado ganadero de exportación de cárnicos de manera constante, lo que dio lugar al auge ganadero nacional entre 1965-1981 con la ganaderización de la agricultura caracterizado por la sobreexplotación y agotamiento de los pastizales (Chauvet-Sánchez, 1999). Posteriormente, la eliminación de las políticas proteccionistas y el incremento de importación de cárnicos en el inicio de las políticas neoliberales dieron lugar al tercer periodo considerando la decadencia ganadera de 1982 hasta la actualidad (Chauvet-Sánchez, 1999). Cabe mencionar que durante este periodo surgen políticas de manejo y conservación de pastizales en varios sitos del Desierto Chihuahuense, como consecuencia del auge de la ciencia de la ecología y una mayor preocupación por la conservación de los recursos naturales (Hoth, 2012). Además, el cambio de modelo económico posterior a la firma del Tratado de Libre Comercio de América del Norte (TLCAN) produjo una menor presión sobre el pastizal al reducir el tiempo de cría del ganado para su engorde en EUA y posterior retorno a nuestro país como productos cárnicos procesados (Carrera-Chávez et al., 2010; Chauvet-Sánchez, 1999).
Estas etapas en el país enmarcan el tiempo en que la presión antropogénica pudo ser relevante para favorecer la introducción y expansión de pastos no nativos dentro del Desierto Chihuahuense, sobre todo porque estas especies de pastos, una vez establecidas, se expandieron con el tiempo ampliando su área de distribución geográfica (Guo et al., 2006). Comprender la dinámica temporal de cambio en la biodiversidad vegetal sobre las especies nativas es crucial para las estrategias de conservación a una escala regional. Estos cambios se han abordado a través de análisis de la diversidad beta (Qian, 2008; Qian y Ricklefs, 2006), entendida como los cambios en la composición de especies en ámbitos espacial, temporal y ambiental (Calderón-Patrón y Moreno, 2019).
Para evaluar el efecto de las especies de gramíneas introducidas sobre la composición de especies nativas en sistemas de pastizal (Eskelinen y Harrison, 2015; Joner et al., 2021; Szentes et al., 2012), la diversidad beta puede valorarse a través de índices de similitud con análisis basado en 2 componentes: el recambio y el anidamiento (Baselga, 2010; Calderón-Patrón y Moreno, 2019). Ecológicamente, estos componentes pueden reflejar una selección de especies por el ambiente o por procesos de dispersión, así como una relación entre las dinámicas de pérdida o colonización de especies (Baselga, 2010). Por ejemplo, en los pastizales centrales de Norteamérica, la diversidad beta mostró cambios en la composición de especies de aves a lo largo de un gradiente de disponibilidad de pastizales, lo que refleja la pérdida del hábitat original en el espacio tras varios años de modificación antropogénica (Pavlacky et al., 2022). Por otro lado, también se ha descrito que una partición de la diversidad total entre tipos de pastizales de una región puede mostrar el comportamiento del recambio total de la composición de aves de pastizal (Żmihorski et al., 2016).
La diversidad beta ofrece una herramienta adecuada para medir la disimilitud en la composición de especies debido a factores como el arreglo espacial, las restricciones espaciales o históricas, así como el gradiente de riqueza de especies (Baselga, 2010). Esto permite explorar los patrones de diversidad beta a lo largo del tiempo (Almeida-Neto et al., 2011), por lo que resulta valioso para evaluar el efecto de la introducción de pastos no nativos sobre la diversidad de aves de pastizal en el Desierto Chihuahuense.
Partiendo del contexto histórico-ambiental de la región antes descrito, se espera en el presente estudio que el recambio composicional de pastos nativos por pastos no nativos influya en la pérdida de especies de aves de pastizal. El objetivo de este estudio fue analizar el efecto de la introducción de pastos no nativos en la riqueza de aves de pastizal en el Desierto Chihuahuense, durante los 3 periodos descritos (1930-1964, 1965-1981 y 1982-2019) con distintas prácticas agropecuarias con la finalidad de evaluar si las políticas económicas han tenido una influencia sobre la diversidad de la biota asociada a esos ecosistemas. Especialmente, se pretende analizar si el incremento de los cambios en la gestión agrícola a largo plazo ha propiciado cambios en la diversidad de aves de pastizal (Chamberlain, 2000; Rosenberg et al., 2019). De manera específica, se plantearon los siguientes objetivos particulares: 1) obtener la diversidad beta regional de los pastos nativos y no nativos, así como de aves de pastizal en la región; 2) evaluar si existen diferencias en la composición de especies de los ensambles de aves, pastos nativos y no nativos, entre los 3 periodos propuestos; 3) evaluar la relación de los componentes de la diversidad beta (pérdida/ganancia de especies y si las especies son únicas o compartidas) de pastos nativos y no nativos sobre la composición de aves de pastizal; 4) probar si existe una correlación entre la prevalencia de pastos nativos y las aves de pastizal. Los resultados de esta investigación aportarán un enfoque novedoso para entender la influencia del cambio composicional en los pastizales (nativos/no nativos) sobre la diversidad de aves, resultado de las actividades de manejo planteadas en los planes de desarrollo agropecuario mexicano en el último siglo.
Materiales y métodos
El área de estudio son los pastizales semiáridos que se extienden a lo largo del Desierto Chihuahuense en EUA y México, destacando que estos pastizales varían considerablemente en la composición de pastos nativos (González-Medrano, 2012). Además, en esta región se ha registrado la presencia de diversas especies de aves de pastizal residentes y migratorias (Levandoski y Panjabi, 2014; Ruvalcaba-Ortega y Panjabi, 2018; Vickery et al., 1999). La delimitación del área de estudio (fig. 1a) se estableció utilizando el sistema de información geográfica QGis 3.16, a partir de la unión de los polígonos correspondientes a las ecorregiones de la CCA (Comisión de Cooperación Ambiental) extraídas del mapa de la North American Terrestrial Ecoregions-Level III (Wiken et al., 2011): 1) Archipiélago Madrense, 2) Desierto Chihuahuense, 3) Planicies del Sur de Texas, 4) Pie de Monte Sierra Madre Occidental y 5) Altiplanicie Mexicana (fig. 1a). Estas ecorregiones fueron elegidas por la presencia de pastizales naturales y son consideradas como los pastizales cálidos de Norteamérica (Brown y Makings, 2014).
A partir del polígono del área de estudio, se construyó en QGis 3.16 una malla de celdas triangulares con una resolución geográfica de 1° de longitud por celda (aprox. 111.1 km2). La forma de las celdas fue elegida de entre varias alternativas, como cuadrícula (e.g., Rojas-Soto et al., 2003) o hexágonos (e.g., Sánchez-Ramos et al., 2018), optando por las celdas triangulares debido a que fueron las que mejor se ajustaron al área del polígono, y el nivel de resolución fue el óptimo para organizar los registros de especies para algunos de los análisis posteriores (fig. 1b).
Para obtener los registros de pastos nativos y no nativos (material suplementario: tabla 1S) se tomó como base el Catálogo de las gramíneas malezas nativas e introducidas de México (Melgoza-Castillo et al., 2014; Sánchez-Ken et al., 2012). Considerando a las especies presentes dentro del área del polígono, se seleccionaron 149 especies de pastos nativos y 60 especies de pastos no nativos. Para la nomenclatura taxonómica se siguió a The World Checklist of Vascular Plants(WCVP; Govaerts, 2022).
Para obtener los registros de las aves de pastizal de acuerdo con la literatura científica, se seleccionaron las especies que previamente han sido catalogadas como dependientes de este tipo de hábitat, ya sea por utilizar estos sitios como áreas reproductivas o importantes en sus rutas migratorias dentro del Desierto Chihuahuense (Levandoski y Panjabi, 2014; Ruvalcaba-Ortega y Panjabi, 2018; material suplementario: tabla 2S). En total, se obtuvieron los registros de 41 especies de aves (residentes y migratorias) asociadas a pastizales, que se determinaron siguiendo la nomenclatura de American Ornithological Society (AOS, Chesser et al., 2022).
Figura 1. a, Ecorregiones extraídas del mapa de North American Terrestrial Ecoregions —Level III (Wiken et al., 2011) con las que se definió el polígono del Desierto Chihuahuense (amarillo); b, rejilla de 1 minuto de arco (verde) sobre el área de estudio usada para realizar las matrices de presencia-ausencia.
Los datos primarios de presencia de las especies seleccionadas de aves, pastos nativos y no nativos, se extrajeron del explorador de registros de la Global Biodiversity Information Facility (GBIF, https://www.gbif.org), utilizando el polígono del área de estudio para delimitar espacialmente la consulta (los enlaces de descarga [DOI] de las consultas se encuentran en el material suplementario: tabla 1S). Se utilizó el intervalo de tiempo de 1930 a 2019, correspondiente a los 3 periodos del desarrollo agropecuario mexicano en el último siglo. Los datos de presencia disponibles permitieron contar con un registro histórico confiable del recambio espacial de las especies de la región. No fue posible establecer una base previa a este intervalo debido a la escasez de registros de pastos no nativos antes de 1930. Los registros obtenidos fueron reorganizados en 3 bases de datos (pastos nativos, pastos no nativos y aves de pastizal) construidas en un sistema de gestión de bases de datos (Microsoft Access®). En cada una de las bases de datos se realizó una depuración de las georreferencias repetidas y los registros mal georreferenciados con respecto al polígono, con el fin de eliminar las inconsistencias generadas por la captura de datos. Por último, se consideraron los intervalos de tiempo de 1930 a 1964, 1965 a 1981 y 1982 a 2019 para detectar los posibles cambios temporales en la composición de especies de aves, consecuencia de la introducción de especies de pastos no nativos.
Con la finalidad de evaluar la calidad del muestreo de los diferentes taxones, se generaron curvas de acumulación de las especies de aves, pastos nativos y pastos no nativos para cada periodo. Estas curvas representan el número acumulado de especies encontradas al aumentar el tamaño de muestra (e.g., el aumento del esfuerzo de muestreo en el tiempo para cada periodo). Los estimadores de las curvas de acumulación de especies por grupo taxonómico y periodo se obtuvieron a partir de las matrices de presencia-ausencia con el paquete EstimateS 9.1 (Colwell, 2013). Adicionalmente, se estimaron los estadísticos de Chao2 para evaluar la completitud del muestreo (Colwell, 2013).
Diversidad beta
Índices de disimilitud. Con los datos de presencia-ausencia, se exploraron los cambios en la composición de especies en las celdas durante los 3 periodos mediante el cálculo de la diversidad β de Sorensen (βsor aditivo) (Baselga, 2010). Esta métrica está compuesta por el recambio, medido por la diversidad β de Simpson (βsim), y por el anidamiento medido por la diversidad β anidada (βnes) (Baselga, 2010). El primer componente corresponde a cuántas especies de un sitio son reemplazadas por especies diferentes de otros sitios (valores de 0 = todas las especies son iguales y 1 = todas las especies son diferentes), mientras que el segundo componente se refiere a la pérdida gradual de especies de un sitio a otro (valores de 0 = pérdida total de especies y 1 = ganancia total de especies); es decir, un sitio es un subconjunto del otro (Baselga, 2010). Estos componentes se consideran un reflejo de los procesos de selección de especies por factores ambientales, así como una dinámica de pérdida o colonización de especies (Calderón-Patrón y Moreno, 2019; Vellend, 2010). Estos índices se calcularon en la paquetería “betapart” de R por medio de betapair a partir de las matrices de presencia-ausencia (Baselga et al., 2018). Con estos índices se midió la variación en la composición de especies de pastos nativos, pastos no nativos y aves de pastizal en cada uno de los 3 periodos (Baselga y Orme, 2012; Llanes-Quevedo et al., 2024).
Riqueza de aves de pastizal, pastos nativos y no nativos, y prevalencia de pastos nativos. Para evaluar las diferencias de la composición de especies de aves de pastizal y la composición de pastos nativos y no nativos entre los 3 periodos, se obtuvo la riqueza total de pastos nativos y no nativos por celda por periodo. Estas riquezas totales fueron utilizadas para calcular un índice de prevalencia de especies de pastos nativos (IPPN). Para cada celda por periodo, este índice sintetiza la riqueza de especies de pastos nativos y no nativos en una variable (adaptado de Legendre, 2019). El IPPN se calcula como: PN / (PN + PNN), donde PN es el número de especies de pastos nativos y PNN es el número de especies de pastos no nativos. Este índice varía de 0 (cuando todas las especies son pastos no nativos) a 1 (cuando todas las especies son pastos nativos). Las celdas sin registros de especies de pastos nativos o no nativos se eliminaron. Adicionalmente, para cada celda se obtuvo la riqueza total de aves de pastizal por periodo. Para evaluar las diferencias en la riqueza total de aves, pastos nativos, pastos no nativos, así como en el IPPN entre periodos, se utilizaron análisis de varianza de Kruskal-Wallis (KW). En cada análisis, el periodo con 3 niveles (1930-1964, 1965-1981 y 1982-2019) fue considerado como factor (Zar, 2010). Los análisis de KW se realizaron utilizando la función de kruskal.test() del paquete R (Kloke y McKean, 2015). En el caso de detectarse diferencias significativas, se realizaron pruebas “post-hoc” de Wilcoxon con la probabilidad ajustada de Bonferroni (α = 0.05/3 = 0.0166; Wright, 1992). Las posibles relaciones entre el IPPN y la riqueza total de aves de pastizal en cada uno de los 3 periodos, se analizaron con correlaciones de Spearman (rs) utilizando la función cor.test() del paquete R (Hollander y Wolfe, 1973). Estas variables fueron transformadas al arcoseno√ y log10+1, respectivamente (Zar, 2010). Adicionalmente, se visualizó y exploró la composición de cada conjunto de especies (i.e., aves de pastizal, pastos nativos y pastos no nativos) en los 3 periodos con análisis de escalamiento multidimensional no métrico (NMDS) con la función metaMDS() de la paquetería Vegan de R (Oksanen et al., 2013). Se utilizó la matriz transpuesta de presencia/ausencia (especies × sitios) de las especies de aves de pastizal, pastos nativos y pastos no nativos de cada uno de los 3 periodos con base en el coeficiente de distancia euclidiana (Palacio et al., 2020). La visualización por medio del análisis NMDS nos permite explorar y presentar, de manera más accesible, el efecto de los 3 periodos.
Resultados
El total de datos descargados que se obtuvieron para los 3 conjuntos de especies fue de 2,345,226 registros para aves de pastizal, 37,750 registros para pastos nativos y 8,815 para pastos no nativos. Al reorganizar, depurar, ajustar geográficamente y dividir los datos para cada uno de los 3 periodos correspondientes, se obtuvieron en total 328,809 registros de las 41 especies de aves de pastizal, 25,429 registros de las 149 especies de pastos nativos y 5,555 de las 60 especies de pastos no nativos. El número total de especies y conjunto de registros para cada uno de los periodos, así como la disposición espacial de los mismos, se puede consultar en el material suplementario (fig. 1S; tabla 3S). La mayor parte (93.33%) de los registros recolectados en GBIF correspondientes a las especies tanto de pastos nativos como no nativos, proceden de colecciones científicas y, en menor medida, de observaciones en campo o artículos de investigación (6.77%). Por el contrario, los registros de aves de pastizal proceden, en su mayor parte (97.16%), de observaciones de campo, seguido de investigaciones publicadas o de colecciones científicas (2.84%).
Se observaron patrones consistentes en la riqueza de especies en pastizales a lo largo de los 3 periodos analizados. En cada periodo, las curvas de acumulación indicaron que la mayor diversidad de especies se observó en pastos nativos, seguida de los pastos no nativos y las aves de pastizal (fig. 2). Los estimadores Chao2 respaldaron estos patrones con tamaños de muestra de diversidad distintos para cada conjunto. Para los pastos nativos, se estimó un registro de aproximadamente 94.7%, 90.4% y 99.8% de la riqueza total esperada en cada uno de los 3 periodos, respectivamente. Para pastos no nativos, las estimaciones fueron de 84.9%, 96.1%, y 96.9%, respectivamente. Para aves de pastizal, se estimó un registro de alrededor de 97.6% de la riqueza de especies en el primer periodo, mientras que, en los periodos siguientes, se estimó en 100% de la riqueza de especies, aunque esta estimación perfecta podría deberse a características particulares del estimador y al número fijo de especies a analizar.
El índice de disimilitud (βsor) mostró una tendencia en la disminución en los 3 ensambles a lo largo de los 3 periodos, lo que indica que aumentó la similitud entre las celdas que conforman el área de estudio para aves de pastizal, pastos nativos y no nativos (tabla 1). El índice de recambio (βsim) también disminuyó entre el primer periodo y el último, principalmente para las aves de pastizal (tabla 1). Por su parte, el índice de anidamiento (βsne) incrementó en todos los casos (tabla 1). Los resultados indican que, en la actualidad, las celdas comparten más especies entre sí y el recambio de especies ha disminuido para el último periodo.
Tabla 1
Índices de diversidad beta (βsor = βsim + βnes) obtenidos con beta.pair() de aves de pastizal, pastos nativos y pastos no nativos para cada periodo. x = Media y DE = desviación estándar.
Periodo
Aves de pastizal
Pastos nativos
Pastos no nativos
1930-1964
x
DE
x
DE
x
DE
βsor
0.74
0.21
0.83
0.16
0.81
0.23
βsim
0.50
0.36
0.66
0.29
0.70
0.38
βsne
0.24
0.27
0.16
0.22
0.12
0.20
1965-1981
x
DE
x
DE
x
DE
βsor
0.73
0.23
0.81
0.16
0.85
0.20
βsim
0.40
0.39
0.64
0.28
0.69
0.38
βsne
0.33
0.32
0.17
0.22
0.15
0.25
1982-2019
x
DE
x
DE
x
DE
βsor
0.35
0.21
0.74
0.18
0.77
0.19
βsim
0.09
0.11
0.52
0.28
0.55
0.36
βsne
0.26
0.23
0.23
0.23
0.22
0.27
Figura 2. Curvas de acumulación de especies de aves de pastizal (azul), pastos nativos (verde) y pastos no nativos (rojo) para los periodos de a) 1930-1964, b) 1965-1981 y c) 1982-2019.
Los análisis revelaron diferencias significativas de la riqueza de aves de pastizal (H = 196.24, g.l. = 2, p = 0.0001), pastos nativos (H = 35.78, g.l. = 2, p = 0.0001), pastos no nativos (H = 50.74, g.l. = 2, p = 0.0009) y el IPPN (H = 47.40, g.l. = 2, p = 0.0005) entre periodos (fig. 3). Estos hallazgos indican un efecto significativo a lo largo del tiempo en cada uno de los grupos taxonómicos evaluados, lo que refleja posibles cambios en la composición y estructura de las comunidades biológicas en respuesta a factores de manejo específicos o ambientales de cada período. La riqueza de aves de pastizal del periodo 1982-2019 fue significativamente mayor (p < 0.0001) con respecto a los periodos 1930-1964 y 1965-1981. Similarmente, la riqueza de pastos nativos y no nativos del periodo 1982-2019 fue significativamente mayor en comparación con aquella del periodo 1930-1964 (p = 0.0001) y 1965-1981 (p = 0.0013). Por otro el contrario, el IPPN del periodo 1982-2019 fue significativamente menor en comparación con el del periodo de 1930-1964 (p < 0.0001) y 1965-1981 (p = 0.0003).
Figura 3. Diagramas de caja de la riqueza de aves de pastizal, pastos nativos, pastos no nativos y el índice de prevalencia de pastos nativos (IPPN) para cada periodo. Periodos identificados con letras diferentes indican diferencias significativas (p ≤ 0.0166) con el resto a partir de pruebas “post-hoc” de Wilcoxon (ver detalles en Materiales y métodos).
Hubo correlaciones negativas débiles entre el IPPN y la riqueza de aves de pastizal en los periodos de 1930-1964 (rs = -0.1553, p = 0.0400) y 1965-1981 (rs = -0.1784, p = 0.0100). Sin embargo, no se encontró una correlación significativa entre ambas variables (rs = 0.0321, p = 0.6600) en el periodo de 1982-2019. La proyección de IPPN sobre la región muestra que durante el periodo de 1930-1964, el ensamble regional de pastos estaba conformado principalmente por pastos nativos, en contraste con una reducida prevalencia de pastos nativos para el periodo de 1982-2019 (fig. 4).
Finalmente, los NMDS revelaron una variación en la composición y riqueza regional del ensamble de especies tanto de aves como de pastos nativos y no nativos entre los periodos estudiados (fig. 5). Se observó una discontinuidad en la composición de especies de aves de pastizal a lo largo del tiempo, con una marcada contracción durante el periodo de 1965-1981 y una distribución más dispersa en el periodo de 1982-2019, indicando cambios abruptos en la estructura del ensamble (fig. 5a). En contraste, se observó un cambio gradual en la composición de especies de pastos nativos, con un incremento en la distribución del ensamble en varios sitios de la región con una posible contracción entre periodos (fig. 5b). Por último, se observó un marcado aumento en la composición del ensamble de pastos no nativos, especialmente notable durante el periodo de 1982-2019 (fig. 5c). Este patrón de cambio confirma la expansión significativa del ensamble de pastos no nativos en comparación con los periodos anteriores, en el mismo sentido que la proyección del IPPN para el último periodo (fig. 4). Estos resultados sugieren que el periodo de 1982-2019 muestra cambios en el ensamble de especies respecto a los otros periodos en términos del IPPN y la riqueza de especies. Sin embargo, esta tendencia no se mantuvo de manera consistente en el último periodo.
Discusión
Este estudio representa un acercamiento a escala regional sobre la influencia de los pastos no nativos en los pastizales del Desierto Chihuahuense, sugiriendo cambios en la composición general de las aves de pastizal, atribuibles al considerable cambio en la riqueza de especies y composición taxonómica de los pastos nativos influenciados por los procesos agropecuarios a lo largo del tiempo. Esto no involucra únicamente esta región, ya que debido a su conectividad, es fundamental para las aves migratorias provenientes de las praderas templadas y de pastos mixtos de las Grandes Llanuras Centrales de Norteamérica (Comer et al., 2018). Aunado a lo anterior, en esta región se han identificado procesos de diversificación y dispersión de diversos grupos de vertebrados terrestres y de plantas vasculares (Savage, 1982). En cuanto a las dinámicas ecológicas, estos hábitats también son importantes para diversas especies de animales, como el perrito de las praderas de cola negra (Cynomys ludovicianus), considerada especie clave en la dinámica de pastizales del Desierto Chihuahuense (Detling, 2013). Nuestro estudio aporta evidencia sobre cómo la implementación histórica de políticas públicas pudo modelar de forma positiva la diversidad beta de pastos no nativos y negativamente para los pastos nativos.
Los índices de disimilitud de diversidad βsor (tabla 1) revelaron que los pastos nativos y no nativos están caracterizados por un marcado reemplazo, que se explica por una ausencia de anidamiento a lo largo de los 3 periodos analizados. En cambio, las aves de pastizal cambian este patrón solo en el último periodo al aumentar el anidamiento. Este patrón sugiere que el impacto de las diferentes políticas de aprovechamiento de pastizales a lo largo del tiempo puede influir en la diversidad beta a nivel regional. El reemplazo de especies de pastos nativos y no nativos puede estar más vinculado a eventos de manejo que varían de manera diferencial en cada periodo (Chauvet-Sánchez, 1999; Hoth, 2012), además de otros procesos como los gradientes ambientales (Baselga, 2010).
Figura 4. Proyección del índice de prevalencia de pastos nativos (IPPN) sobre los sitios para cada periodo. La escala de colores corresponde a los valores de IPPN. Valores de 0 indican ensambles dominados completamente por pastos no nativos y 1 cuando dominan completamente los pastos nativos.
Por otro lado, los valores constantes de reemplazo en los 2 tipos de pastos a lo largo del tiempo, no necesariamente se asocian con procesos de homogeneización biótica, debido a la pérdida de especies de plantas nativas frente a las no nativas (Alignier y Baudry, 2016). Aunque esto puede ocurrir en un nivel alfa local, el nivel beta regional es imperceptible, como puede ser nuestro caso. Por ejemplo, se ha observado que los cambios en la diversidad taxonómica de pastizales a nivel alfa local se asocian con la presión por pastoreo, mientras que un nivel beta regional, la diversidad filogenética se asocia con gradientes ambientales, los cuales corresponden a procesos históricos y evolutivos (Wang et al., 2019). Aunque la diversidad filogenética no fue objeto de nuestro estudio, esta observación nos ayuda a entender por qué en nuestros conjuntos de especies no se logran apreciar cambios considerables a lo largo del tiempo, puesto que los periodos de estudio son relativamente cortos históricamente. En el caso de las aves de pastizal, el patrón de diversidad beta sugiere una homogenización de las comunidades, atribuible a la disminución de la disimilitud en el último periodo. Esto indica que las diferencias en la riqueza de especies entre los sitios también han disminuido, lo cual puede atribuirse al incremento del patrón de anidamiento a lo largo del tiempo detectado desde el periodo de 1965-1981. Estas evidencias pueden estar influenciadas por el incremento de la presión debido a la expansión de la ganadería a partir de 1965 (Chauvet-Sánchez, 1999; Hoth, 2012), ya que desde entonces existía un considerable sobrepastoreo de los pastizales del norte del país (CFAN, 1965).
Figura 5. Análisis de escalamiento multidimensional no métrico (NMDS) de la composición de especies de a) aves de pastizal, b) pastos nativos y c) pastos no nativos. Los polígonos dentro de cada gráfico corresponden al espacio que ocupa la composición de especies en 2 dimensiones.
Periodo de 1930-1964
Nuestros resultados evidenciaron una mayor estabilidad en la riqueza estimada de aves de pastizal con respecto de los pastos nativos y no nativos en la región durante este periodo. Esto puede atribuirse en gran parte al amplio conocimiento taxonómico de las aves en México (Navarro-Sigüenza et al., 2014), pero también a que la selección de especies de aves de nuestro universo de análisis fue restringido y limitado a aquellas que dependen del pastizal para eventos clave de su ciclo de vida. Por otro lado, los pastos nativos tuvieron una mejor representación con respecto a los pastos no nativos. Al examinar la proyección del IPPN y los NMDS (figs. 4, 5b), es claro que la región estaba predominantemente conformada por ensambles de pastos nativos. La poca representación del ensamble de pastos no nativos pudo deberse a que algunas de las introducciones se dieron desde inicios del siglo XX, al ser originalmente introducidas en el suroeste de EUA (Herrera, 2001), por lo que su presencia pudo haberse pasado por alto en este periodo.
Se debe tener en cuenta que durante las décadas de 1930 y 1940, los esfuerzos gubernamentales estaban más centrados en establecer la tenencia de la tierra entre propiedad comunal y propiedad privada (González-Navarro, 1969), así como en recuperar los niveles de producción ganadera previos a la revolución de 1910 (de S. Lopes, 2008). La correlación significativa del IPPN y la riqueza de aves de pastizal, aunque baja y negativa, sugiere que el periodo en que se tiene la mayor prevalencia por parte de pastos nativos influyó poco sobre la riqueza de aves de pastizal del Desierto Chihuahuense. Se debe tener en cuenta que se introdujeron especies de pastos de manera directa en la región a partir de 1956 con la intención de mejorar la producción de forraje para el ganado por parte de la Oficina de Estudios Especiales del Gobierno de México (Ortega et al., 2013). Como incentivo adicional, durante este periodo se logró la consolidación de la práctica veterinaria pecuaria a nivel nacional con la erradicación de la fiebre aftosa en 1956 (Chauvet-Sánchez, 1999). Estos factores serían fundamentales para estimular la producción cárnica dentro de zonas de pastizales y serían la antesala de la expansión de pastos no nativos dentro del Desierto Chihuahuense.
Periodo de 1965-1981
La riqueza de especies estimada para el periodo 1965-1981 muestra que es cuando se detecta una mayor presencia de pastos no nativos en el Desierto Chihuahuense. Sin embargo, esto se refleja mínimamente en el IPPN (fig. 4) y en los análisis NMDS correspondientes a pastos no nativos. No obstante, se pudo observar que el ensamble de pastos en la región ya no está conformado únicamente por pastos nativos en todos los sitios (fig. 5b, c). Por su parte, el ensamble de aves de pastizal exhibe a nivel regional una contracción de su NMDS (fig. 5a), lo que implica una menor riqueza de aves de pastizal en varios sitios con respecto al periodo anterior.
Lo antes mencionado y la correlación negativa entre la riqueza de las aves de pastizal con el IPPN sugiere que durante el auge ganadero entre 1965 y 1981, se desencadenó un efecto que favoreció en algunos sitios la presencia de pastos no nativos, mientras que para las aves sucedió lo contrario. Esto coincide con lo observado en los pastizales centrales de EUA, donde la disminución de la diversidad de aves de tierras de cultivo se correlacionó con cambios significativos en las prácticas agrícolas entre 1966 y 1980 (Stanton et al., 2018). Además, por monitoreos estandarizados en gradientes de pastizal nativo en EUA (Wiens, 1973), se sabe que el grupo de aves de pastizal presentó la mayor pérdida poblacional atribuible al incremento de la agricultura y la urbanización en zonas de pastizal desde la década de 1970 (Rosenberg et al., 2019). Durante este periodo, varias zonas de pastizal sobrepastoreadas en el Desierto Chihuahuense presentaban erosión leve o avanzada, lo que provocó pérdida de hábitat (CFAN, 1965; Royo et al., 2005). En los últimos años de este periodo, comienzan a aparecer investigaciones que analizan el impacto de estas especies como malezas nocivas sobre el hábitat original (Espinosa-García y Villaseñor, 2017). Esto pudo ser una respuesta a la permisiva explotación de los pastizales durante la ganaderización de la agricultura en varias zonas de pastizal para la producción cárnica (Chauvet-Sánchez, 1999), incluido el Desierto Chihuahuense. Los pastos nativos parecen responder de manera diferente, ya que los NMDS (fig. 5b) muestran que con el tiempo se tiene una mejor representación del ensamble de especies al ir incrementado entre las 2 dimensiones, pese a que la producción cárnica durante el auge ganadero se mantuvo constante hasta la apertura comercial con el TLCAN en 1992 (Chauvet-Sánchez, 1999). Estos pueden ser efectos a largo plazo, atribuibles al auge ganadero (Chauvet-Sánchez, 1999), cuyo uso como recurso pudo haber sido generalizado y no exclusivo para el consumo del ganado.
Periodo de 1982-2019
Finalmente, la diversidad de especies observada en el periodo de 1982-2019 siguió la tendencia del periodo anterior siendo más alta en pastos nativos, seguida de pastos no nativos y aves de pastizal. Sin embargo, los pastos no nativos empiezan a alcanzar una estabilidad para el final del periodo, lo que puede ser resultado de la colaboración entre EUA y México para la conservación de los pastizales, así como del mejoramiento de las prácticas ganaderas dentro del Desierto Chihuahuense (Hoth, 2012). Pese a esto, la riqueza de pastos no nativos ha llegado a representar poco más de la tercera parte de la totalidad de especies de pastos que se pueden encontrar dentro del Desierto Chihuahuense.
Las curvas para los 3 periodos dentro de toda la región en general revelan el importante esfuerzo de registro taxonómico que se viene llevando desde principios del siglo XX, no solo en la región sino en todo territorio mexicano (Llorente-Bousquets y Ocegueda, 2008). Todas las pruebas “post-hoc” evidencian las discrepancias de este periodo con respecto a los anteriores en términos de riqueza de los 3 conjuntos de especies, así como del IPPN. No obstante, es importante considerar, sobre todo para las aves de pastizal, la mayor densidad de registros en la porción territorial norteamericana lo que pudo influir en que este periodo difiera en comparación con los anteriores. Sin embargo, la ausencia de correlación entre la riqueza de aves y el IPPN exhibe que la representación del ensamble de aves de pastizal no es una variable relacionada con el comportamiento del ensamble de pastos nativos. Esto sugiere la ausencia de un efecto sobre la riqueza de aves por la expansión de los pastos no nativos, aunque se ha detectado que los ensambles de aves presentan frecuentemente cambios en la abundancia relativa de las especies, pero no en la riqueza, en zonas homogenizadas por pastos no nativos (Harris et al., 2019), especialmente relacionados al reordenamiento de las abundancias y no al recambio en la riqueza de especies (Jones et al., 2017; Rosenberg et al., 2019).
La falta de correlación entre la riqueza de aves y el IPPN podría deberse a: 1) que las especies de aves tienen una mayor capacidad de persistir en cualquiera de las configuraciones de pastizal presentes dentro de la región (Ellis-Felege et al., 2013); 2) que su distribución es más amplia de la que abarca nuestra resolución, debido a que la región tiene conectividad con pastizales norteamericanos (Vickery et al., 1999) y 3) finalmente porque son un grupo biológico con alta capacidad de movilidad dentro de la región (Comer et al., 2018). La proyección del IPPN (fig. 4) y los NMDS correspondientes a pastos nativos y no nativos (fig. 5b, c) sugieren que el ensamble de pastos no nativos se encuentra en prácticamente los mismos sitios de pastizal nativo. Es posible que los pastos no nativos se hayan visto influenciados positivamente debido a que la constante degradación de los pastizales en la región por sobrepastoreo del periodo anterior, contribuyó a la expansión regional y que en parte, nuestros resultados son un reflejo de la enorme fragmentación del hábitat (Hoth, 2012).
Por otro lado, los esfuerzos de conservación en varias zonas de pastizal del Desierto Chihuahuense durante el periodo más reciente (APCP, 2010; Aguirre et al., 2007), en un inicio no fueron especialmente selectivos sobre las especies de pastos que conforman el hábitat, pudiendo contribuir al incremento en la riqueza de especies, tanto de pastos nativos como no nativos. En este sentido, una parte considerable del ensamble de pastos no nativos presentes en la región pudieron originarse de pastizales nativos degradados o bien de la deforestación de zonas con arbustos y árboles (Buisson et al., 2022). Por lo tanto, las especies de pastos no nativos se establecieron aleatoriamente en toda la región a partir de tierras agrícolas (Rzedowski y Calderón, 1990; Rzedowski et al., 1995). Esta expansión produjo ensambles de pastos más reducidos en cada sitio en comparación con zonas con pastos nativos (Flanders et al., 2006), pero que finalmente, en la actualidad se deben considerar como parte de la flora de la región (Brown y Makings, 2014).
Nuestros resultados sugieren que la introducción de especies de pastos no nativos no fue un evento único y que el aumento en la presencia de estas especies, con el paso del tiempo, fue en los mismos sitios en los que se detectaron los pastos nativos, lo que denota la necesidad de priorizar los esfuerzos de conservación selectivos para los pastos nativos. Además, se requiere analizar si la cobertura de otros tipos de hábitat, como el incremento de matorrales espinosos sobre la configuración de pastizales en el Desierto Chihuahuense, ha cambiado dentro de la región.
Nuestros resultados indican cambios en la diversidad beta de aves de pastizal, de pastos nativos y de pastos no nativos a nivel regional. Considerando la resolución espacial y temporal utilizada en este estudio, nuestros análisis sugieren que estos cambios pueden ser atribuibles a las diferentes políticas económicas de cada periodo. No obstante, se destaca la importancia de analizar a las especies de pastos no nativos en un nivel de diversidad alfa, con énfasis en una posible respuesta de los ensambles de aves de pastizal, posiblemente asociada a las particularidades de cada comunidad. También subrayamos la necesidad de identificar sitios prioritarios para la gestión y conservación selectiva de pastos nativos en zonas de pastizal con el objetivo de mitigar posibles alteraciones en el ensamble de aves de pastizal en la región.
Agradecimientos
El presente artículo forma parte de los requisitos para la obtención del grado de Doctor de MP-M en el programa de posgrado de Ciencias Biológicas y de la Salud de la Universidad Autónoma Metropolitana, quien cuenta con una beca del Conahcyt (CVU 718731). Agradecemos el apoyo financiero del programa PAPIIT-UNAM IN214621 (a AGN-S) y Proyecto UAM 143.05.27 (a PLV). A Alejandro Gordillo, Alexander Llanes, Ronald Fernández, Reinhard Matadamas, Rodolfo Flores, Itzel Estrada, José Zazueta, Carlos Lara y dos revisores anónimos, por su apoyo logístico y valiosos comentarios durante el desarrollo de esta investigación. LES-R agradece a DGAPA-UNAM por la beca posdoctoral.
Referencias
Aguirre, C., Hoth, J. y Lafón, A. (Eds.). (2007). Estrategia para la Conservación de Pastizales del Desierto Chihuahuense (ECOPAD). Repórte técnico. https://doi.org/10.13140/RG.2. 2.36081.74089
Alignier, A. y Baudry, J. (2016). Is plant temporal beta diversity of field margins related to changes in management practices? Acta Oecologica, 75, 1–7. http://dx.doi.org/10.1016/j.actao. 2016.06.008
Almeida-Neto, M., Frensel D. M. B. y Ulrich, W. (2011). Rethinking the relationship between nestedness and beta diversity: a comment on Baselga (2010). Global Ecology and Biogeography, 21, 772–777. https://doi.org/10.1111/j. 1466-8238.2011.00709.x
APCP (Áreas Prioritarias de Conservación Pastizal). (2010). Comisión para Cooperación Ambiental (CCA). http://www.cec.org/es/atlas-ambiental-de-america-del-norte/areas-pri oritarias-de-conservacion-pastizales-2010/
Baselga, A. (2010). Partitioning the turnover and nestedness components of beta diversity. Global Ecology and Biogeography, 19, 134–143. https://doi.org/10.1111/j.1466-82 38.2009.00490.x
Baselga, A. y Orme, C. D. L. (2012). betapart: an R package for the study of beta diversity. Methods in Ecology and Evolution, 3, 808–812. https://doi.org/10.1111/j.2041-210X.2012.00224.x
Baselga, A., Orme, D., Villeger, S., De Bortoli, J., Leprieur, F., Logez, M. et al. (2018). Package ‘betapart’: Partitioning Beta Diversity into Turnover and Nestedness Components. Ver 1.5. 1. CRAN.
Brennan, L. A. y Kuvlesky Jr., W. P. (2005). North American grassland birds: an unfolding conservation crisis? The Journal of Wildlife Management, 69, 1–13. https://doi.org/10.2193/0022-541X(2005)069<0001:NAGBAU>2.0.CO;2
Brown, D. E. y Makings, E. (2014). Desert plants. Tucson:The University of Arizona for the Boyce Thompson Arboretum.
Buisson, E., Archibald, S., Fidelis, A. y Suding, K. N. (2022). Ancient grasslands guide ambitious goals in grassland restoration. Science, 377, 594–598. https://doi.org/10.1126/science.abo4605
Calderón-Patrón, J. M. y Moreno, C. E. (2019). Diversidad beta basada en índices de disimilitud: Su partición en componentes de recambio y diferencias en riqueza. En C. E. Moreno (Ed.), La biodiversidad en un mundo cambiante: fundamentos teóricos y metodológicos para su estudio (pp. 203–222). Ciudad de México: Universidad Autónoma del Estado de Hidalgo/ Libermex.
Guo, B., Cortázar-Martínez, A. y Ayala-Garay, A. V. (2010). Competitividad de la ganadería bovina de carne en México. En B. A. Cavallotti-Vázquez, C. F. Marcof-Álvarez y B. Ramírez-Valverde (Eds.), Los grandes retos para la ganadería: hambre, pobreza y crisis ambiental. (pp. 3–14). Estado de México: Universidad Autónoma Chapingo. México.
Cervantes-Sánchez, J. M. y Román de Carlos, A. M. (2001). Consecuencias de la epizootia de la fiebre aftosa en la medicina veterinaria y la zootecnia mexicanas (1946–1955). Imagen Veterinaria, 1, 17–20.
CFAN (Consejo de Fomento Agropecuario del Norte de México). (1965). Estudio integral preliminar sobre la ganadería de la zona norte de la República Mexicana. Tomo IV. Ciudad de México: Consejo de Fomento Agropecuario del Norte de México/ COPARMEX.
Challenger, A. (1998). Utilización y conservación de los ecosistemas terrestres de México: pasado, presente y futuro. Comisión Nacional para el Conocimiento y Uso de la Biodiversidad/ Instituto de Biología, UNAM/ Agrupación Sierra Madre. Ciudad de México: Comisión Nacional para el Conocimiento y Uso de la Biodiversidad.
Challenger, A. y Soberón, J. (2009). Los ecosistemas terrestres. En J. Soberón, G. Halffter y J. Llorente-Bousquets (Eds.), Capital natural de México, Vol. 1. Conocimiento actual de la biodiversidad (pp. 88–105). Ciudad de México: Comisión Nacional para el Conocimiento y Uso de la Biodiversidad.
Chamberlain, D. E., Fuller, R. J., Bunce, R. G., Duckworth, J. C., y Shrubb, M. (2000). Changes in the abundance of farmland birds in relation to the timing of agricultural intensification in England and Wales. Journal of Applied Ecology, 37, 771–788. https://doi.org/10.1046/j.1365-2664.2000.00548.x
Chaneton, E. J., Perelman, S. B., Omacini, M. y León, R. J. (2002). Grazing, environmental heterogeneity, and alien plant invasions in temperate Pampa grasslands. Biological Invasions, 4, 7–24.
Chauvet-Sánchez, M. (1999). La ganadería bovina de carne en México: del auge a la crisis. México D.F.: Universidad Autónoma Metropolitana.
Chesser, R. T., Billerman, S. M., Burns, K. J., Cicero, J. C., Dunn, L., Hernández-Baños, B. E. et al. (2022). Check-list of North American birds. American Ornithological Society. Recuperado 19 diciembre, 2022 de: https://checklist.americanornithology.org/taxa/
Colwell, R. K. (2013). Estimates: statistical estimation of species richness and shared species from samples. Version 9. User’s Guide and Application.
Comer, P. J., Hak, J. C., Kindscher, K., Muldavin, E. y Singhurst, J. (2018). Continent-scale landscape conservation design for temperate grasslands of the Great Plains and Chihuahuan Desert. Natural Areas Journal, 38, 196–211. https://doi.org/10.3375/043.038.0209
Davis, M. A. (2003). Biotic globalization: does competition from introduced species threaten biodiversity? Bioscience, 53, 481–489. https://doi.org/10.1641/0006-3568(2003)053[0481: BGDCFI]2.0.CO;2
del Val, E., Balvanera, P., Castellarini, F., Espinosa-García, F. J., Murguía, M. y Pacheco, C. (2015). Identifying areas of high invasion risk: a general model and an application to Mexico. Revista Mexicana de Biodiversidad, 86, 208–216. https://doi.org/10.7550/rmb.44743
Desmond, M. y Montoya, J. A. (2006). Status and distribution of Chihuahuan Desert grasslands in the United States and Mexico. En X. Basurto y D. Hadley (Eds.), Grasslands ecosystems, endangered species, and sustainable ranching in the Mexico-US borderlands: Conference proceedings. RMRS-P-40 (pp. 17–25). Fort Collins, CO: US Department of Agriculture, Forest Service, Rocky Mountain Research Station.
Detling, J. K. (2013). Do prairie dog compete with livestock? En J. Hoogland (Ed.), Conservation of the black-tailed prairie dog: saving North America’s western grasslands (pp. 65–88). Washington D.C.: Island Press.
Ellis-Felege, S. N., Dixon, C. S. y Wilson, S. D. (2013). Impacts and management of invasive cool-season grasses in the Northern Great Plains: challenges and opportunities for wildlife. Wildlife Society Bulletin, 37, 510–516. https://doi.org/10.1002/wsb.321
Eskelinen, A. y Harrison, S. (2015). Erosion of beta diversity under interacting global change impacts in a semi-arid grassland. Journal of Ecology, 103, 397–407. https://doi.org/10.1111/1365-2745.12360
Espinosa-García, F. J. y Villaseñor, J. L. (2017). Biodiversity, distribution, ecology and management of non-native weeds in Mexico: a review. Revista Mexicana de Biodiversidad, 88, 76–96. https://doi.org/10.1016/j.rmb.2017.10.010
Flanders, A. A., Kuvlesky Jr, W. P., Ruthven III, D. C., Zaiglin, R. E., Bingham, R. L., Fulbright, T. E. et al. (2006). Effects of invasive exotic grasses on south Texas rangeland breeding birds. The Auk, 123, 171–182. https://doi.org/10.1093/auk/ 123.1.171
George, A. D., O’Connell, T. J., Hickman, K. R. y Leslie Jr, D. M. (2013). Food availability in exotic grasslands: a potential mechanism for depauperate breeding assemblages. The Wilson Journal of Ornithology, 125, 526–533. https://doi.org/10.1676/13-003.1
Gibson, D. J. (2009). Grasses and grassland ecology. Nueva York: Oxford University Press.
González-Medrano, F. (2012). Las zonas áridas y semiáridas de México y su vegetación. México D.F.: Instituto Nacional de Ecología.
González-Navarro, M. (1969). La tenencia de la tierra en México. Cahiers du monde hispanique et luso-brésilien, 12, 115–134.
Govaerts, R. (2022). The World Checklist of Vascular Plants (WCVP). En O. Bánki, Y. Roskov, M. Döring, G. Ower, L. Vandepitte, D. Hobern et al. (Eds.), Catalogue of Life Checklist (10.0). Kew: The Royal Botanic Gardens. https://doi.org/10.48580/dfqt-4nz
Guo, Q., Qian, H., Ricklefs, R. E. y Xi, W. (2006). Distributions of exotic plants in eastern Asia and North America. Ecology Letters, 9, 827–834. https://doi.org/10.1111/j.1461-0248.2006. 00938.x
Hamilton, J. G., Holzapfel, C. y Mahall, B. E. (1999). Coexistence and interference between a native perennial grass and non-native annual grasses in California. Oecologia, 121, 518–526. https://doi.org/10.1007/s004420050958
Harris, M. A., Greve, M., Voysey, M. D. y Jamison, S. L. (2019). Changes in bird assemblages because of vegetation homogenisation in communal livestock systems. Koedoe: African Protected Area Conservation and Science, 61, 1–18. https://doi.org/10.4102/koedoe.v61i1.1543
Hejda, M., Pyšek, P. y Jarošík, V. (2009). Impact of invasive plants on the species richness, diversity and composition of invaded communities. Journal of Ecology, 97, 393–403. https://doi.org/10.1111/j.1365-2745.2009.01480.x
Herrera, Y. (2001). Las gramíneas de Durango. Durango, México: Instituto Politécnico Nacional/ Comisión Nacional para el Conocimiento y Uso de la Biodiversidad/ Editorial Filo de Agua.
Hollander, M. y Wolfe, D. A. (1973). Nonparametric statistical methods. New York: John Wiley and Sons.
Hoth, J. (2012). Buenas prácticas ganaderas en México. Montreal: Comisión para la Cooperación Ambiental de América del Norte (CCA).
Joner, F., Giehl, E. L. y Pillar, V. D. (2021). Functional and taxonomic alpha and beta diversity responses to burning grasslands in southern Brazil. Journal of Vegetation Science, 32, e13060. https://doi.org/10.1111/jvs.13060
Jones, S. K., Ripplinger, J. y Collins, S. L. (2017). Species reordering, not changes in richness, drives long-term dynamics in grassland communities. Ecology Letters, 20, 1556–1565. https://doi.org/10.1111/ele.12864
Kloke, J., McKean, J. W. y McKean, J. W. (2015). Nonparametric statistical methods using R. Boca Raton: CRC Press.
Legendre, P. (2019). A temporal beta-diversity index to identify sites that have changed in exceptional ways in space–time surveys. Ecology and Evolution, 9, 3500–3514. https://doi.org/10.1002/ece3.4984
Levandoski, G. y Panjabi, A. (2014). Las aves de pastizal. En Conabio (Ed.), La biodiversidad en Chihuahua: estudio de estado (pp. 128–134). México D.F.: Comisión Nacional para el Conocimiento y Uso de la Biodiversidad.
Llanes-Quevedo, A., Sánchez-Ramos, L. E. y Navarro-Sigüenza, A. G. (2024). Patrones históricos y actuales de diversidad y relaciones biogeográficas de la avifauna residente de los bosques tropicales de México. Revista Mexicana de Biodiversidad, 95, e955341. https://doi.org/10.22201/ib.2007 8706e.2024.95.5341
Llorente-Bousquets, J. y Ocegueda, S. (2008). Estado del conocimiento de la biota. En Conabio (Ed.), Capital natural de México, Vol. I. Conocimiento actual de la biodiversidad (pp. 283–322). México D.F.: Comisión Nacional para el Conocimiento y Uso de la Biodiversidad.
Macías-Duarte, A., Montoya, A. B., Méndez-González, C. E., Rodríguez-Salazar, J. R., Hunt, W. G. y Krannitz, P. G. (2009). Factors influencing habitat use by migratory grassland birds in the state of Chihuahua, Mexico. The Auk, 126, 896–905. https://doi.org/10.1525/auk.2009.08251
Macías-Duarte, A., Panjabi, A. O., Strasser, E. H., Levandoski, G. J., Ruvalcaba-Ortega, I., Doherty, P. F. et al. (2017). Winter survival of North American grassland birds is driven by weather and grassland condition in the Chihuahuan Desert. Journal of Field Ornithology, 88, 374–386. https://doi.org/10.1111/jofo.12226
Melgoza-Castillo, A., Balandrán Valladares, M. I., Mata-González, R. y Pinedo Álvarez, C. (2014). Biología del pasto rosado Melinis repens (Willd.) e implicaciones para su aprovechamiento o control: Revisión. Revista Mexicana de Ciencias Pecuarias, 5, 429–442.
Navarro-Sigüenza, A. G., Rebón-Gallardo, M. F., Gordillo-Martínez, A., Townsend-Peterson, A., Berlanga-García, H. y Sánchez-González, L. A. (2014). Biodiversidad de aves en México. Revista Mexicana de Biodiversidad, 85 (Suplem.), S476–S495. https://doi.org/10.7550/rmb.41882
Ortega, S. J. A., Ibarra-Flores, F. A., Melgoza, A., González-Valenzuela, E. A., Martin-Rivera, M. H., Ávila-Curiel, J. M. et al. (2013). Exotic grasses and wildlife in northern Mexico. Wildlife Society Bulletin, 37, 537–545. https://doi.org/10.1002/wsb.325
Palacio, F. X., Apodaca, M. J. y Crisci, J. V. (2020). Análisis multivariado para datos biológicos: teoría y su aplicación utilizando el lenguaje R. Ciudad Autónoma de Buenos Aires: Fundación de Historia Natural Félix de Azara.
Pavlacky Jr, D. C., Green, A. W., George, T. L., Iovanna, R., Bartuszevige, A. M., Correll, M. D. et al. (2022). Landscape-scale conservation mitigates the biodiversity loss of grassland birds. Ecological Applications, 32, e2548. https://doi.org/10.1002/eap.2548
Pyšek, P., Jarošík, V., Hulme, P. E., Pergl, J., Hejda, M., Schaffner, U. et al. (2012). A global assessment of invasive plant impacts on resident species, communities and ecosystems: the interaction of impact measures, invading species’ traits and environment. Global Change Biology, 18, 1725–1737. https://doi.org/10.1111/j.1365-2486.2011.02636.x
Oksanen, J., Blanchet, F. G., Friendly, M., Kindt, R., Legendre, P., McGlinn, D. et al. (2022). Vegan. Community Ecology Package: Ordination, Diversity and Dissimilarities. 3.4.
Qian, H. y Ricklefs, R. E. (2006). The role of exotic species in homogenizing the North American flora. Ecology Letters, 9, 1293–1298. https://doi.org/10.1111/j.1461-0248. 2006.00982.x
Qian, H. (2008). A latitudinal gradient of beta diversity for exotic vascular plant species in North America. Diversity and Distributions, 14, 556–560. https://doi.org/10.1111/j.1472- 4642.2008.00466.x
Rojas-Soto, O. R., Alcántara-Ayala, O. y Navarro-Sigüenza, A. G. (2003). Regionalization of the avifauna of the Baja California Peninsula, Mexico: a parsimony analysis of endemicity and distributional modelling approach. Journal of Biogeography, 30, 449–461. https://doi.org/10.1046/j.1365- 2699.2003.00836.x
Rosenberg, K. V., Dokter, A. M., Blancher, P. J., Sauer, J. R., Smith, A. C., Smith, P. A. et al. (2019). Decline of the North American avifauna. Science, 366, 120–124. https://doi.org/ 10.1126/science.aaw1313
Royo, M., Melgoza, A., Santos, J. S., Carrillo, R., Jurado, P., Gutiérrez, R. et al. (2005). La salud de los pastizales medianos en los estados de Chihuahua y Zacatecas. II Simposio Internacional de Manejo de Pastizales. Memorias. Zacatecas, México.
Ruvalcaba-Ortega I. y Panjabi, A. O. (2018). Aves de pastizal del Desierto Chihuahuense. En Conabio (Ed.), La biodiversidad en Coahuila. Estudio de Estado, vol. II. (pp. 375–384). México D.F.: Comisión Nacional para el Conocimiento y Uso de la Biodiversidad/ Gobierno del Estado de Coahuila de Zaragoza.
Rzedowski, J. y Calderón, de R. G. (1990). Nota sobre el elemento africano en la flora adventicia de México. Acta Botanica Mexicana, 12, 21–24. https://doi.org/10.21829/abm12.1990.602
Rzedowski, J., Calderón, de R. G. y Galván, R. (1995). Los pastizales calcífilos del estado de Guanajuato. Flora del Bajío y de Regiones Adyacentes. Fascículo Complementario IX. Pátzcuaro, Mich.: Instituto de Ecología, A.C. – Centro Regional del Bajío.
de S. Lopes, M. A. (2008). Revolución y ganadería en el norte de México. Historia Mexicana, 57, 863–910. https://www.jstor.org/stable/25139806
Sánchez-Ken, J. G., Zita-Padilla, G. A. y Mendoza-Cruz, M. (2012). Catálogo de las gramíneas malezas nativas e introducidas de México. México D.F.: Conacofi.
Sánchez-Ramos, L. E., Gordillo-Martínez, A., Gutiérrez-Arellano, C. R., Kobelkowsky-Vidrio, T., Ríos-Muñoz, C. A. y Navarro-Sigüenza, A. G. (2018). Bird diversity patterns in the Nuclear Central American Highlands: a conservation priority in the Northern Neotropics. Tropical Conservation Science, 11, 1940082918819073. https://doi.org/10.1177/1940082918819073
Savage, J. M. (1982). The enigma of the Central American herpetofauna: dispersals or vicariance? Annals of the Missouri Botanical Garden Press, 69, 464–547. https://doi.org/10.2307/2399082
Stanton, R. L., Morrissey, C. A. y Clark, R. G. (2018). Analysis of trends and agricultural drivers of farmland bird declines in North America: A review. Agriculture, Ecosystems & Environment, 254, 244–254. https://doi.org/10.1016/j.agee. 2017.11.028
Szentes, S., Sutyinszki, Z., Szabó, G., Zimmermann, Z., Házi, J., Wichmann, B. et al. (2012). Grazed Pannonian grassland beta-diversity changes due to C4 yellow bluestem. Central European Journal of Biology, 7, 1055–1065.
Valenzuela-Núñez, L. M., Mojica-Guerrero, A. S., González-Barrios, J. L. y Trucíos-Caciano, R. (2009). Evolución del matorral en el sur del Área Natural Protegida Sierra de Lobos, Guanajuato. Tecnociencia Chihuahua, 3, 131–137.
Vellend, M. (2010). Conceptual synthesis in community ecology. The Quarterly Review of Biology, 85, 183–206. https://doi.org/10.1086/652373
Vickery, P. D., Tubaro, P. L., Cardoso-da Silva, J. M., Peterjohn, B. G., Herkert, J. R. y Cavalcanti, R. B. (1999). Conservation of grassland birds in the Western Hemisphere. Studies in Avian Biology, 19, 2–26.
Wang, Y., Wang, J., Chen, C., Li, J. y Chu, J. (2019). Grazing plays an important role in structuring alpha and beta components of taxonomic, functional, and phylogenetic diversity in semiarid sandy land of northern China. Global Ecology and Conservation, 20, e00790. https://doi.org/10.1016/j.gecco. 2019.e00790
Weaver, T., Payson, E. M. y Gustafson, D. L. (1996). Prairie ecology —the shortgrass prairie. En F. B. Samson y F. L. Knopf (Ed.), Prairie Conservation. Washington D.C.: Island Press.
Wied, J. P., Perotto-Baldivieso, H. L., Conkey, A. A., Brennan, L. A. y Mata, J. M. (2020). Invasive grasses in South Texas rangelands: historical perspectives and future directions. Invasive Plant Science and Management, 13, 41–58.
Wiens, J. A. (1973). Pattern and process in grassland bird communities. Ecological Monographs, 43, 237–270. https://doi.org/10.2307/1942196
Wiken, E., Jiménez-Nava, F. y Griffith, G. (2011). North American terrestrial ecoregions —Level III. Montreal, Canada: Commission for Environmental Cooperation.
Wright, S. P. (1992). Adjusted p-values for simultaneous inference. Biometrics, 48, 1005–1013. https://doi.org/10.2307/2532694
Zar, J. H. (2010). Biostatistical analysis. Upper Saddle River, New Jersey: Pearson Education Inc.
Żmihorski, M., Pärt, T., Gustafson, T. y Berg, Å. (2016). Effects of water level and grassland management on alpha and beta diversity of birds in restored wetlands. Journal of Applied Ecology, 53, 587–595. https://doi.org/10.1111/1365-2664.12588
Louis C. Bender a, Jon C. Boren b, Shad Cox c, Erik Joaquín Torres-Romero d, e, *
a New Mexico State University, Department of Extension Animal Sciences and Natural Resources, PO Box 30003 MSC 3AE, Las Cruces, New Mexico 88003, USA
b New Mexico State University, Cooperative Extension Service, PO Box 30003 MSC 3AE, Las Cruces, New Mexico 88003, USA
c New Mexico State University, Corona Range and Livestock Research Center, PO Box 392, Corona, New Mexico 88318, USA
d Universidad Politécnica de Puebla, Ingeniería en Biotecnología, Tercer Carril del Ejido, Serrano s/n, San Mateo Cuanalá, Juan C. Bonilla, 72640 Puebla, Mexico
e Tecnológico Nacional de México campus Zacapoaxtla, Subdirección de Investigación y Posgrado, División de Biología, Carretera Acuaco-Zacapoaxtla Km. 8, Col. Totoltepec, 73680 Zacapoaxtla, Puebla, Mexico
Deer in northern temperate environments show behavioral and physiological adaptations to conserve energy during winter, including decreased movements. Whether these behaviors persist in warmer temperate environments such as the arid Southwest has received little consideration. We compared daily movements as estimated by continuous-time movement models and minimum subdaily (4 h) straight-line movements of adult female mule deer between winter and spring-autumn seasons in south-central New Mexico. Deer moved less during winter daily (2.90 vs. 4.34 km/d) and subdaily (302 vs. 409 m). Similarly, for deer for which movement data for successive seasons were available, movements between successive seasons were less during the winter (daily = -1.05 km/d; subdaily = -91 m) than the following or preceding spring-autumn. Our results support conservation of decreased movements during winter in the less extreme winters of the arid Southwest. Because some proximate stimuli (i.e., deep snow, very cold temperatures) associated with energy conservation behaviors are lacking in the arid Southwest, our results further support low forage quality and availability being the primary drivers of this behavior.
Keywords: Energy conservation; Movements; Mule deer; New Mexico
Disminución de los movimientos de las hembras adultas de venado bura durante el invierno en el árido suroeste de América del Norte
Resumen
Los ciervos en entornos templados del norte muestran adaptaciones de comportamiento y fisiológicas para conservar energía durante el invierno, incluyendo una disminución en sus movimientos. Se ha explorado poco si estos comportamientos persisten en ambientes templados más cálidos, como el suroeste árido. Comparamos los movimientos diarios, mediante modelos de movimiento continuo y movimientos mínimos en línea recta subdiarios (4 horas) de hembras adultas de venado bura entre las estaciones de invierno y primavera-otoño en el centro-sur de Nuevo México. Los ciervos se movieron menos durante el invierno, tanto diario (2.90 vs. 4.34 km/día) como subdiario (302 vs. 409 m). Además, para ciervos con datos de movimiento en estaciones sucesivas, los movimientos en invierno fueron menores (diarios = -1.05 km/día, subdiarios = -91 m) en comparación con la primavera-otoño previa o siguiente. Nuestros resultados respaldan la disminución de los movimientos durante el invierno en los inviernos menos extremos del suroeste árido. Dado que algunos estímulos inmediatos (por ejemplo, nieve profunda, temperaturas muy frías) asociados con comportamientos de conservación de energía están ausentes en el suroeste árido, es evidente que nuestros resultados apoyan que la baja calidad y disponibilidad de forraje son los principales factores que impulsan este comportamiento.
Palabras clave: Conservación de energía; Movimientos; Venado bura; Nuevo México
Introduction
Deer in northern temperate environments of North America employ a complex energy conservation strategy during winter, incorporating multiple behavioral and physiological adaptations, including reducing activity (i.e., movements) and limiting feeding while relying on endogenous reserves (Alldredge et al., 1974; Short, 1981; Verme & Ullrey, 1984); growing a highly insulative pelage (Jacobsen, 1980); limiting vascular circulation to the extremities (Parker & Robbins, 1984); and lowering metabolic rate to slow the rate of loss of body reserves (Short, 1981; Silver et al., 1971; Verme & Ullrey, 1984). This strategy is considered primarily an adaptation to conserve energy in response to low forage availability and quality, as well as increased costs of movement associated with snow (Short, 1981; Verme & Ullrey, 1984). Conserving energy by minimizing radiant and convective heat loss was also believed to drive other behaviors such as yarding under dense conifer forest canopies (Marchinton & Hirth, 1984). While initially thought to be a response to extreme cold (Marchinton & Hirth, 1984), yarding likely relates to decreased costs of movement because of reduced snow depths as the presumed temperature-moderating influence of forest canopy (i.e., thermal cover) has been shown to have no real effect on deer condition (Cook et al., 1998; Freddy, 1984). Many of the behavioral aspects (at least) of the winter energy conservation strategy are not invariant, however, and can be affected by proximate stimuli. For example, both movements and feeding periods are reduced less if winter conditions are less severe (Bartmann & Bowden, 1984; Verme & Ullrey, 1984).
Whether these energy conservation behaviors persist in warmer temperate ranges such as the arid southwestern USA and Mexico has received little consideration. In the arid Southwest, deer similarly experience winter seasonality in terms of temperature and precipitation differences (Krausman et al., 1990; McKinney, 2003; Marshal et al., 2008), which affects forage availability and quality (Kemp, 1983; Krausman et al., 1990; McKinney, 2003; Short, 1981). Consequently, mule deer lose most of their endogenous reserves over winter (Bender et al., 2012; Bender & Hoenes, 2017). However, snow is relatively rare and short-lived in much of the arid Southwest, and winter temperatures are higher than in northern environments (Table 1). Therefore, aside from decreased forage availability and quality, many of the potential proximate stimuli (i.e., deep snow, very cold temperatures) associated with energy conservation behaviors are lacking in the arid Southwest. Moreover, because winter is less extreme in terms of minimum temperatures and particularly snowfall, availability of forage may also be less limiting, although forage quality constraints are similarly severe (Bender, 2020; Kemp, 1983; Krausman et al., 1990; McKinney et al., 2003). Consequently, behavioral responses associated with the winter energy conservation strategy may be less pronounced or absent in the arid Southwest.
Table 1
Long-term range of monthly mean high and low temperatures (oC) and monthly snowfall (cm) during Dec.-Feb. and Mar.-Nov. at the Corona Range and Livestock Research Center (CRLRC), Corona, New Mexico USA, and the Cusino Wildlife Research Station, Shingleton, Michigan USA. Cusino was selected as a comparison because of the volume and depth of deer nutritional, physiological, and behavioral research conducted there (Verme & Ullrey, 1984). Also presented are the range of conditions on the CRLRC study area for 2005-2008 study period.
Months
Climatic variable
CRLRC
Cusino
Study
Dec.-Feb.
Mean high temperatures
6.7-8.9
-2.8- -1.7
6.4-13.0
Mean low temperatures
-5.6- -4.4
-11.7- -8.3
-6.3- -1.9
Mean snow accumulations
13-23
69-109
7.3-17.1
Mar.-Nov.
Mean high temperatures
11.7-28.3
1.7-22.8
14.2-29.1
Mean low temperatures
-1.1-13.3
-6.7-13.3
-0.5-13.8
Mean snow accumulations
0-13
0-48
0-5.1
If energy conservation behaviors are maintained in the arid Southwest, mule deer (Odocoileus hemionus) should move less during the winter, conserving body reserves in the face of lower quality and less abundant forage even if the impacts of winter weather are less severe on forage availability and costs of movement. Thus, our goal was to contrast short-term movements between winter and spring-autumn seasons for adult female mule deer in a Chihuahuan desert-short grass prairie habitat in New Mexico, USA to determine whether deer reduce movements during winter as predicted by the winter energy conservation strategy. Specifically, we compared minimum daily and subdaily movement distances of adult female mule deer between winter and spring-autumn.
Materials and methods
Our study was conducted on the Corona Range and Livestock Research Center (CRLRC; 34°15’36” N, 105°24’36” W), an 11,290-ha ranch owned and operated by New Mexico State University and located approximately 22.5 km east of Corona, New Mexico (Fig. 1). CRLRC has an average elevation of 1,900 m asl; mean annual precipitation is 40 cm, 87% of which occurs in the Mar.-Nov. period. Snowfall totals < 74 cm annually. Climate of the CRLRC shows distinct seasonality, although the magnitude of seasonal differences in winter is less than seen in northern temperate deer habitats (Table 1).
Topography of the CRLRC is mostly rolling. Vegetation includes perennial grassland, with scattered sparse to dense pinyon (Pinus edulis) and one-seed juniper (Juniperus monosperma) woodlands and a few shrublands. Free water was abundant and comparably available in both winter and spring-autumn seasons because of numerous permanent water developments, ≥ 1 of which were present within or adjacent to annual home ranges of study deer (Fig. 1). Deer on the CRLRC do not migrate between distinct summer and winter ranges.
We captured and collared ≥ 2.5-year-old female mule deer with GPS/VHF radio-collars (Advanced Telemetry Solution, Asanti, Minnesota, USA) programmed to record a position fix every 4 h, early-December 2005-2007, and April, 2006-2007, as part of a larger study of mule deer ecology including other VHF-only radio-collared individuals (Bender et al., 2011, 2013). Deer were captured using a helicopter by aerial net-gunning or darting with 1.5-1.8 mg of carfentanil citrate and 50-75 mg of xylazine hydrochloride per deer. We aged deer as yearling or adult by tooth wear and replacement (Robinette et al., 1957), determined lactation status (Bender et al., 2011), and treated deer with antibiotics, vitamin E/selenium, vitamin B, and an 8-way Clostridium bacterin to help alleviate capture stress. Following processing, immobilants were antagonized with naltrexone and tolazoline.
We defined seasons as winter = Dec-Feb and spring-autumn = Mar-Nov. These seasons corresponded with both typical seasonal and phenological patterns on the CRLRC and the Chihuahuan desert-short grass prairie habitats of the arid Southwest in general, as well as important periods in the annual cycle of female mule deer in the arid Southwest (Bender et al., 2011, 2012). We estimated daily movements using continuous-time movement modeling (see Fleming et al., 2014, 2016), using the Speed/Distance analysis in ctmmweb (https://ctmm.shinyapps.io/ctmmweb/) (Calabrese et al., 2016, 2021). We used only locations with 3D fixes and DOP < 2, as these had an accuracy of < 3 m in our study area. We also determined minimum subdaily movements, defined as the straight-line distance moved between successive 4 h locations, and calculated seasonal means for each deer.
Figure 1. Topographic hillshade showing locations of annual home ranges of adult female mule deer (Bender et al., 2013), and locations of permanent water sources on the Corona Range and Livestock Research Center (CRLRC), east-central New Mexico, USA.
We compared movement distances (km from continuous-time movement models [ctmms]; m between successive subdaily locations) between seasons using PROC GLIMMIX in SAS 9.4 (SAS, 1988), using individual deer as a random effect. We also compared mean daily and subdaily movements between successive seasons for individual deer for which we had both winter and subsequent spring-autumn data, or spring-autumn and subsequent winter data, available. We determined mean seasonal differences in movement distances for each successive time period for each individual, and used bootstrapping with N = 1,000 iterations to determine the probability that mean movement distances differed seasonally for this subset of data (see Efron & Tibshirani, 1993).
Additionally, because lactating females enter winter in poorer condition than do dry females and condition subsequently converges between the 2 classes over winter (including on the CRLRC; Bender & Hoenes, 2017), lactation status might affect desire or need to forage and thus movements of deer. However, because deer condition was very low on CRLRC during our study (i.e., lactating females were able to accrue only ≤ 5.7% percent body fat annually at the annual peak in late autumn; Bender et al., 2011, 2013), our GPS/VHF collared sample contained ≤ 2 lactating females each year, and thus we were unable to meaningfully include lactation status in our analyses. Consequently, we explored any potential effect of lactation status on movements by determining the percentile movement distances of lactating females relative to the frequency distribution of dry female movement distances to determine whether lactating females were closer to the mean or extremes of the range of dry females.
Lastly, because our GPS collared sample comprised a limited proportion of the overall radio-collared sample, we compared annual, spring-autumn, and winter home range sizes (Bender et al. 2013; N = 18-27 collared females annually) to see whether movements of our GPS sample were representative of radio-collared deer in general, comprised of N = 18-27 VHF-only collared adult females for each season (Bender et al., 2011, 2013). For this we compared annual and seasonal home range sizes of the 2 classes (GPS/VHF and VHF-only) using PROC GLM (SAS, 1988), specifically testing the year × class interaction. We visually located all deer (i.e., both GPS/VHF and VHF-only) via ground tracking of VHF signals a minimum of once per week with additional location emphasis on spring-autumn locations, and mapped locations using the Geographic Information System software package ArcGIS 10.0 (Environmental Systems Research Institute, Redlands, California, USA) (Bender et al., 2011, 2013). We constructed 95% minimum convex polygon (MCP) annual and seasonal home ranges after determining the minimum number of locations to adequately estimate seasonal home range size by plotting size as a function of number of locations (Bender et al. 2013; Kie et al. 1996). For this comparison we used only VHF visual locations of GPS/VHF collared deer so that both GPS/VHF and VHF-only samples were comprised of comparable data.
Results
We collected GPS movement data for 37 seasonal ranges (Table 2), winter 2005-6 through winter 2007-8, from 6-10 GPS/VHF collared adult females annually (mean = 336 and 472 locations per deer for winter and spring-autumn ranges, respectively). For all deer, the OUF-anisotropic movement model provided the best fit (i.e., AICc < 2 vs. all other models) of deer movements. The OUF-anisotropic movement model is the most general of ctmms, and includes a home range, correlated positions, correlated velocities, and movements varying by direction (Calabrese et al., 2021; Fleming et al., 2014).
Table 2
Mean distance moved by adult female mule deer during winter (Dec.-Feb.) and spring-autumn (Mar.-Nov.) seasons as estimated by continuous-time movement modeling (daily) and subdaily straight line movements between successive 4 h locations (subdaily) on the Corona Range and Livestock Research Center, east-central New Mexico, 2005-2007.
Daily (km)
Subdaily (m)
Season
Distance
SE
N
Distance
SE
N
Winter
2.90
0.24
24
302
19
24
Spring-Autumn
4.34
0.43
13
409
44
13
Deer moved less during the winter (Table 2) for both daily ctmms (F1,20 = 6.0; p = 0.024) and minimum subdaily straight-line distances (F1,20 = 4.8; p = 0.041); in both cases the magnitude of differences varied among individual deer (t15 < -2.72; p < 0.016). Similarly, for deer for which movement data for successive seasons were available, movements between successive seasons were always less during the winter season (p (winter < spring-autumn) = 1.000) than the following or preceding spring-autumn season (Table 3).
Additionally, movement distances of lactating females (mean = 42nd percentile; range = 34-55th percentile) were always closer to the average than the extremes of the frequency distribution of movement distances of dry females for each period. Last, neither annual, spring-autumn, or winter home MCP range sizes (N = 7-16 per period) differed between GPS/VHF and VHF-only collared deer (F5,39 ≤ 0.94; p ≥ 0.599).
Discussion
Despite much less snow and warmer winter temperatures, mule deer females moved less during winter regardless of movement period (i.e., daily, subdaily), supporting the maintenance of this energy conservation behavior in mule deer in the arid Southwest (Verme & Ullrey, 1984). Because deep snow cover and very cold temperatures are typically lacking in the arid Southwest, our results further support low forage quality and availability being the primary drivers of this behavior in deer (Verme & Ullrey, 1984; see below). This latter was reflected by the poor nutritional condition of lactating adult females in the study area (i.e., <5.7% body fat annually at the annual peak in late autumn; Bender et al., 2011, 2013), and in the arid Southwest in general (Bender et al., 2007, 2011, 2012; Bender, 2020), as well as the significant losses in condition seen over winter (Bender & Hoenes, 2017; Hoenes, 2008), despite mule deer likely requiring lower quality forage than white-tailed deer (O. virginianus) (Staudenmaier et al., 2022).
While lack of deep snow cover may result in relative forage availability being less impacted during winter in the arid Southwest, senesced forages are still of very low quality, similar to northern environments (Kemp, 1983; Krausman et al., 1990; McKinney, 2003). Low forage quality in winter was reflected in the condition dynamics of deer on the CRLRC; for example, dry females lost on average 32% of body fat reserves and 38% of rump body condition score over winter (L. Bender, unpublished data), even though their condition in late autumn-early winter was already low relative to other southwestern populations (Bender et al., 2007, 2011, 2012). The nutritional condition of deer is driven primarily by forage quality (Bender, 2020; National Research Council, 2007; Tollefson et al., 2010; Verme & Ullrey, 1984; Wakeling & Bender, 2003), illustrating that deer in the arid Southwest face similar constraints in terms of limited nutrient gains from forage intake as do deer in northern environments during winter.
Table 3
Mean movement distances (x) and mean differences (D) in mean distance moved daily as predicted by continuous-time movement modeling (daily) and subdaily straight line movements between successive 4 h locations (subdaily) of adult female mule deer for which movement data for successive seasons were available between winter (Dec.-Feb.) and spring-autumn (Mar.-Nov.) on the Corona Range and Livestock Research Center, east-central New Mexico, 2005-2007. p = Probability that seasonal differences differ from 0; N = number of seasonal comparisons.
Period
x Summer
x Winter
D
90% CI
p
N
Subdaily
400.2
309.6
-90.6 m
-123- -63
1.000
20
Daily
4.21
3.16
-1.05 km
-1.53- -0.63
1.000
20
Deer in northern environments do face additional energetic challenges associated with persistent snow cover, which can limit forage availability (by making location and acquisition of food more difficult; Hovey & Harstad, 1992), diet quality (due to reduced forage quality and availability; McKinney, 2003; Osborn & Jenks, 1998), and increase loss of endogenous reserves (because of increased costs of moving through snow; Bunnell et al., 1990; Mattfeld, 1973). However, while deer in the arid Southwest are less influenced by snow-depth related challenges, northern deer do not face the lack of free water experienced by most deer populations in arid environments because of persistent snow cover in northern environments. Lack of water can present an energetic cost to deer in the arid Southwest, as mule deer may increase movement distances to access water (Heffelfinger, 2006), and winter is much drier than spring-autumn in Chihuahuan desert and short-grass prairie habitats of the arid Southwest (e.g., 87% of precipitation occurs during spring-autumn on the CRLRC).
Because of permanent water developments, water was comparably available seasonally on the CRLRC; water developments were accessible from all deer home ranges, so mule deer did not need to alter their movements in response to seasonal changes in availability of water. Hence, need or preference for free water likely had a negligible effect on deer movements on the CRLRC, unless presence of temporary sources (ephemeral pools, etc.) during the summer monsoon reduce deer movements during spring-autumn because of increased availability. Thus, despite water being effectively controlled in our study, deer still showed less movements during winter. This again supports decreased movements during winter being most influenced by the lack of energetic benefit from seeking and foraging on low quality senesced forage.
Cold temperatures are often thought to influence the winter conservation strategy, despite demonstrated lack of benefit of thermal cover in winter to deer (Cook et al., 1998; Freddy, 1984), the pronounced effect of solar radiation on warming deer (Cook et al., 1998; Parker & Gillingham, 1990; Parker & Robbins, 1984), and deer movements and tolerance of exposure to cold (including bedding in the open) except during the most extreme conditions when high quality forage is available (Moen, 1968; Verme & Ullrey, 1984). Mule deer possess a low thermal critical zone (ca. -20 oC) and show greater tolerance of cold than do white-tailed deer, including a lower metabolic rate response to decreasing temperatures (Mautz et al., 1985; Parker & Robbins, 1984). Hence, they are less affected by even extreme cold, which is seldom the case in the arid Southwest where mean low temperatures seldom approach their lower thermal tolerance (Table 1). Conversely, the upper thermal critical level of mule deer in winter pelage (5 ºC; Mautz et al., 1985) is lower than average high temperatures during winter on our study area (6.7-8.9 ºC; Table 1) and much of the arid Southwest. This would require active metabolic activity or behaviors (e.g., panting, etc.) by mule deer to cool themselves, or possibly limiting movements and bedding under shade (although the energetic benefits of the latter are questionable; Cook et al., 1998). Consequently, if temperature affected movements during the winter in our study area, deer would be more likely to decrease movements because of heat stress, not cold stress.
Lastly, while at least one behavioral aspect of the winter energy conservation strategy is seen in mule deer in the arid Southwest, to what degree other adaptations are conserved is unknown. Mule deer in the arid Southwest do develop a highly insulative pelage in winter (Heffelfinger, 2006), but the extent that they may decrease metabolic rate or regulate vascular circulation to the extremities (or need to, in light of the more moderate temperatures) is unknown. Additionally, while lactating females showed a tendency to move less relative to dry females on the CRLRC, whether this is typical is unknown because of our small sample of lactating females. However, given that most females on CRLRC were in poorer condition than females elsewhere in the arid Southwest (Bender et al., 2007, 2011, 2012; Bender & Hoenes, 2017), if very low condition (such as results from lactation) increases movements during winter, this increase would likely have been seen in all CRLRC females regardless of lactation status. Moreover, GPS/VHF and VHF-only collared females showed similar movements (as indexed by home range sizes) seasonally and annually on CRLRC, indicating that movements of GPS/VHF collared females reflected females in general. Although small sample sizes (3-4) precluded including lactation status as an interactive term in the contrast of GPS/VHF and VHF-only collared females, for all females lactation status had no effect on annual or seasonal home range sizes (p ≥ 0.599).
Acknowledgments
Support for this project was provided by the U.S. Forest Service-Rocky Mountain Research Station and the New Mexico State University Cooperative Extension Service and Agricultural Experimental Station. All activities were in accordance with NMSU IACUC Permit No. 2005-023. E.J.T.-R. was supported by a postdoctoral fellowship from Consejo Nacional de Humanidades, Ciencias y Tecnologías (Conahcyt-Mexico).
References
Alldredge, A. W., Lipscomb, J.F., & Whicker, F.W. (1974). Forage intake rates of mule deer estimated with fallout cesium-137. The Journal of Wildlife Management, 38, 508–516. https://doi.org/10.2307/3800882
Bartmann, R. M., & Bowden, D. C. (1984). Predicting mule deer mortality from weather data in Colorado. Wildlife Society Bulletin, 12, 246–248. https://doi.org/10.1002/jwmg.956
Bender, L. C. (2020). Elk, deer, and pinyon-juniper: needs, what works, and what doesn’t. In K. Malcolm, B. Dykstra, K. Johnson, D. Lightfoot, E. Muldavin, & M. Ramsey (Compilers), Symposium proceedings on piñon-juniper habitats: status and management for wildlife – 2016. Proceedings RMRS-P-77. Fort Collins, Colorado: U.S. Forest Service, Rocky Mountain Research Station.
Bender, L. C., & Hoenes, B. D. (2017). Costs of lactation to body condition and future reproduction of free-ranging mule deer Odocoileus hemionus (Cervidae). Mammalia, 81, 329–338. https://doi.org/10.1515/mammalia-2015-0143
Bender, L. C., Lomas, L. A., & Browning, J. (2007). Condition, survival, and cause-specific mortality of mule deer in northcentral New Mexico. Journal of Wildlife Management, 71, 1118–1124. https://doi.org/10.2193/2006-226
Bender, L. C., Boren, J. C., Halbritter, H., & Cox, S. (2011). Condition, survival, and productivity of mule deer in semiarid grassland-woodland in east-central New Mexico. Human-Wildlife Interactions, 5, 276–286. https://doi.org/10.26077/60n0-ks48
Bender, L. C., Hoenes, B. D., & Rodden, C. L. (2012). Factors influencing survival of desert mule deer in the greater San Andres Mountains, New Mexico. Human-Wildlife Interactions, 6, 245–260. https://doi.org/10.26077/h5bg-1829
Bender, L. C., Boren, J. C., Halbritter, H., & Cox, S. (2013). Effects of site characteristics, pinyon-juniper control, and precipitation on habitat quality for mule deer on the Corona Range and Livestock Research Center. Human-Wildlife Interactions, 7, 47–59. https://digitalcommons.usu.edu/hwi/vol7/iss1/5
Bunnell, F. L., Hovey, F. W., McNay, R. S., & Parker, K. L. (1990). Forest cover, snow conditions, and black-tailed deer sinking depths. Canadian Journal of Zoology, 68, 2403–2408. https://doi.org/10.1139/z90-333
Calabrese, J. M., Fleming, C. H., & Gurarie, E. (2016). ctmm: an R package for analyzing animal relocation data as a continuous-time stochastic process. Methods in Ecology and Evolution, 7, 1124–1132. https://doi.org/10.1111/2041-210X.12559
Calabrese, J. M., Fleming, C. H., Noonan, M. J., & Dong, X. (2021). ctmmweb: a graphical user interface for autocorrelation-informed home range estimation. Wildlife Society Bulletin, 45, 162–169. https://doi.org/10.1002/wsb.1154
Cook, J. G., Irwin, L. L., Bryant, L. D., Riggs, R. A., & Thomas, J. W. (1998). Relations of forest cover and condition of elk: a test of the thermal cover hypothesis in summer and winter. Wildlife Monographs, 141, 1–61.
Efron, B., & Tibshirani, R. J. (1993). An introduction to the bootstrap. New York: Chapman & Hall.
Fleming, C. H., Fagan, W. F., Mueller, T., Olson, K. A., Leimgruber, P., & Calabrese, J. M. (2014). From fine-scale foraging to home ranges: a semivariance approach to identifying movement modes across spatiotemporal scales. American Naturalist, 183, E154–E167. http://doi.org/10.1086/675504
Fleming, C. H., Fagan, W. F., Mueller, T., Olson, K. A., Leimgruber, P., & Calabrese, J. M. (2016). Estimating where and how animals travel: an optimal framework for path reconstruction from autocorrelated tracking data. Ecology, 97, 576–582. https://doi.org/10.1890/15-1607.1
Freddy, D. J. (1984). Quantifying capacity of winter ranges to support deer – evaluation of thermal cover used by deer. Denver, CO: Wildlife Research Report, Colorado Division of Wildlife, USA.
Heffelfinger, J. (2006). Deer of the Southwest: a complete guide to the natural history, biology, and management of Southwestern mule deer and white-tailed deer. Texas A&M University, College Station, Texas.
Hoenes, B. D. (2008). Identification of factors limiting desert mule deer populations in the greater San Andres Mountains of southcentral New Mexico (Thesis). New Mexico State University, Las Cruces.
Hovey, F. W., & Harestad, A. S. (1992). Estimating effects of snow on shrub availability for black-tailed deer in southwestern British Columbia. Wildlife Society Bulletin, 20, 308–313.
Jacobsen, N. K. (1980). Differences of thermal properties of white-tailed deer pelage between seasons and body regions. Journal of Thermal Biology, 5, 151–158. https://doi.org/10.1016/0306-4565(80)90014-5
Kemp, P. R. (1983). Phenological patterns of Chihuahuan desert plants in relation to the timing of water availability. Journal of Ecology, 71, 427–436.
Kie, J. G., Baldwin, J. A., & Evans, C. J. (1996). CALHOME: a program for estimating animal home ranges. Wildlife Society Bulletin, 24, 342–344.
Krausman, P. R., Ordway, L. L., Whiting, F. M., & Brown, W. H. (1990). Nutritional composition of desert mule deer forage in the Picacho Mountains, Arizona. Desert Plants, 10, 32–34.
Marchinton, R. L., & Hirth, D. H. (1984). Behavior. In L. K. Halls (Ed.), White-tailed deer ecology and management. Pennsylvania: Stackpole Books.
Marshal, J. P., Krausman, P. R., & Bleich, V. C. (2008). Body condition of mule deer in the Sonoran Desert is related to rainfall. Southwestern Naturalist,53, 311–318. https://doi.org/10.1894/CJ-143.1
Mattfeld, G. F. (1973). The effect of snow on the energy expenditure of walking white-tailed deer. In Transactions of the 30th Northeast Fish and Wildlife Conference, Dover, Vermont, Spring, April 1973.
Mautz, W. W., Pekins, P. J., & Warren, J. A. (1985). Cold temperature effects on metabolic rates of white-tailed, mule, and black-tailed deer in winter coat. In P. F. Fennessy, & K. R. Orew (Eds.), The biology of deer. Royal Society of New Zealand Bulletin, 22, 453–457.
McKinney, T. (2003). Precipitation, weather, and mule deer. In J. C. Jr. deVos, M. R. Conover, & N. E. Headrick (Eds.), Mule deer conservation. Issues and management strategies. Logan, Utah: Jack H. Berryman Press.
Moen, A. N. (1968). Energy exchange of white-tailed deer, western Minnesota. Ecology, 49, 676–682. https://doi.org/10.2307/1935531
National Research Council (US). (2007). Committee on Nutrient Requirements of Small Ruminants. Nutrient requirements of small ruminants: sheep, goats, cervids, and New World camelids. Washington D.C.: National Academy Press.
Osborn, R. G., & Jenks, J. A. (1998). Assessing dietary quality of white-tailed deer using fecal indices: effects of supplemental feeding and area. Journal of Mammalogy, 79, 437–447. https://doi.org/10.2307/1382974
Parker, K. L., & Robbins, C. T. (1984). Thermoregulation in mule deer and elk. Canadian Journal of Zoology,62, 1409–1422. https://doi.org/10.1139/z84-202
Parker, K. L., & Gillingham, M. P. (1990). Estimates of critical thermal environments for mule deer. Journal of Range Management,43, 73–81. http://doi.org/10.2307/3899126
Robinette, W. L., Jones, D. A., Rogers, G., & Gashwiler, J. S. (1957). Notes on tooth development and wear for Rocky Mountain mule deer. Journal of Wildlife Management, 21, 134–153. https://doi.org/10.2307/3797579
SAS. (1988). SAS/STAT user’s guide. SAS Institute Incorporated, Cary, North Carolina.
Short, H. L. (1981). Nutrition and metabolism. In O. C. Wallmo, R. E. McCabe, & L. R. Jahn (Eds.), Mule and black-tailed deer of North America. Lincoln: University of Nebraska Press.
Silver, H., Holter, J. B., Colovox, N. F., & Hayes, H. H. (1971). Effect of falling temperature on heat production in fasting white-tailed deer. Journal of Wildlife Management, 35, 37–46.
Staudenmaier, A. R., Shipley, L. A., Camp, M. J., Forbey, J. S., Hagerman, A. E., Brandt, A. E. et al. (2022). Mule deer do more with less: comparing their nutritional requirements and tolerances with white-tailed deer. Journal of Mammalogy, 103, 178–195. https://doi.org/10.1093/jmammal/gyab116
Tollefson, T. N., Shipley, L. A., Myers, W. L., Keisler, D. H., & Dasgupta, N. (2010). Influence of summer-autumn nutrition on body condition and reproduction in lactating mule deer. Journal of Wildlife Management, 74, 974–986. https://doi.org/10.2193/2008-529
Verme, L. J., & Ullrey, D. E. (1984). Physiology and nutrition. In L. K. Halls (Ed.), White-tailed deer: Ecology and management. Harrisburg, Pennsylvania: Stackpole Books.
Wakeling, B. F., & Bender, L. C. (2003). Influence of nutrition on mule deer biology and ecology. In J. C. Jr. deVos, M. R. Conover, & N. E. Headrick (Eds.), Mule deer conservation. Issues and management strategies. Logan, Utah: Jack H. Berryman Press.
Oscar Pérez-Flores a, b, *, Santiago Zaragoza-Caballero b
a Universidad Nacional Autónoma de México, Escuela Nacional de Estudios Superiores, Laboratorio Nacional de Análisis y Síntesis Ecológica, Antigua Carretera a Pátzcuaro No. 8701, 58190 Morelia, Michoacán, Mexico
b Universidad Nacional Autónoma de México, Instituto de Biología, Departamento de Zoología, Apartado postal 70-153, 04510 Ciudad de México, Mexico
The genus Telegeusis Horn is the most diverse of the family Telegeusidae, with 16 described species, most of them distributed in Mexico (13 species). Herein, we describe 4 new species based on material collected from Tamaulipas, Mexico: T. cieloensis sp. nov., T. estebani sp. nov., T. flavafusca sp. nov., and T. luismartinezi sp. nov. Distinguishing characters from closely related species are given and discussed, and the key for the species of the genus is updated.
Especies nuevas de Telegeusis (Coleoptera: Telegeusidae) del norte de México
Resumen
El género Telegeusis Horn es el más diverso dentro de la familia Telegeusidae, con 16 especies descritas, muchas de ellas distribuidas en México (13 especies). En el presente trabajo, describimos 4 especies nuevas con base en material colectado de Tamaulipas, México: T. cieloensis sp. nov., T. estebani sp. nov., T. flavafusca sp. nov. y T. luismartinezi sp. nov. Se proporcionan y analizan los caracteres diagnósticos de especies estrechamente relacionadas, y se actualiza la clave para las especies del género.
Palabras clave: Telegeúsidos; Región Neotropical; Taxonomía; Coloración
Introduction
The small family Telegeusidae (Coleoptera: Elateroidea) contains 23 species distributed in 5 genera: Telegeusis Horn (16 spp.), Pseudotelegeusis Wittmer (4 spp.), Pseudokarumia Pic (1 sp.), Stenodrilus López-Pérez & Zaragoza-Caballero (1 sp.), and Platydrilus López-Pérez & Zaragoza-Caballero (1 sp.) (López-Pérez & Zaragoza-Caballero, 2021). In Mexico 17 species and 4 genera have been recorded (López-Pérez & Zaragoza-Caballero, 2021; Zaragoza-Caballero, 2008, 2015), becoming the most diverse country for the family.
Telegeusidae are easily recognized by their remarkably long apical labial and maxillary palpomeres (Lawrence, 2010; Miller, 2002). Only males have been described, and little is known about the ecology and biology of immature stages (Lawrence, 2010). Commonly, adult specimens are collected with light traps or interception traps (e.g., Malaise) (López-Pérez & Zaragoza-Caballero, 2021; Zaragoza-Caballero, 2008, 2015; Zaragoza-Caballero & Rodríguez-Vélez, 2011). The taxonomic position of Telegeusidae within Elateroidea has been controversial, placing them either as a subfamily of Oemethidae or as an independent family (Kundrata et al., 2014; López-Pérez & Zaragoza-Caballero, 2021; Ramsdale, 2010). Herein we treat them as a family.
Species of Telegeusis Horn, 1895 are recognized by their labial palpi 2-3 segmented, last palpomere greatly enlarged and elongated, similar to maxillary palpi; and antennae filiform (Ivie, 2002). The 16 currently recognized species are distributed from southern USA to Panama, with 13 species recorded for Mexico (Zaragoza-Caballero, 2008, 2015; Zaragoza-Caballero & Rodríguez-Vélez, 2011). The length of last maxillary and labial palpi, length of elytra, and integument coloration have been used to separate species within the genus (Zaragoza-Caballero, 2015; Zaragoza-Caballero & Rodríguez-Vélez, 2011). In this work, we describe 4 new species of Telegeusis from Mexico and update the key for the species.
Materials and methods
Specimens studied were collected with a blacklight and Malaise traps in El Cielo Biosphere Reserve, Tamaulipas, Mexico. The morphological terminology and classification are based on Ivie (2002), Zaragoza-Caballero (2015), and Zaragoza-Caballero and Rodríguez-Vélez (2011). Morphological structures were studied using a Zeiss Stemi DV-4 stereomicroscope. Measurements are in millimeters. Photographs were taken with a Zeiss® AxioZoom V16 stereomicroscope, with a Zeiss® AxioCam MRc5, 5 megapixels camera, controlled by ZEN (Zeiss Efficient Navigation) application. Specimens are deposited in the Colección de Insectos, UAEM, Morelos, Mexico (CIUM), and the Colección Nacional de Insectos, Instituto de Biología, UNAM, CDMX, Mexico (CNIN). All label data were transcribed verbatim as appearing on the respective labels.
Diagnosis. Similar to T. debilis Horn, 1895 but differing in the length of head which is slightly longer than wide (twice longer than wide in T. debilis); maxillary and labial palpi slightly longer than antennae (shorter than antennae in T. debilis); elytra reaching posterior third of abdomen (reaching the middle in T. debilis).
Holotype male (CNIN). Size: length 4.1 mm; width 0.75 mm. Color: head, base of elytra and legs yellowish brown; meso and metaventrite orange; antennae, pronotum, posterior part of elytra and abdomen reddish brown; apical palpomeres brown. Head: flat, 1.2 times longer than wide, at eye level, distance between outer margins of eyes slightly wider than pronotum (0.62 mm). Interocular area convex, forming pronounced gibba centrally (Fig. 1C). Distance between eyes and pronotum 0.85 times the length of eye. Integument shiny, shagreened, finely punctate; each puncture with an erect, yellow seta; setae longer behind eyes; with strongly deep tentorial pits. Antennal tubercles prominent, convex (Fig. 1C). Inter-antennal area concave, 2.25 times as wide as length of scape. Antennae longer (1.2 mm) than last maxillary palpomere (1.05 mm) (Fig. 1A, B); scape slightly widened. Eyes prominent, slightly longer (0.18 mm) than wide (0.15 mm); interocular distance 3.3 times width of eyes. Frons concave, anterior margin concave. Clypeus with margin slightly sinuous. Maxillary and labial palpi with 3 and 2 palpomeres, respectively (Fig. 1D). Thorax: pronotum wider (0.62 mm) than long (0.45 mm), width less than length of head (Fig. 1A, C); anterior margin straight, posterior margin convex, sides slightly constricted at middle; disk glossy, convex centrally, with 1 elongated gibbosity on each side; integument finely, sparsely punctate, with erect, sparse orange setae. Scutellum shiny, finely punctate, with sparse setae, posterior margin truncate. Elytra 6.45 times as long as wide (base width) (Fig. 1A), subparallel on basal half, then becoming narrower toward rounded apex; integument coarsely punctate, granulate on posterior third; each puncture with an erect, yellow seta. Metathoracic wings 2.35 times longer than wide (Fig. 1E), anterior radial vein (RA) well sclerosed, posterior radial 2 (PR2) present, cubital 2 (CU2) slightly curved, elongated. Legs finely punctate, with dense yellow setae, yellowish-brown on apical half of tibiae. Coxae conical; procoxae long. Trochanters elongate. Femora fusiform, flattened; metafemora longer and wider (Fig. 1A, B). Tibiae elongate, with 2 apical spines; metatibia longer and slightly widened toward apex. Tarsomere I shorter in length than II-IV together; claws simple. Abdomen: shiny, integument shagreened with fine punctures, each puncture with an erect, yellow seta (Fig. 1B).
Figure 1. Telegeusis cieloensis sp. nov., holotype male: A) dorsal habitus; B) ventral habitus; C) head, dorsal view; D) palpi, ventral view; E) paratype, metathoracic wing. Scale bars = 1 mm (A-B, E); 0.5 mm (C-D).
Variation. The type material varies in total length from 4.08 to 5.86 mm, and in width from 0.7 mm to 0.93 mm.
Taxonomic summary
Etymology. The specific epithet is derived from El Cielo Biosphere Reserve where the holotype was collected, combined with the Latin suffix –ensis, meaning belonging to.
Type material. Holotype male: Mexico: Tamaulipas, Gómez Farías, Reserva de la Biosfera El Cielo, Malaise trap, 23°08’01.1” N, 99°13’11.6” W, 19/Abril/2021, 1,600 m snm, M. Janda et al. leg. (CNIN). Paratypes. Same data as holotype except: 23°05’56.2” N, 99°12’17.1” W, 31/Enero/2020, 1,200 m snm (CNIN, 1); 23°08’09.4” N, 99°12’53.1” W, 01/Septiembre/2020, 1,800 m snm (CNIN, 2); 23°05’56.2” N, 99°12’17.1” W, 16/Septiembre/2020, 1,200 m snm (CIUM, 2); light trap, 23°05’16.5” N, 99°11’59.6” W, 10/Octubre/2020, 1,200 m snm (CNIN, 1); light trap, 23°07’39.3” N, 99°12’30.6” W, 10/Octubre/2020, 1,400 m snm (CIUM, 2); 23°05’56.2” N, 99°12’17.1” W, 10/Diciembre/2020, 1,200 m snm (CIUM, 1); 23°05’56.2” N, 99°12’17.1” W, 19/Abril/2021, 1,200 m snm (CNIN, 1); 23°08’01.1” N, 99°13’11.6” W, 19/Abril/2021, 1,600 m snm (CNIN, 1); 23°08’01.1” N, 99°13’11.6” W, 05/Mayo/2021, 1,600 m snm (CNIN, 1); light trap, 23°09’05.3” N, 99°12’53.8” W, 17/Julio/2021, 1,400 m snm (CNIN, 1).
Diagnosis. Similar to T. moroni Zaragoza-Caballero, 2015 determined by the color and length of maxillary palpi, but it differs with prominent eyes (small in T. moroni); and with 2 labial palpomeres (3 in T. moroni). The speciesalso resembles T. cieloensis sp. nov. but differs mainly by a darker coloration (lighter in T. cieloensis), and the length of elytra, just surpassing the middle of elytra (reaching last third in T. cieloensis).
Holotype male (CNIN). Size: length 5.1 mm; width 0.92 mm. Color: mostly brown; somewhat orangish-brown on frons and vertex; antennae orangish brown; pedicel, meso-, metaventrite, scutellum and legs orange; apical palpomeres dark brown. Head: flat, 1.1 times longer than wide, at eye level, distance between outer margins of eyes slightly wider than pronotum (0.7 mm). Interocular area slightly convex, forming small gibba (Fig. 2C). Distance between eyes and pronotum 0.92 times length of eye. Integument shiny, shagreened, finely punctate; each puncture with an erect, orange seta; setae longer around eyes; with conspicuous tentorial pits. Antennal tubercles prominent, slightly convex (Fig. 2C). Inter-antennal area concave; 2.75 times as wide as length of scape. Antennae just longer (1.65 mm) than last maxillary palpomere (1.57 mm) (Fig. 2A, B); scape somewhat prominent. Eyes prominent, longer (0.27 mm) than wide (0.2 mm); interocular distance 2.9 times width of eyes. Frons slightly concave, anterior margin concave. Clypeus with margin slightly sinuous. Maxillary and labial palpi with 3 and 2 palpomeres, respectively (Fig. 2D). Thorax: pronotum wider (0.76 mm) than long (0.58 mm), width less than length of head; anterior margin straight, posterior margin convex, sides strongly constricted at middle; disk glossy, convex centrally (strongly convex on anterior half), with 1 elongated gibbosity on each side; integument finely, sparsely punctate, with erect, sparse orange setae. Scutellum shiny, finely punctate, with sparse setae, posterior margin truncate. Elytra 6.3 times as long as wide (base width) (Fig. 1A), subparallel on anterior 2/3, slightly constricted about this area, becoming narrower towards rounded apex, reaching apex of abdominal ventrite IV; integument coarsely punctate, strongly granulate on posterior third; each puncture with an erect, orange seta. Metathoracic wings 2.2 times longer than wide (Fig. 2E), anterior radial vein (RA) narrowed, cubital 2 (CU2) curved centrally. Legs finely punctate, with dense orange, orange-brown setae. Coxae conical. Trochanters elongate. Femora fusiform, flattened; metafemora slightly longer (Fig. 2A, B). Tibiae elongate, with 2 apical spines: metatibia slightly longer. Tarsomere I shorter in length than II-IV together; claws simple. Abdomen: shiny, integument shagreened with fine punctures, each puncture with an erect, orange seta, slightly sparser at middle (Fig. 2B).
Variation. Type material varies in total length from 4.38 mm to 5.68 mm, and in width from 0.78 mm to 1.0 mm.
Taxonomic summary
Etymology. This species is named after our friend Esteban Berrones from Alta Cima, El Cielo Biosphere Reserve, for his dedication to protect the biodiversity of El Cielo.
Type material. Holotype male: Mexico: Tamaulipas, Gómez Farías, Reserva de la Biosfera El Cielo, Malaise trap, 23°05’56.2” N, 99°12’17.1” W, 19/Abril/2021, 1,200 m snm, M. Janda et al. leg. (CNIN). Paratypes. Same data as holotype except: 23°07’48.6” N, 99°12’44.3” W, 01/Septiembre/2020, 1,400 m snm (CIUM, 1); 23°05’56.2” N, 99°12’17.1” W, 19/Abril/2021, 1,200 m snm (CNIN, 2); 23°07’48.6” N, 99°12’44.3” W, 04/Junio/2021, 1,400 m snm (CIUM, 1); light trap, 23°05’02.0” N, 99°11’50.4” W, 17/Julio/2021, 1,200 m snm (CNIN, 1).
Figure 2. Telegeusis estebani sp. nov., holotype male: A) dorsal habitus; B) ventral habitus; C) head, dorsal view; D) palpi, ventral view; E) paratype, metathoracic wing. Scale bars = 1 mm (A-B, E); 0.5 mm (C-D).
Diagnosis. It may be distinguished by the wide, gibbous interocular area, which in other species is narrower and only gibbous centrally. Telegeusis flavafusca sp. nov. is similar to T. hidalguensis Zaragoza-Caballero, 2015 but differs as follows: integument mostly yellowish-brown (mostly pale yellow in T. hidalguensis); elytra shortened, reaching base of abdominal ventrite 3 (longer in T. hidalguensis, surpassing middle of abdomen).
Holotype male (CNIN). Size: length 4.4 mm; width 0.75 mm. Color: mostly yellowish brown, darker on some areas; mouthparts reddish brown; posterior half of elytra, and apical palpomeres brown. Head: flat, 1.2 times longer than wide, at eye level, distance between outer margins of eyes slightly wider than pronotum (0.48 mm). Interocular area convex, forming conspicuous gibba (Fig. 3C). Distance between eyes and pronotum 1.4 times length of eye. Integument shiny and shagreened, finely, sparsely punctate, coarser behind eyes; each puncture with an erect, orange seta; setae longer around the eyes. Antennal tubercles slightly pronounced (Fig. 3C). Inter-antennal area concave, 1.7 times as wide as length of scape. Antennae longer (1.2 mm) than the last maxillary palpomere (0.82 mm) (Fig. 3A, B); scape unwidened. Eyes slightly prominent, longer (0.23 mm) than wide (0.11 mm); interocular distance 4.25 times width of eyes. Frons almost straight; anterior margin concave. Clypeus with very pronounced median tooth at anterior margin. Maxillary and labial palpi with 3 and 2 palpomeres, respectively (Fig. 3D). Thorax: pronotum just wider (0.48 mm) than long (0.46 mm), width less than length of head; anterior margin straight, posterior margin convex, sides strongly constricted at middle; disk glossy, slightly convex centrally, with 1 irregular, elongated gibbosity on each side; integument finely, sparsely punctate, with erect, sparse orange setae. Scutellum shiny, finely punctate, with few setae, posterior margin truncate. Elytra 4.15 times as long as wide (base width) (Fig. 3A), subparallel on anterior 2/3, slightly narrower in posterior third, apex rounded, reaching base of abdominal ventrite III; integument coarsely punctate, strongly granulate on posterior third; each puncture with erect, orange seta. Metathoracic wings 2.35 times longer than wide (Fig. 3E), anterior radial vein (RA) distinctly sclerosed, cubital 2 (CU2) curved, jugal lobe widened. Legs finely punctate, with sparse orange setae from coxae to femora, and dense orangish-brown setae on tibiae and tarsi. Coxae conical; metacoxae shorter. Trochanters not elongated. Femora fusiform, flattened; metafemora slightly longer (Fig. 3A, B). Tibiae elongate, with 2 apical spines: metatibia slightly longer. Tarsomere I shorter in length than II-IV together; claws simple. Abdomen: shiny, integument shagreened with fine punctures, each puncture with an erect, orange seta, slightly sparser at middle (Fig. 3B).
Variation. Type material varies in total length from 3.58 to 4.54 mm, and in width from 0.66 to 0.8 mm. One specimen has integument slightly lighter.
Taxonomic summary
Etymology. From Latin “flavus” (yellow) and “fuscus” (brown), referring to the main coloration of integument.
Type material. Holotype male: Mexico: Tamaulipas, Gómez Farías, Reserva de la Biosfera El Cielo, Malaise trap, 23°08’03.5” N, 99°11’16.5” W, 1/Septiembre/2020, 1,000 m snm, M. Janda et al. leg. (CNIN). Paratypes. Same data as holotype except 23°08’03.5” N, 99°11’16.5” W, 1/Septiembre/2020, 1,000 m snm (CIUM, 1); 23°08’08.2” N, 99°10’54.5” W, 05/Abril/2021, 800 m snm (CNIN, 2).
Diagnosis. The coloration resembles T. moroni Zaragoza-Caballero, 2015, T. brachypalpus Zaragoza-Caballero, 2015 and T. granulatus Zaragoza-Caballero & Rodríguez-Vélez, 2011. It differs from T. moroni by the labial palpi 2-segmented (3-segmented in T. moroni); from T. brachypalpus by the length of maxillary and labial palpi, about half of antennae (reaching basal third of antennae in T. brachypalpus; and from T. granulatus by the head shagreened (granulated in T. granulatus), and elytral shortened, about 3.5 times as long as wide (about 6 times as long as wide in T. granulatus).
Holotype male (CNIN). Size: length 4.2 mm; width 0.8 mm. Color: mostly brown; mouthparts reddish brown; frons, meso and metaventrite, base of elytra, trochanters, femora orange brown; apical palpomeres dark brown. Head: flat, 1.25 times longer than wide, at eye level, distance between outer margins of eyes slightly wider than pronotum (0.6 mm). Interocular area slightly convex, forming small gibba (Fig. 4C). Eyes-pronotum distance 1.45 times length of eye. Integument shiny, shagreened, finely punctate, coarser behind eyes; each puncture with an erect, orange seta; setae longer around eyes. Antennal tubercles slightly pronounced (Fig. 4C). Inter-antennal area concave; 1.95 times as wide as length of scape. Antennae longer (1.22 mm) than last maxillary palpomere (0.63 mm) (Fig. 4A, B); scape prominent. Eyes reduced, longer (0.21 mm) than wide (0.12 mm); interocular distance 5.25 times width of eyes. Frons slightly concave; anterior margin concave. Clypeus with very pronounced median tooth at anterior margin. Maxillary and labial palpi with 3 and 2 palpomeres respectively (Fig. 4D). Thorax: pronotum wider (0.56 mm) than long (0.46 mm), width less than length of head; anterior margin straight, posterior margin convex, sides slightly constricted at middle; disk glossy, slightly convex centrally, with 1 elongated gibbosity on each side; integument finely, sparsely punctate, with erect, sparse orange setae. Scutellum shiny, coarsely punctate, with few setae, posterior margin truncate. Elytra 3.55 times as long as wide (base width) (Fig. 4A), subparallel on anterior half, gradually narrowing towards rounded apex, reaching apex of abdominal ventrite III; integument coarsely punctate, strongly granulate on posterior third; each puncture with an erect, orange seta.
Figure 3. Telegeusis flavafusca sp. nov., holotype male: A) dorsal habitus; B) ventral habitus; C) head, dorsal view; D) palpi, ventral view; E) paratype, metathoracic wing. Scale bars = 1 mm (A-B, E); 0.5 mm (C-D).
Metathoracic wings 2.3 times longer than wide (Fig. 4E), anterior radial vein (RA) distinctly sclerosed, cubital 2 (CU2) slightly curved. Legs finely punctate, with sparse orange setae from coxae to femora, and dense orangish-brown setae on tibiae and tarsi. Coxae conical; metacoxae shorter. Trochanters not elongated. Femora fusiform, flattened; metafemora slightly longer (Fig. 3A, B). Tibiae elongate, somewhat arched, with 2 apical spines; metatibia longer. Tarsomere I shorter in length than II-IV together; claws simple. Abdomen: shiny, integument shagreened with fine punctures, each puncture with an erect, orange seta (Fig. 4B).
Figure 4. Telegeusis luismartinezi sp. nov., holotype male: A) dorsal habitus; B) ventral habitus; C) head, dorsal view; D) palpi, ventral view; E) paratype, metathoracic wing. Scale bars = 1 mm (A-B, E); 0.5 mm (C-D).
Variation. Type material varies in total length from 4.12 to 5.06 mm, and in width from 0.76 to 0.95 mm.
Taxonomic summary
Etymology. This species is named after our friend Luis Martínez from Gómez Farías, El Cielo Biosphere Reserve, for his dedication to protect the biodiversity of El Cielo.
Type material. Holotype male: Mexico: Tamaulipas, Gómez Farías, Reserva de la Biosfera El Cielo, Malaise trap, 23°05’56.2” N, 99°12’17.1” W, 19/Marzo/2020, 1,200 m snm, M. Janda et al. leg. (CNIN). Paratypes. Same data as holotype except 23°05’56.2” N, 99°12’17.1” W, 19/Marzo/2020, 1,200 m snm (CNIN, 2; CIUM, 2); light trap, 23°05’48.3” N, 99°11’59.4” W, 19/Abril/2021, 1,200 m snm (CNIN, 1).
Key to species of Telegeusis (modified from Zaragoza-Caballero, 2015)
1. Elytra less than 4 times as long as wide 2
1’ Elytra more than 4 times as long as wide 10
2. Elytra short, not reaching hind coxae, almost as long as wide T. schwarzi Barber, 1952
2’ Elytra at least reaching hind coxae, longer than wide 3
3. Integument mostly from dark brown to black 4
3’ Integument mostly from yellow to amber 6
4 Maxillary and labial palpi at most reaching half of the antennae T. luismartinezi sp. nov.
4’ Maxillary and labial palpi surpassing half of the antennae 5
5. Occipital region, genae, gula, clypeus, and pronotum orange; total length 4.5 mm T. texensis Fleenor & Taber, 2001
5’; Integument dark brown, pronotum and basal part of the legs yellow; total length 3.5 mm T. panamensis Alan & Huntton, 1969
6. Maxillary and labial palpomeres longer than antennae 7
6’ Maxillary and labial palpomeres commonly no longer than antennae 8
7. Integument mostly yellow; last maxillary and labial palpomeres yellow; total length 7.0 – 8.0 mm T. nunifer Martin, 1931
7’ Integument mostly amber; last maxillary and labial palpomeres black; total length 3.3 – 4.6 mm T. austellus Zaragoza-Caballero & Rodríguez-Vélez, 2011
8. Maxillary and labial palpi black, shorter than antennae T. boreios Zaragoza-Caballero & Rodríguez-Vélez, 2011
8’ Maxillary and labial palpi brown, as long or longer than antennae 9
9. Eyes small; maxillary and labial palpi as long as antennae T. sonorensis Zaragoza-Caballero & Rodríguez-Vélez, 2011
9’ Eyes prominent; maxillary and labial palpi longer than antennae T. chamelensis Zaragoza-Caballero, 1975
10. Integument yellow to amber 11
10’ Integument brown to black 16
11. Elytra more than 5 times as long as wide 12
11’ Elytra less than 5 times as long as wide 13
12. Head twice as long as pronotum T. debilis Horn, 1895
12’ Head as long as pronotum T. cieloensis sp. nov.
13. Maxillary and labial palpi black, with 4 and 3 palpomeres respectively, longer than antennae T. glessum Zaragoza-Caballero & Rodríguez-Vélez, 2011
13’ Maxillary and labial palpi yellow or amber, with 3 and 2 or 2 and 1 palpomeres respectively, shorter than antennae 14
14. Eyes small; maxillary and labial palpi with 2 and 1 palpomeres respectively T. dissimilis Zaragoza-Caballero, 2015
14’ Eyes prominent; maxillary and labial palpi with 3 and 2 palpomeres respectively 15
15. Integument mostly yellow; head about as long as wide; maxillary and labial palpi reaching half of antennae T. hidalguensis Zaragoza-Caballero, 2015
15’ Integument mostly amber; head longer than wide; maxillary and labial palpi reaching apical third of antennae T. flavafusca sp. nov.
16. Maxillary and labial palpi with 4 and 3 palpomeres respectively 17
16’ Maxillary palpi with 3 palpomeres; and labial palpi with 3 or 2 palpomeres 18
17. Integument mostly dark brown; head shagreened; elytra 4.5 times as long as wide T. orientalis Zaragoza-Caballero, 1990
17’ Integument black; head granulated; elytra almost 6.5 times as long as wide T. granulatus Zaragoza-Caballero & Rodríguez-Vélez, 2011
18. Maxillary and labial palpi with 3 palpomeres T. moroni Zaragoza-Caballero, 2015
18’ Maxillary and labial palpi with 3 and 2 palpomeres respectively 19
19. Last maxillary palpomere about as long as antennae; elytral length more than 6 times as long as wide T. estebani sp. nov.
19’ Last maxillary palpomere reaching half of the antennae; last labial palpomere shortened; elytral length less than 6 times as long as wide T. brachypalpus Zaragoza-Caballero, 2015
Discussion
Most of the species of Telegeusis Horn, 1895 which have been recorded in northern Mexico and USA, show a Nearctic distributional pattern with a disjunct Neotropical distribution (Zaragoza-Caballero, 2015; Zaragoza-Caballero & Rodríguez-Vélez, 2011); however, this may be due to lack of sampling (e.g., they are not recorded in most of Central America) and does not mean that they are not equally or mostly distributed in the Neotropical region. Interestingly, this distributional species pattern is similar to those of North American Omethidae, one of the proposed sister groups of telegeusids (Bocak et al., 2018; Ramsdale, 2010).
Telegeusis are commonly recognized by their 2-3 segmented labial palpi, with the last palpomere greatly elongated, similar to maxillary palpi; and antennae with short-filiform antennomeres (Ivie, 2002). These characters are used to distinguish most species of the genus, mainly the length of last labial and maxillary palpomeres, compared with antennal length (Zaragoza-Caballero, 2015; Zaragoza-Caballero & Rodríguez-Vélez, 2011). One other important character used in the specific diagnoses of Telegeusis is the integument coloration, which is greatly consistent across the species. In different groups of insects, the color of the integument is associated to the environment, altitudinal (commonly darker coloration as altitude increases) gradients or feeding habits (Badejo et al., 2020; Stanbrook et al., 2021). However, in Telegeusis does not appear to be related to elevation, since there are species with dark and light colors in both low and high areas. Regarding the environment, we found the new species coexisting in the same habitat (cloud forest), between 1,000 and 1,600 m, but nothing else is known about their biology.
Although we confirm the usefulness of the color pattern in Telegeusis, we recommend combining it with other characters (e.g., elytral length, head sculpture). However, further studies may help to corroborate the informativeness of this type of character under a phylogenetic framework.
Acknowledgements
The first author is indebted with the local community of the Reserva de la Biosfera El Cielo for their hospitality and facilities provided during fieldwork. We thank Esteban Berrones and Luis Martínez for their support in the fieldwork. To Susana Guzmán (IBUNAM) for helping with the use of the Zeiss equipment in LANABIO. This research was founded by the Consejo Nacional de Humanidades, Ciencias y Tecnologías DICB No.435282471, and Universidad Nacional Autónoma de México PAPIIT IN206818 and IN218520.
References
Badejo, O., Skaldina, O., Gilev, A., & Sorvari, J. (2020). Benefits of insect colours: a review from social insect studies. Oecologia, 194, 27–40. https://doi.org/10.1007/s00442-020-04738-1
Ivie, M. A. (2002). The transfer of Pseudokarumia Pic from Dascillidae (Karumiinae) to Telegeusidae, with a key to world genera of Telegeusidae. The Coleopterist Bulletin, 56, 582–584. https://doi.org/10.1649/0010-065X(2002)056[0582:TTOPPF]2.0.CO;2
Kundrata, R., Kundrata, R., Bocakova, M., & Bocak, L. (2014). The comprehensive phylogeny of the superfamily Elateroidea (Coleoptera: Elateriformia). Molecular Phylo- genetics and Evolution, 76, 162–171. https://doi.org/10.1016/j.ympev.2014.03.012
Lawrence, J. F. (2010). Telegeusidae Leng, 1920. In R. A. B. Leschen, R. G. Beutel, & J. F. Lawrence (Eds.), Handbook of Zoology, Arthropoda: Insecta, Coleoptera, beetles morphology and systematics, Vol. 2 (pp. 123–126). Berlin, New York: Walter de Gruyter. https://doi.org/10.1515/9783110911213.123
López-Pérez, S., & Zaragoza-Caballero, S. (2021). Two new genera of Telegeusidae (Coleoptera) from Mexico. Revista Mexicana de Biodiversidad, 92, e923613. https://doi.org/10.22201/ib.20078706e.2021.92.3613
Miller, S.R. (2002). Telegeusidae Leng, 1920. In R. H. Arnett, M. C. Thomas, P. E. Skelley, & H. F. D. Phil (Eds.), American beetles, Volume II: Polyphaga: Scarabaeoidea through Curculionoidea (pp. 179–180). Gainsville, Florida: CRC Press.
Ramsdale, A. S. (2010). Omethidae LeConte, 1861. In R. A. B. Leschen, R. G. Beutel, & J. F. Lawrence (Eds.), Handbook of zoology, Arthropoda: Insecta, Coleoptera, beetles morphology and systematics, Vol. 2 (pp. 149–153). Berlin, New York: Walter de Gruyter. https://doi.org/10.1515/9783110911213.149
Stanbrook, R. A., Harris, W. E., Wheater, C. P., & Jones, M. (2021). Evidence of phenotypic plasticity along an altitudinal gradient in the dung beetle Onthophagus proteus. PeerJ, 9, e10798. https://doi.org/10.7717/peerj.10798
Zaragoza-Caballero, S. (2008). Nueva especie de Pseudotelegeusis (Coleoptera: Telegeusidae) del estado de Colima, México. Revista Mexicana de Biodiversidad, 79, 369–372. https://doi.org/10.22201/ib.20078706e.2008.002.573
Zaragoza-Caballero, S. (2015). Nuevos telegeúsidos (Coleoptera: Telegeusidae) de Hidalgo, México. Dugesiana, 22, 179–186. https://doi.org/10.32870/dugesiana.v22i2.4730
Zaragoza-Caballero, S., & Rodríguez-Vélez, B. (2011). Five new species of Telegeusis Horn, 1895 (Coleoptera: Telegeusidae) from Mexico, with a key to the species. Zootaxa, 2917, 59–68. https://doi.org/10.11646/zootaxa.2917.1.4
Gabriela Diaz a, b, *, Vanesa Pellegrini-Piccini a, Liliana Moreno d, Martín Palma c, e, Vanesa Bentancourt c y Valeria Corbalán f
a Universidad Nacional de Cuyo-Sede Malargüe, Campus Educativo Municipal, Facultad de Ciencias Exactas y Naturales, Rosario Vera Peñaloza y Beltrán, 5613 Malargüe, Mendoza, Argentina
b Universidad Nacional de Cuyo, Instituto de Ingeniería y Ciencias Aplicadas a la Industria-CONICET, Facultad de Ciencias Aplicadas a la Industria, Bernardo de Yrigoyen Núm. 375, 5600 San Rafael, Mendoza, Argentina
c Instituto de Educación Física Núm. 9-016 “Jorge E. Coll” Dirección General de Escuelas-Sede Malargüe, Tecnicatura en Conservación de la Naturaleza, Campus Educativo Municipal, Rosario Vera Peñaloza y Beltrán, 5613 Malargüe, Mendoza, Argentina
d Universidad Nacional de San Luis, Facultad de Química Bioquímica y Farmacia, Ejército de los Andes Núm. 950, 5700 San Luis, Argentina
e Ministerio de Ambiente y Desarrollo Sustentable de la Provincia de Mendoza, Dirección de Recursos Naturales Renovables, Delegación Malargüe, San Martín Norte Núm. 352, 5613 Malargüe, Mendoza, Argentina
f Instituto Argentino de Investigaciones de Zonas Áridas (CCT Mendoza-CONICET), Av. Ruiz Leal s/n, Parque Gral. San Martín, 5500 Mendoza, Argentina
*Autor para correspondencia: gdiaz@infoar.net (G. Diaz)
Recibido: 02 octubre 2023; aceptado: 15 agosto 2024
Resumen
La ranita del Pehuenche, Alsodes pehuenche, es endémica de los Andes centrales de Argentina y Chile, ha sido categorizada en peligro crítico por la UICN y entre sus amenazas se encuentran la ruta internacional que atraviesa los arroyos que habita, la presencia del hongo quitridio, los salmónidos exóticos invasores, el ganado y el cambio climático. El objetivo de este trabajo fue evaluar el estado actual de conservación de A. pehuenche en el valle Pehuenche para conocer tendencias poblacionales, el impacto de las amenazas y futuras acciones de manejo. Se realizaron 14 salidas de campo durante 3 temporadas (2021-2023) y se muestrearon 12 arroyos usando la técnica de encuentro visual nocturno. Se delimitaron y nombraron 7 subpoblaciones: Nacientes, del Límite, Pichintur, Rial Rojas, Nueva, Campanaria y Cajón Largo. Los resultados muestran conteos de adultos (5.82 en 200 m2 y 13.64 por hora) y de larvas (6.24 en 200 m2 y 17.76 por hora). Éstos no variaron significativamente entre temporadas, pero fueron mayores en enero y febrero. Con base en la conectividad y las amenazas, los índices del estado de conservación permiten priorizar las subpoblaciones como unidades de conservación, de las cuales la del Límite requiere esfuerzos más urgentes.
Palabras clave: Especie amenazada; Encuentro visual; Conectividad; Subpoblaciones; Priorización de conservación
Population monitoring and conservation status of the Pehuenche frog (Alsodes pehuenche) in the valle Pehuenche, Mendoza, Argentina
Abstract
The Pehuenche spiny-chest frog, Alsodes pehuenche, is endemic to the Central Andes of Argentina and Chile. It has been categorized as critically endangered by the IUCN and its threats include the international road that crosses the streams inhabited by the species, the presence of the chytrid fungus, invasive exotic salmonids, livestock, and climate change. The objective of this work was to evaluate the current conservation status of A. pehuenche in the Pehuenche Valley as a basis for understanding population trends, the impact of threats, and future management actions. Fourteen field trips were conducted during 3 seasons (2021-2023) and 12 streams were sampled using the nocturnal visual encounter technique. Seven subpopulations were delimited and named: Nacientes, del Límite, Pichintur, Rial Rojas, Nueva, Campanaria, and Cajón Largo. The results show counts of adults (5.82 in 200 m2 and 13.64 per hour) and larvae (6.24 in 200 m2 and 17.76 per hour). These did not vary significantly between seasons but were higher in January and February. According to connectivity and threats, the conservation status indices allow us to prioritize the subpopulations as conservation units, with del Límite being the one that requires the most urgent efforts.
Los anfibios son el grupo de vertebrados más amenazados de nuestro planeta, varias son las causas responsables de la disminución de sus poblaciones (Grant et al., 2020; Green et al., 2020; Luedtke et al., 2023). Más de 45% de la diversidad de anfibios del mundo se distribuyen en el Neotrópico (Kacoliris et al., 2022). Alrededor de 25% de las especies de Argentina son endémicas (Vaira et al., 2017), 37% de ellas en Argentina y Chile se encuentran en disminución, mientras que del 22% de las especies no se conoce su tendencia poblacional (Kacoliris et al., 2022). Las amenazas más importantes con las que se asocian la disminución poblacional o extinciones locales son los depredadores invasores, enfermedades emergentes y la ganadería (Kacoliris et al., 2022; Velasco et al., 2016).
La ranita del Pehuenche, Alsodes pehuenche, fue descrita por Cei (1976). Luego de estudios citogenéticos realizados entre 1983 y 2003 (Cuevas y Formas, 2003), se renueva el interés sobre la especie en Argentina debido a las obras viales sobre la ruta internacional ARG145 – CH115, cuya pavimentación desvió el curso de 5 afluentes del arroyo Pehuenche con presencia de la especie (Corbalán et al., 2010). La ranita del Pehuenche es una especie endémica y su distribución está restringida a los Andes centrales de Argentina y Chile (Corbalán et al., 2010, 2023; Correa et al., 2013, 2018, 2020). Habita arroyos de montaña en ecosistemas de vegas o mallines entre 2,150 y 2,825 m snm (Corbalán et al., 2023). Los arroyos poseen lechos pedregosos y una fina capa de sedimentos. La especie presenta dimorfismo sexual y como otras especies de Alsodes, tiene larvas de desarrollo prolongado con juveniles y adultos de hábitos acuáticos (Cei, 1976, 1980; Herrera y Velázquez, 2016a; Úbeda, 2021). Las larvas son de gran tamaño y pasan al menos 4 años en los cuerpos de agua permanentes hasta completar el ciclo larval (Corbalán et al., 2014). Se ha reportado la puesta de huevos ocultos bajo rocas o en oquedades en las márgenes de los arroyos (Corbalán et al., 2014; Piñeiro et al., 2020). Estas cavidades son utilizadas también como refugio por los adultos (Cei, 1980; Correa et al., 2013; Herrera y Velázquez, 2016b).
Los datos de conteos disponibles corresponden a muestreos de tramos cortos de arroyos en Argentina y Chile (Corbalán et al., 2010, 2023; Correa et al., 2013). La coexistencia de individuos en una cavidad durante el día sugiere densidades elevadas en una categoría de microhábitat (Correa et al., 2013). Han ocurrido eventos de mortalidad y se han reportado nuevas poblaciones (Corbalán et al., 2023; Correa et al., 2018), lo cual hace necesaria una evaluación actualizada de su estatus de conservación y tendencia poblacional.
Las evaluaciones del estado de conservación de la ranita del Pehuenche la han colocado en la categoría más alta de amenaza: “en peligro” por la Asociación Herpetológica Argentina (Vaira et al., 2012), cuarta en orden de prioridad entre los 58 anfibios evaluados de Chile (Vidal et al., 2024) y “en peligro crítico” por la Unión Internacional para la Conservación de la Naturaleza (IUCN, 2019), según los criterios B1ab basados en su extensión de presencia estimada y su disminución continua estimada, provocada principalmente por la pavimentación de la ruta. El área de ocupación de la especie (AOO sensu UICN) estimada actualmente es de 4.84 km2 y su extensión de presencia (EOO sensu UICN) 497.9 km2 (Corbalán et al., 2023). En cuanto a las amenazas consideradas en la categorización de IUCN (2019), se enumeran el desvío de los cursos de agua por la construcción de la ruta, el impacto del ganado, el cambio climático, la presencia del hongo quitridio (Batrachochytrium dendrobatidis) y la depredación por salmónidos exóticos invasores tales como la trucha arcoíris (Oncorhynchus mykiss)y trucha marrón (Salmo trutta) (Corbalán et al., 2023; Ghirardi et al., 2014; Zarco et al., 2020).
Si bien los avances en el conocimiento de la distribución de A. pehuenche han sido importantes en los últimos años, aún se desconocen aspectos básicos de la ecología, sistemática, reproducción, comportamiento y estrategias ecofisiológicas de esta especie en los humedales de altura. Por tratarse de una especie endémica y amenazada, la historia de vida y demografía son fundamentales para la evaluación del estatus de conservación (Luja et al., 2015). Los programas de seguimiento de poblaciones son necesarios para identificar y detectar disminuciones que amenacen la persistencia de poblaciones y deben llevarse a cabo en un marco de gestión adaptativa que permita realizar monitoreos que maximicen la detección y minimicen el esfuerzo (Pollock, 2006, Yoccoz et al., 2001). A su vez, la definición de subpoblaciones es una herramienta útil que permite definir su estado actual y priorizar acciones de conservación (Velasco, 2018).
El objetivo de este trabajo fue evaluar el estado de conservación actual de A. pehuenche en el valle Pehuenche. Esta información es fundamental para estimar tendencias poblacionales a largo plazo, evaluar el impacto de las amenazas y el éxito de futuras acciones de manejo. En este trabajo se muestran los primeros datos del programa de monitoreo iniciado en 2021 en el valle Pehuenche. A partir del mismo, se definen y delimitan subpoblaciones como unidades de conservación sobre las que se deben priorizar las acciones.
Materiales y métodos
El área de estudio corresponde al valle Pehuenche, en el lado argentino de la zona limítrofe entre Argentina y Chile; forma parte de los Andes centrales, en el departamento de Malargüe, suroeste de la provincia de Mendoza. Las precipitaciones anuales son de 400 a 600 mm (Rivera et al., 2018) y están influidas por los vientos provenientes del Pacífico sur, creando un gradiente de precipitación y humedad de oeste a este con fuertes nevadas en invierno (Garreaud et al., 2009). Durante la primavera-verano, el deshielo alimenta los humedales, denominados localmente vegas o mallines, donde se asientan familias con su ganado en los puestos, denominados reales o riales. El área es considerada un corredor ecológico y cultural trashumante de gran importancia (Llano et al., 2021).
La cuenca del arroyo Chico en Argentina incluye las subcuencas donde se distribuye A. pehuenche: arroyos Pehuenche y Callao (Corbalán et al., 2023). El arroyo Chico es afluente del río Grande en el departamento de Malargüe, provincia de Mendoza. En Chile, el área de distribución de la especie se ubica en la cuenca del río Maule, con 2 subpoblaciones posiblemente aisaldas: laguna del Maule y Lo Aguirre (Correa et al., 2013, 2018).
Durante 3 temporadas se muestrearon 14 arroyos tributarios del arroyo Pehuenche (fig. 1). Doce de los 14 arroyos fueron muestreados exhaustivamente y en los 2 restantes (B0 y A8), solo se constató la presencia de la especie. La especie fue observada en la desembocadura de los arroyos de primer orden en el arroyo Pehuenche.
Siguiendo a Corbalán et al. (2010) y Prado et al. (2019), los arroyos de primer orden que desembocan en el arroyo Pehuenche se distinguen, según su ubicación respecto a este último, en arroyos A que se ubican hacia el sur y son atravesados por la ruta Núm. 145, mientras que los arroyos B se ubican al norte del arroyo Pehuenche (fig. 1). A los arroyos con bifurcaciones y cursos de agua paralelos a menos de 100 m de distancia se los denominó con el mismo nombre. Durante el estudio, se tomaron datos de temperatura del agua con termómetro de mercurio, así como pH, oxígeno disuelto y conductividad con sonda multiparamétrica Lutron WA-2017SD, y de temperatura ambiente mediante la aplicación yr (Jensen et al., 2007). La conductividad fue baja, entre 0 y 181.56 μS/cm (n = 65), el valor medio del pH estuvo cercano a la neutralidad 6.41 ± 1.2, variando entre 3.29 y 8.25 (n = 77) y la concentración de oxígeno disuelto varió entre 1.3 y 15.8 mg/l (n = 16). La temperatura ambiente durante los muestreos osciló entre 2 y 21 ºC (n = 89), y la temperatura del agua entre 2 y 17.6 ºC (n = 75).
Se realizaron un total de 14 salidas de campo con una duración de 2 a 4 días/noches (tabla 1). Las 14 salidas se distribuyeron en 3 temporadas; cada una se inicia con el deshielo (octubre-noviembre-diciembre) y finaliza con la caída de las primeras nevadas (marzo-abril). En enero de 2021 se iniciaron muestreos preliminares diurnos y nocturnos consistentes en encuentros visuales sin manipulación de individuos. Los muestreos nocturnos iniciaron luego de la puesta del sol que coincide con el pico de actividad de los individuos adultos. Se optó por continuar con los muestreos nocturnos debido a que no se obtuvieron diferencias significativas en la cantidad de larvas entre el día y la noche (W = 191, p = 0.859).
Figura 1. Arroyos muestreados en la cuenca del valle Pehuenche, distribuidos en 7 subpoblaciones locales: I. Nacientes, II. del Límite, III. Pichintur, IV. Rial Rojas, V. Nueva, VI. Campanaria, VII. Cajón Largo. Los arroyos de cada subpoblación se indican con el mismo color.
Se contabilizaron adultos, juveniles y larvas usando la técnica de encuentro visual (Crump y Scott, 1994). Los transectos fueron de rumbo variable siguiendo el curso del arroyo y el ancho fue de 1 m a cada lado del arroyo. Cada transecto se realizó con 2 a 5 observadores. Siguiendo las recomendaciones de Pereyra et al. (2021), al menos un observador tenía experiencia previa y las salidas se programaron en días con condiciones meteorológicas similares: días sin lluvias, mayormente despejados y con vientos leves a moderados.
Para los estadios maduros se registró sexo (macho, hembra e indeterminado). Se registró punto GPS y hora de inicio y de finalización del transecto. Se calcularon las abundancias relativas como individuos/área e individuos/tiempo. El área de los arroyos se consideró como el tramo muestreado en metros multiplicado por 2 m de ancho. Los individuos contabilizados estuvieron a no más de 1 m de distancia del curso del arroyo, cuando éste está claramente definido, y solo se observaron más dispersos en las zonas húmedas de vegas. Para el cálculo de individuos/tiempo se usó el tiempo en minutos de la duración del muestreo (Pereyra et al., 2021).
Adicionalmente, se realizaron muestreos en transectos de 800 m de longitud en los márgenes de la calzada: 10 en la temporada estival de 2021 y 5 en las temporadas siguientes. Este registro se realizó ya que en enero de 2018 se observaron individuos deshidratados o muertos, adyacentes a un cordón o bordillo de 20 cm de altura y 15 cm de ancho.
Se definieron subpoblaciones, siguiendo a Velasco (2018), formadas por un grupo de arroyos que contienen individuos de A. pehuenche, con hábitat adecuado (sensu Corbalán et al., 2010; Correa et al., 2013) y cuya distancia entre ellos no fue mayor a 500 m lineales. De este modo, los 14 arroyos iniciales fueron agrupados en 7 subpoblaciones (fig. 1). Los nombres de las subpoblaciones se relacionan con referencias a las características del paisaje donde se encuentran, excepto la subpoblación denominada Nueva. Se calculó el índice de conectividad (IC) entre subpoblaciones de acuerdo con la fórmula de Lin (2009), modificada por Velasco (2018): IC = A1*(1/D1*T1) + A2*(1/D2*T2), donde Ai es el área (= tamaño poblacional) de la población local vecina hacia el lado i, Di es la distancia a la población local vecina hacia el lado i y Ti la presencia de truchas en hábitat intermedios (presencia multiplica por 2, ausencia multiplica por 1). Para estimar el área correspondiente a cada subpoblación, se usaron las coordenadas GPS de los muestreos de campo y en el caso de las 2 subpoblaciones donde solo se constató presencia, se estimó tamaño del área en Google Earth Pro.
Tabla 1
Temporadas y subpoblaciones en las que se realizaron los muestreos de Alsodes pehuenche. Se indican la cantidad de muestreos realizados en la ruta y los nombres de los arroyos (tipos A, B; P: arroyo Pehuenche) muestreados por subpoblación.
Temporada
Mes
Quincena primera (1) segunda (2)
Ruta
Subpoblaciones
I
II
III
IV
V
VI
VII
1 (2021)
enero
1
2
B0
A1, A2
enero
2
6
A1, A2, A3, A4
A5
A7
febrero
2
1
A1, A2
B2
B3
abril
2
1
A1, A2
A5
A8
2 (2021-2022)
noviembre
2
1
A1, B1
B2
A5
A7
febrero
1
A2
B3
marzo
1
A1
B2
marzo
2
B1
B3
3 (2022-2023)
noviembre
2
1
A5
diciembre*
1
1
A1, A3, B1
B2, B2
A5-B3
A6
A7
enero
1
1
A2, P
A5, B3, P
A6, P
A7, P
febrero
2
1
A1, P
A7, P
marzo
2
A3, P
B4, P
B6, P
Las amenazas que se registraron durante los conteos se consideraron de manera cualitativa, en una escala de 0 a 3, de acuerdo con la intensidad de la amenaza (Velasco, 2018). En la tabla 2 se muestran las amenazas consideradas: 1) la presencia de salmónidos que fueron registrados por encuentro visual; 2) la sequía observada de arroyos que podría ser reversible según la época del monitoreo y cárcavas permanentes cuya profundidad va en aumento; 3) la presencia de ganado, principalmente vacuno y caprino, el primero es el que podría causar mayor impacto debido al mayor uso de las vegas; 4) mortalidad de individuos por causas indeterminadas; 5) la ruta, considerada como una barrera para la dispersión, ya sea porque las alcantarillas no fueron diseñadas como pasos de fauna o porque la altura del cordón o bordillo construido sobre la misma es muy alto para el libre tránsito de ranas juveniles y adultas. Y a pesar de que la ruta representa una barrera, la construcción posterior de rampas, con el objetivo de mitigar este impacto, se considera una acción concreta de conservación. Se registró, además, la presencia de depredadores no acuáticos potenciales y de otras especies de anfibios, pero ninguno de estos casos se considera como amenaza, aunque podrían representar interacciones interespecíficas negativas.
El estado de conservación (EC) relativo de cada subpoblación se obtuvo a partir de la sumatoria de los valores asignados al índice de conectividad y las amenazas (Velasco, 2018). Los valores fueron estandarizados (ECE = EC subpoblación – promedio de todos los EC/desviación estándar de todos los EC) y el valor resultante se multiplicó por -1. Así, los valores negativos de ECE quedaron relacionados con situaciones menos favorables. Se establecieron 2 categorías de prioridades de conservación: baja a media (valores positivos de ECE) y alta (valores negativos de ECE). Los valores altos son los que requieren medidas más urgentes de manejo (Velasco, 2018).
Tabla 2
Variables consideradas para evaluar estado de conservación de las subpoblaciones de Alsodes pehuenche en el valle Pehuenche. IC: Índice de conectividad. Valores 0 a 3 son los que se le asignan a cada variable.
Variables
0
1
2
3
Área (m2)
7,500-10,000
5,000-7,500
2,500-5,000
1,000-2,500
IC1
7.51-10
5.1-7.5
2.51-5
0-2.5
Amenazas
Efecto especies exóticas: salmónidos
sin
presencia registrada
presencia registrada en más de un conteo
presencia registrada y presencia de anfibio/s con signo de depredación
Fragmentación por la ruta
Sin ruta
Sin cordón o bordillo
Con cordón o bordillo y con rampas
Con cordón o bordillo y sin rampas
Pérdida de hábitat por sequía/ cárcavas
Sin evidencias de sequía ni cárcavas
Algún arroyo parcialmente seco
Algún arroyo parcialmente seco y/o con presencia cárcavas
Algún arroyo completamente seco y/o presencia de individuos muertos por sequía
Efecto del ganado
Sin ganado
Con caprinos
Con vacunos
Con vacunos y cabras
Indeterminada
Sin registro de individuos muertos sin causa aparente
Registro de individuos con manchas en la piel
Registro de individuos con manchas y uno muerto sin causa aparente
Registro de más de un individuo muerto sin causa aparente
1 = Índice de conectividad calculado de acuerdo con Lin (2009), modificado por Velasco (2018).
Se realizaron análisis de los conteos con R versión 4.1.3 y los análisis estadísticos consideraron 0.05 de nivel de significación de alfa. La normalidad de los datos se verificó con la prueba de Shapiro-Wilk. La cantidad de individuos (adultos, juveniles y larvas) por área y por hora no se distribuyó normalmente (W < 0.82934, p < 0.001), por lo que se usaron las pruebas estadísticas no paramétricas de Mann-Whitney-Wilcoxon y de Kruskal-Wallis para 2 grupos y más de 2 grupos, respectivamente. Se evaluó estadísticamente si hubo diferencias entre adultos y juveniles considerados en conjunto versus larvas. También se evaluaron diferencias en relación con variables temporales (temporadas, meses) y espaciales (entre arroyos A y B y entre subpoblaciones). Cuando se obtuvieron diferencias significativas con la prueba de Kruskal-Wallis, se usó el paquete conover.test versión 1.1.5 (2017), basado en Conover-Iman Test para comparaciones múltiples. En todos los casos, los resultados se expresan en mediana, el rango intercuartílico (IQR) como medida de dispersión, los valores mínimos y máximos (min-max) y el tamaño de la muestra (n).
Resultados
Los transectos muestreados alcanzaron un total de 51,292 m lineales recorridos en 181 horas con un esfuerzo de muestreo 12.35 horas/persona. De los 14 arroyos estudiados, todos tuvieron presencia de la especie y el área total fue de 0.04 km². Más de la mitad corresponde a los arroyos denominados A (56.2%).
Cuando se analizaron los conteos respecto de la cantidad de observadores, la correlación de Spearman resultó en valores de rho cercanos a 0, lo que sugiere que no hay correlación lineal (p > 0.05), tanto para individuos postmetamórficos (por área: rho = -0.0427, n = 99; por hora: rho = 0.0975, n = 99), como para larvas (por área: rho = -0.0297, n = 92; por hora rho = -0.0063, n = 92).
A lo largo del periodo de muestreo se observaron 5.82 adultos y juveniles/área (IQR = 9.27, 0-45 min-max, n = 99) y 13.64 adultos y juveniles/hora (IQR = 30.29, 0-108 min-max, n = 99); 6.24 larvas/área (IQR = 31, 0-175 min-max, n = 92) y 17.76 larvas/hora (IQR = 65, 0-367 min-max, n = 92). La comparación entre estadios muestra menos postmetamórficos que larvas, tanto para los conteos de individuos por área (W = 12.524, p < 0.001) como por hora (W = 26.918, p < 0.001).
Tabla 3
Prioridades de conservación para las subpoblaciones de Alsodes pehuenche en el valle Pehuenche, con base en el tamaño de la población, la conectividad y las amenazas.
Sub-población
Área (m2)
IC
Amenazas
ECE
PC1
Ruta
Sequía/cárcavas
Ganado
Muertes indet.
Salmónidos
I. Nacientes
4,044
8.41
0
0
2
0
1
0.88
Baja
II. del Límite
5,744
8.39
2
3
2
2
3
-1.26
Muy alta
III. Pichintur
5,002
9.91
0
0
2
3
2
0.08
Media
IV. Rial Rojas
6,208
6.05
1
3
2
1
2
-0.73
Alta
V. Nueva
2,160
9.61
1
0
2
3
0
-0.19
Media
VI. Campanaria
5,860
5.26
1
0
1
3
3
-0.46
Media
VII. Cajón Largo
9,550
6.64
0
0
1
0
0
1.69
Muy baja
1 PC: Prioridad de conservación calculada de acuerdo con Velasco (2018).
Las comparaciones entre las 3 temporadas no mostraron diferencias significativas para ninguno de los grupos estudiados adultos y juveniles/área (H = 1.9935, df = 2, p = 0.369), adultos y juveniles/hora (H = 1.3599, df = 2, p = 0.5066), larvas/área (H = 0.13936, df = 2, p = 0.933) y larvas por hora (H = 0.6051, df = 2, p = 0.7389). Entre meses, la diferencia no fue significativa para larvas (H = 4.5278, df = 5, p = 0.4762 por área, H = 4.0986, df = 5, p = 0.5353 por hora), en cambio para los postmetamórficos solo fue significativa para los conteos por área (H = 13.97, df = 5, p = 0.0158). Los análisis post hoc indican menores cantidades de adultos y juveniles en febrero respecto a diciembre (p = 0.0075) y enero (p = 0.0021), como también en marzo respecto a enero (p = 0.0185, fig. 2).
Figura 2. Variación mensual de la abundancia de adultos y juveniles (individuos/200 m2) de Alsodes pehuenche. Los meses con diferentes códigos de letras indican diferencias significativas (p < 0.05).
Figura 3. Abundancia de Alsodes pehuenche (individuos/200 m2) entre 5 subpoblaciones. A, Adultos y juveniles; B, larvas. Las subpoblaciones con diferentes códigos de letras indican diferencias significativas (p < 0.05).
De los 14 arroyos del valle Pehuenche con presencia de A. pehuenche, los arroyos A tienen un área de ocupación de 49% respecto de los arroyos B con 51%. Y en los 12 arroyos donde se realizaron conteos por área, éstos fueron mayores en los arroyos A que en los B, tanto para adultos y juveniles (H = 31.977, df = 2, p < 0.001), como para larvas (H = 10.42, df = 2, p = 0.0055).
Se reconocieron 7 subpoblaciones en el valle Pehuenche: Nacientes, del Límite, Pichintur, Rial Rojas, Nueva, Campanaria y Cajón Largo (fig. 1). De éstas, se tienen datos de conteo de 5 (todas, excepto Nacientes y Cajón Largo). Cuando se comparan estas 5 subpoblaciones, se encuentran diferencias significativas tanto para adultos y juveniles/área (H = 17.436, df = 4, p = 0.0016), como para larvas/área (por área H = 23.639, df = 4, p < 0.001). Se registraron más adultos y juveniles en las subpoblaciones Rial Rojas y Nueva, y más larvas en Rial Rojas (fig. 3). Sin embargo, estas diferencias no son significativas cuando se analizan los datos de postmetamórficos/hora (H = 8.8053, df = 5, p = 0.1171) y larvas/hora (H = 4.0986, df = 5, p = 0.5353).
El único lugar donde se encontraron solo larvas fue en una charca de la subpoblación del Límite. Éstas coexistían con larvas y adultos de rana de 4 ojos (Pleurodema bufoninum). Además, esta última especie ha sido observada eventualmente coexistiendo con A. pehuenche en las subpoblaciones Rial Rojas, Campanaria y del Límite. Otras especies registradas durante los muestreos, que se identifican como posibles depredadores de A. pehuenche son el zorro gris (Lycalopex gymnocercus), el chiñe o zorrino (Conepatus chinga), la gaviota capucho café (Chroicocephalus maculipennis) y el águila mora (Geranoaetus melanoleucus).
Aunque la detección de huevos no fue objeto de este estudio, dado que no se realizó búsqueda activa en oquedades ni se manipularon hembras, en noviembre 2022 se observó una masa de 20 huevos aproximadamente, flotando en una pequeña poza de la subpoblación Rial Rojas en época de deshielo. Los huevos no eran pigmentados y cada uno midió entre 6 y 7 mm de diámetro.
Los índices de conectividad calculados para cada una de las subpoblaciones se muestran en la tabla 3. El arroyo Pehuenche representa la principal conexión entre subpoblaciones. En este arroyo se encontraron individuos adultos en la desembocadura de arroyos de primer orden pertenecientes a las subpoblaciones del Límite, Rial Rojas, Nueva y Campanaria (tabla 1). Si bien Cajón Largo tiene relativamente bajo índice de conectividad, el área de esta subpoblación es la mayor de todas.
Se registraron 24 individuos muertos durante el periodo de estudio: 1) 6 individuos adultos —2 hembras, 2 machos y 2 adultos indeterminados— en el mes de enero de la temporada estival 2021 y 2 en la temporada 2022-2023 en los muestreos realizados en la ruta internacional ARG145; 2) 3 individuos —1 adulto indeterminado y 2 larvas— encontrados muertos por desecación sobre el curso de un arroyo de Rial Rojas que mostró una disminución abrupta del caudal luego del deshielo entre noviembre y diciembre 2022; 3) 4 adultos —3 machos y 1 indeterminado— encontrados con signos de depredación (patas traseras lastimadas o mutiladas) al costado o dentro del curso del arroyo donde se registra presencia de salmónidos, esto es, en las subpoblaciones del Límite y Campanaria; 4) 6 adultos —2 machos y 4 indeterminados—, 1 juvenil indeterminado y 2 larvas encontrados muertos sin causa evidente, dentro del curso del arroyo o próximo a éste.
Finalmente, los valores de ECE negativos usados como indicadores, permitieron identificar a las subpoblaciones del Límite y Rial Rojas como unidades de conservación prioritarias, de las cuales la del Límite requiere esfuerzos más urgentes.
Discusión
Corbalán et al. (2010) reportaron 355 individuos de A. pehuenche en 2,500 m lineales (equivalente a 14 individuos/200 m2) en un muestreo realizado en 2008 en arroyos de la subpoblación del Límite. Si se compara ese valor con el obtenido en este estudio para los mismos arroyos en el mismo mes en 2021 (8 individuos/200 m2), el primero es mayor, pero se encuentra dentro del intervalo de variación de este estudio. Cabe mencionar que se usaron 2 técnicas diferentes para el conteo (búsqueda activa de individuos en oquedades durante el día y encuentro visual nocturno, con 3 observadores en los 2 casos), por lo que, con la información disponible actualmente, solo la mortalidad de individuos reportada desde 2008 permite estimar una tendencia poblacional decreciente para esta subpoblación.
En 2 arroyos muy cercanos a la subpoblación del Límite en Chile, Correa et al. (2013) reportaron 20 y 24 adultos/h o 15 y 66 adultos/200 m². Estos últimos datos corresponden a muestreos nocturnos realizados en marzo de 2012, con 4 observadores. La cantidad máxima de adultos por área observados por Correa et al. (2013) es mayor al máximo obtenido en este estudio, lo cual puede deberse a un error de muestreo en solo 30 m lineales, o bien a fluctuaciones poblacionales naturales (Kissel et al., 2020). En arroyos de Rial Moreno, a 21 km al NE de la población del valle Pehuenche, Corbalán et al. (2023) reportaron 26 adultos/hora y 4 juveniles/hora en un muestreo nocturno realizado en enero de 2019, los cuales se encuentran dentro de valores obtenidos en el valle Pehuenche en este estudio.
Durante las 3 temporadas consecutivas muestreadas en este trabajo, no se detectaron cambios significativos para ningún estadio de desarrollo de A. pehuenche. Esto puede deberse a que se trata de un periodo corto en términos de monitoreo. Por lo tanto, es necesario mantener los muestreos para conocer tendencias poblacionales a largo plazo. Por otro lado, la detección de individuos por encuentro visual a lo largo de los arroyos, podría compararse con otros estudios enfocados al monitoreo poblacional de la especie para lograr establecer un óptimo en términos de esfuerzo de muestreo. Dado que estas investigaciones dependen del presupuesto disponible y de limitaciones logísticas (Joseph et al., 2006) principalmente ligadas a la elevada demanda de horas/persona en un ambiente de alta montaña, se debe buscar una estrategia que permita satisfacer tanto la demanda de datos pertinentes para la gestión, como la obtención de información ecológica de calidad (Stephens et al., 2015; Yoccoz et al., 2001).
En relación con la primera acción de conservación llevada a cabo en la población del valle Pehuenche, que consistió en la construcción de 800 m de cordón o bordillo en la ruta y 2 cámaras de infiltración para evitar que la sal vertida en la ruta llegue a los arroyos, provocó la deshidratación y muerte de 18 individuos que fueron encontrados en diciembre de 2017, y 50 en enero de 2018. Posiblemente, la construcción a posteriori de rampas entre el cordón o bordillo y la calzada en febrero de 2018, ha evitado que se vuelvan a registrar mortalidades tan abruptas. Si bien nunca pudo constatarse el uso de las rampas por parte de la especie, las mismas habrían mejorado la conexión entre las secciones superior e inferior de los arroyos. Esto demuestra la necesidad de seguimiento de las acciones de conservación que se llevan a cabo. Pero, por otro lado, si bien la ruta pudo haber provocado una disminución poblacional (Corbalán et al., 2010; IUCN, 2019), el número elevado de individuos muertos registrado en este estudio alerta sobre la necesidad de avanzar en el conocimiento de otras amenazas, como la depredación por salmónidos invasores, el cambio climático y la infección por el hongo quitridio (Batrachochytrium dendrobatidis) de los anfibios.
En este trabajo, de todos los estadios evaluados, las larvas fueron las más abundantes, las más estables en el tiempo y presentaron el mismo patrón de variación que los adultos entre arroyos A y B, y subpoblaciones (fig. 3). Al igual que lo reportado por Corbalán et al. (2010, 2023), se encontraron larvas de diferentes tamaños conviviendo en pozas, pero también se observaron en rápidos, remansos y debajo de la vegetación acuática. Estos resultados son coherentes con la estrategia de especies con desarrollo larval plurianual (Úbeda, 2021). Por otro lado, la menor cantidad de juveniles registrada respecto de adultos podría ser un problema de detectabilidad por su tamaño (Petrovana y Schmidt, 2019), podría corresponder a una segregación por microhábitats según el estadio (Gonwouo et al., 2022), o bien, ser evidencia de una dinámica poblacional particular solo en esta fase de su ciclo de vida (Kissel et al., 2020).
Los muestreos preliminares realizados de día y de noche demuestran que hay arroyos permanentes que solo tienen adultos. Los estudios a futuro podrán determinar las causas que posiblemente puedan estar asociadas con aspectos fisicoquímicos del agua, o a la dispersión de individuos. La información actual permite suponer que las rutas de dispersión de A. pehuenche con base en sus hábitos acuáticos, son los mismos arroyos. Los registros de individuos secos en la ruta, principalmente entre diciembre y enero, al igual que la mayor cantidad de adultos y juveniles registrados en estos meses (fig. 2), podrían estar indicando una mayor dispersión en esa temporada del año.
Los arroyos del valle Pehuenche son los mejores conocidos hasta el momento y el área que ocupan representa solo 6% del área de distribución de A. pehuenche (487.9 km²) reportada por Corbalán et al. (2023). De la misma manera, habiendo considerado en nuestro estudio casi todos los arroyos presentes en el valle Pehuenche, representa 0.8% del área de ocupación total para la especie (4.84 km²; Corbalán et al., 2023). El espacio sin ocupación efectiva de la especie, actualmente, es muy grande (Corbalán et al., 2023), aunque en el pasado pudo haber estado presente en un área mayor si se comparan los registros de presencia en Cajón Grande (Cei y Roig, 1965; Corbalán et al., 2023). Si se considera desde la descripción de la especie en 1965, A. pehuenche ha reducido su área de distribución histórica, lo cual puede deberse a diferentes causas. La depredación por salmónidos en la actualidad podría ser la causa de que la especie haya quedado restringida solo a las zonas altas de las cuencas. Por ello, es necesario conocer la distribución de salmónidos e identificar dónde coexisten estos peces y la rana. Donde esto ocurre en el valle Pehuenche, se registraron adultos muertos de A. pehuenche con signos de depredación. Así, los salmónidos representan una barrera para la dispersión de las ranas, reduciendo la conectividad entre subpoblaciones y dentro de ellas entre arroyos A y B (tabla 3). Como se ha demostrado para otras especies de anfibios, la consecuencia es la disminución del intercambio genético o demográfico (e.g., Kacoliris et al., 2022; Velasco, 2018). Por lo tanto, para conservar las subpoblaciones se requiere asegurar su conectividad, tanto entre las secciones inferior y superior de los arroyos A impactados por la ruta, como dentro de las subpoblaciones entre los arroyos A y B, y entre las subpoblaciones conectadas a través del arroyo Pehuenche.
Las observaciones de campo sugieren que los individuos se distribuyen de manera agrupada a lo largo de los cursos de agua y vegas, no solo las larvas en las pozas, sino también los adultos a lo largo de los arroyos. Esto debe ser evaluado en la etapa reproductiva a inicios de la temporada y al final de ésta, cuando el caudal disminuye y algunos cauces se secan total o parcialmente, donde solo quedan pozas pequeñas con agua. Si este efecto es acentuado por la disminución de cobertura permanente de nieve en la cuenca del Río Grande (Aumassanne et al., 2019), es posible que más arroyos, que todavía mantienen agua hasta el final de la temporada, se sequen como ha ocurrido en los arroyos A3 y A4 de la población del Límite, aumentando así la fragmentación del hábitat. Si A4 no se hubiera secado, las 3 subpoblaciones (del Límite, Pichintur y Rial Rojas) estarían conectadas, formando una sola subpoblación (fig. 1).
Si bien gran parte de las amenazas han sido identificadas (Corbalán et al., 2010, 2023), la mayoría no han sido cuantificadas. Con base en las observaciones realizadas durante los muestreos en este estudio, se sistematizaron las amenazas para cada arroyo y cada subpoblación en el valle Pehuenche (tablas 2, 3). Como resultado de la priorización, las subpoblaciones del Límite y Rial Rojas se identifican como prioritarias para iniciar acciones concretas de conservación. Es posible que ambas sean fragmentos de una población mayor y que hayan estado unidas cuando el arroyo intermedio no estaba seco. En la del Límite se podría iniciar la mitigación de la depredación por salmónidos y reducir los efectos de la ruta. Es necesario continuar con el seguimiento y cuantificación de las amenazas, considerar las aún no evaluadas, tales como las que pueden estar generando las actividades turísticas, el vertido de sal en la ruta, crecidas extraordinarias y otras potenciales como el tendido de líneas de alta tensión, planificada desde el Maule (Chile) al río Diamante (San Rafael, Argentina).
El avance logrado en 20 años de estudios sobre la biología y conservación de este anfibio endémico de Argentina y Chile nos brinda herramientas para sostener acciones concretas de manejo que alivien alguna de las amenazas y que aseguren la viabilidad de las poblaciones a largo plazo. Se espera que un programa de monitoreo anual permita avanzar en el conocimiento de las tendencias poblacionales a largo plazo. Las subpoblaciones del valle Pehuenche son las mejor conocidas hasta el momento y han sufrido disminuciones, fragmentaciones y también extinciones locales. La priorización de su estado de conservación brinda herramientas para implementar acciones necesarias a corto plazo.
Agradecimientos
Por la colaboración en el trabajo de campo, se agradece a estudiantes de la Tecnicatura en Conservación de la Naturaleza Sede Malargüe del IEF Núm. 9-016, especialmente a Julián Rodríguez, Armando Barros, Francisco Jofré y Pablo Lucero; también a estudiantes voluntarios y Graciela Ríos. A Karen Olate por la elaboración del mapa. Y a un revisor anónimo por sus aportes a la primera versión del manuscrito y a los dos revisores que realizaron aportes importantes para mejorar el manuscrito. La investigación se logró gracias al financiamiento del proyecto SIIP 06/M003 Resol. 3978/2022 UNCUYO y aportes personales de investigadoras y estudiantes.
Referencias
Aumassanne, C. M., Beget, M. E., Di Bella, C. M., Oricchio, P. y Gaspari, F. J. (2019). Cobertura de nieve en las cuencas de los ríos Grande y Barrancas (Argentina) y su relación con la morfometría. Revista de Investigación Agropecuaria, 45, 394–403.
Cei, J. M. (1976). Remarks on some neotropical amphibians of the genus Alsodes from southern Argentina. Atti della Società Italiana di Scienze Naturali e del Museo Civico di Storia Naturale di Milano, 117, 159–164.
Cei, J. M. (1980). Amphibians of Argentina. Monitore Zoologico Italiano, N.S. Monografia 2. Florencia: Universitá degli studi di Firenze.
Cei, J. M. y Roig, V. G. (1965). The systematic status and biology of Telmatobius montanus Lataste (Amphibia: Leptodactylidae). Copeia, 4, 421–425.
Corbalán, V., Debandi, G. y Martínez, F. (2010). Alsodes pehuenche (Anura: Cycloramphidae): past, present and future. Cuadernos de Herpetología, 24, 17–23.
Corbalán, V., Debandi, G., Martínez, F. y Úbeda, C. (2014). Prolonged larval development in the critically endangered Pehuenche’s Frog Alsodes pehuenche: implications for conservation. Amphibia–Reptilia, 35, 283–292. http://dx.doi. org/10.1163/15685381-00002951
Corbalán V., Debandi G., Literas S., Álvarez L., Rivera J. A., Dopazo J. et al. (2023). Newly discovered sites and potential threats for the critically endangered frog, Alsodes pehuenche, in Southern South America. Herpetological Conservation and Biology, 18, 48–56.
Correa, C., Pastenes, L., Iturra, P., Calderón, P., Vásquez, D., Lam, N. et al. (2013). Confirmation of the presence of Alsodes pehuenche Cei, 1976 (Anura, Alsodidae) in Chile: morphological, chromosomal and molecular evidence. Gayana, 77, 117–123. http://dx.doi.org/10.4067/S0717-65382013000200006
Correa, C., Zepeda, P., Lagos, N., Salinas, H., Palma, R. E. y Vásquez, D. (2018). New populations of two threatened species of Alsodes (Anura, Alsodidae) reveal the scarce biogeographic knowledge of the genus in the Andes of central Chile. Zoosystematics and Evolution, 94, 349–358.
Correa, C. J. Morales, C. Schussler y J. C. Ortiz. (2020). An enigmatic population of Alsodes (Anura, Alsodidae) from the Andes of central Chile with three species-level mitochondrial lineages. Mitochondrial DNA Part A DNA Mapping, Sequencing, and Analysis, 31, 25–34. https://doi.org/10.1080/24701394.2019.1704744
Crump, M. L. y Scott, N. J. (1994). Visual encounter surveys. En W. R.Heyer, M. A. Donnelly, R. W. Mc Diarmid, L. A. C. Hayek y M. S. Foster (Eds.). Measuring and Monitoring Biological Diversity Standard Methods for Amphibians (pp. 84–92). Washington D.C.: Smithsonian Institution Press.
Cuevas, C. C. y Formas, J. R. (2003). Cytogenetic analysis of four species of the genus Alsodes (Anura: Leptodactylidae) with comments about the karyological evolution of the genus. Hereditas, 138, 138–147. https://doi.org/10.1034/j.1601-5223.2003.01677.x
Garreaud, R., Vuille, M., Compagnucci, R. y Marengo, J. (2009). Present-day south american climate. Palaeogeography, Palaeoclimatology, Palaeoecology, 281, 180–195. http://dx. doi.org/10.1016/j.palaeo.2007.10.032
Ghirardi, R., Levy, M. G., López, J. A., Corbalán, V., Steciow, M. M. y Perotti, M. G. (2014). Endangered amphibians infected with the chytrid fungus Batrachochytrium dendrobatidis in austral temperate wetlands from Argentina. Herpetological Journal, 24, 129–133.
Gonwouo, N. L. Schäfer, M. y Tsekané, S. J. (2022). Goliath frog (Conraua goliath) abundance in relation to frog age, habitat, and human activity. Amphibian and Reptile Conservation, 16, e319.
Grant, E. H. C., Miller, D. A. y Muths, E. (2020). A synthesis of evidence of drivers of amphibian declines. Herpetologica, 76, 101–107. https://doi.org/10.1655/0018-0831-76.2.101
Green D. M., Lannoo M. J., Lesbarrères D. y Muths E. (2020). Amphibian population declines: 30 years of progress in confronting a complex problem. Herpetologica, 76, 97–100. https://doi.org/10.1655/0018-0831-76.2.97
Herrera, F. y Velásquez, N. A. (2016a). Dimorfismo sexual en Alsodes pehuenche Cei 1976 (Amphibia, Anura, Alsodidae). Boletín Chileno de Herpetología, 3, 4–6.
Herrera, F. y Velásquez, N. A. (2016b). Uso de cuevas en Alsodes pehuenche Cei 1976 (Amphibia, Anura, Alsodidae). Boletín Chileno de Herpetología, 3, 17–20.
Jensen, I. S., Haugen, V. F. y Skålin, R. (2007). Yr. Norwegian Meteorological Institute and the Norwegian Broadcasting Corporation. Recuperado el 15 de agosto, 2024 de https://www.yr.no/nb
Joseph, L. N., Field, S. A., Wilcox, C. y Possingham, H. P. (2006). Presence-absence versus abundance data for monitoring threatened species. Conservation Biology, 20, 1679–1687. https://doi.org/10.1111/j.1523-1739.2006.00529.x
Kacoliris, F. P., Berkunsky, I., Acosta, J. C., Acosta, R., Agostini, M. G., Akmentins, M. et al. (2022). Current threats faced by amphibian populations in the southern cone of South America. Journal for Nature Conservation, 69, 126254. https://doi.org/10.1016/j.jnc.2022.126254
Kissel, A. M., Tenan, S. y Muths, E. (2020). Density dependence and adult survival drive dynamics in two high elevation amphibian populations. Diversity, 12, 478.
Lin, J. P. (2009). The functional linkage index: a metric for measuring connectivity among habitat patches using least-cost distances. Journal of Conservation Planning, 5, 28–37.
Llano, C., Durán, V., Gasco, A., Reynals, E. y Zárate, M. S. (2021). Traditional puesteros´ perceptions of biodiversity in semi-arid Southern Mendoza, Argentina. Journal of Arid Environments, 192, 104553. https://doi.org/10.1016/j.ja ridenv.2021.104553
Luedtke, J. A., Chanson, J., Neam, K., Hobin L., Maciel, A. O., Catenazzi, A. et al. (2023). Ongoing declines for the world’s amphibians in the face of emerging threats. Nature, 622, 308–314. https://doi.org/10.1038/s41586-023-06235-w
Luja, V., Rodríguez-Estrella, H. R., Schaub, M. y Schmidt, B. R. (2015). Among-population variation in monthly and annual survival of the Baja California treefrog, Pseudacris hypochondriaca curta, in desert oases of Baja California Sur, Mexico. Herpetological Conservation and Biology, 10, 112–122.
Pereyra, L. C., Etchepare, E. y Vaira, M. (2021). Manual de técnicas y protocolos para el relevamiento y estudio de anfibios de Argentina. San Salvador de Jujuy: Editorial de la Universidad Nacional de Jujuy.
Petrovana, S. O. y Schmidt, B. R. (2019). Neglected juveniles; a call for integrating all amphibian life stages in assessments of mitigation success (and how to do it). Biological Conservation, 236, 252–260. https://doi.org/10.1016/j.biocon. 2019.04.016
Piñeiro, A., Fibla, P., López, C., Velásquez, N. y Pastenes, L. (2020). Characterization of an Alsodes pehuenche breeding site in the Andes of central Chile. Herpetozoa, 33, 21–26. https://doi.org/10.3897/herpetozoa.33.e49268
Pollock, J. E. (2006). Detecting population declines over large areas with presence-absence, time-to-encounter, and count survey methods. Conservation Biology, 20, 882–892. https://doi.org/10.1111/j.1523-1739.2006.00559.x
Prado, W. S., Meriggi, J., Martínez, F. y Corbalán, V. (2019). Ampliación del área de distribución de Alsodes pehuenche en Argentina. Revista del Museo de La Plata, 4 (Suplem.), 1R–117R.
Rivera, J. A., Marianetti, G. y Hinrichs, S. (2018). Validation of CHIRPS precipitation dataset along the Central Andes of Argentina. Atmospheric Research, 213, 437–449. https: //doi.org/10.1016/j.pce.2022.103184
Stephens, P. A., Pettorelli, N., Barlow, J., Whittingham, M. J. y Cadotte, M. W. (2015). Management by proxy? The use of indices in applied ecology. Journal of Applied Ecology, 52, 1–6. https://doi.org/10.1111/1365-2664.12405
Úbeda, C. (2021). Estrategias reproductivas, hábitats y otros aspectos ecológicos de los anfibios altoandinos en la vertiente oriental de la Cordillera de los Andes. Boletín Chileno de Herpetología, 8, 10–21.
UICN (Unión Internacional para la Conservación de la Naturaleza), Species Survival Commission Amphibian Specialist Group. (2019). Alsodes pehuenche. IUCN Red List of threatened species, 2019. https://www.iucnredlist.org
Vaira, M., Akmentins, M., Attademo, M., Baldo, D., Barrasso, D., Barrionuevo, S. et al. (2012). Categorización del estado de conservación de los anfibios de la República Argentina. Cuadernos de Herpetología, 26 (Suplem. 1), 131–159.
Vaira, M., Pereyra, L. C., Akmentins M. S. y Bielby, J. (2017). Conservation status of Amphibians of Argentina: An update and evaluation of national assessments. Amphibian y Reptile Conservation, 11, e135.
Velasco, M. A. (2018). Dinámica poblacional y conservación de la ranita del Valcheta (Pleurodema somuncurense) (Cei, 1969), Patagonia, Argentina (Tesis doctoral). Universidad Nacional de La Plata, La Plata, Buenos Aires.
Velasco, M. A., Kacoliris, F. P., Berkunsky, I., Quiroga, S. y Williams, J. D. (2016). Current distributional status of the critically endangered Valcheta frog: implications for conservation. Neotropical Biology and Conservation, 11, 110–113. http://dx.doi.org/10.4013/nbc.2016.112.08
Vidal, M. A., Henríquez, N., Torres-Díaz, C., Collado, G. y Acuña-Rodríguez, I. S. (2024). Identifying strategies for effective biodiversity preservation and species status of Chilean amphibians. Biology, 13, 169. https://doi.org/10.33 90/biology13030169
Yoccoz, N. G., Nichols, J. D. y Boulinier, T. (2001). Monitoring of biological diversity in space and time. Trends in Ecology and Evolution, 16, 446–453. https://doi.org/10.1016/S0169- 5347(01)02205-4
Zarco, A., Corbalán, V. y Debandi, G. (2020). Depredación por truchas arcoíris invasoras en la rana de pecho espinoso Pehuenche, en peligro crítico. Journal of Fish Biology, 98, 878-880. https://doi.org/10.1111/jfb.14401