Natural regeneration of woody plants in the cloud forest on the Nevado de Colima volcano, Mexico
Mario Francisco Mateo-García a, Ramón Cuevas-Guzmán b, *, Enrique Valente Sánchez b, Enrique Jardel-Peláez b, José Guadalupe Morales-Arias b
a Universidad de Guadalajara, Centro Universitario de la Costa Sur, Programa de Maestría en Ciencias en Manejo de Recursos Naturales, Av. Independencia Nacional 151, 48900 Autlán de Navarro, Jalisco, México
b Universidad de Guadalajara, Centro Universitario de la Costa Sur, Departamento de Ecología y Recursos Naturales, Av. Independencia Nacional 151, 48900 Autlán de Navarro, Jalisco, México
*Autor para correspondencia: rcuevas@cucsur.udg.mx (R. Cuevas-Guzmán)
Recibido: 2 enero 2026; aceptado: 30 julio 2026
Resumen
La regeneración natural es fundamental en la dinámica de los ecosistemas forestales y su comprensión contribuye al diseño de prácticas de conservación, restauración y silvicultura. En 3 localidades del Parque Estatal Bosque Mesófilo del Nevado de Colima, México, se evaluaron la composición, diversidad y estructura de la regeneración natural de plantas leñosas con altura ≥ 10 cm y diámetro normal ≤ 2.5 cm, así como los factores ambientales que influyen en su distribución y abundancia. En cada localidad se establecieron 5 parcelas de 1,000 m², dentro de las cuales se ubicaron 10 subparcelas circulares de 5 m². Se determinaron la frecuencia, densidad, cobertura y valor de importancia de las especies. Asimismo, se realizaron análisis de agrupamiento, diversidad verdadera mediante números de Hill y redundancia. Se registraron 55 especies: 44 arbóreas y 11 lianas. La diversidad varió entre localidades y se identificaron grupos florísticos estadísticamente distintos. Las especies con mayor valor de importancia fueron Inga eriocarpa, Styrax ramirezii, Carpinus caroliniana y Zinowiewia concinna. La hojarasca, el microrrelieve, la elevación, la pendiente y la profundidad del horizonte superficial fueron las variables ambientales con mayor influencia. Los resultados aportan información para desarrollar estrategias de manejo y conservación de estos bosques.
Palabras clave: Análisis de agrupamiento; Análisis de redundancia; Bosque de niebla; Diversidad verdadera; Valor de importancia; Variables ambientales
Abstract
Natural regeneration is fundamental to forest ecosystem dynamics, and understanding this process is esencial for designing conservation, restoration, and silvicultural practices. At three sites within the Nevado de Colima Cloud Forest State Park, Mexico, we evaluated the composition, diversity, and structure of natural regeneration of woody plants ≥ 10 cm in height and ≤ 2.5 cm in diameter at breast height, as well as the environmental factors influencing their distribution and abundance. At each location, 5 1,000 m² plots were established, with 10 circular 5 m² subplots nested within each plot. Species frequency, density, cover, and importance values were calculated. Cluster analysis, true diversity analysis based on Hill numbers, and redundancy analysis were also performed. Fifty-five species were recorded: 44 tree species and 11 liana species. Species diversity varied among sites, and statistically distinct floristic groups were identified. The species with the highest importance value were Inga eriocarpa, Styrax ramirezii, Carpinus caroliniana, and Zinowiewia concinna. Leaf-litter cover, microrelief, elevation, slope, and topsoil depth were the most influential environmental variables. These findings provide valuable information for developing management and conservation strategies for cloud forests in the study area.
Keywords: Cluster analysis; Redundancy analysis; Cloud forest; True diversity; Importance values; Environmental variables
Introducción
La regeneración natural (RN) es un proceso fundamental en la dinámica de los bosques, a través del cual poblaciones y comunidades de plantas mantienen su resiliencia frente a los efectos de disturbios ecológicos de diferente magnitud que crean claros pequeños o extensos, en los cuales se inicia la sucesión (Ashton y Kelty, 2018; Chazdon, 2014; Chazdon et al., 2025; Pommerening et al., 2024; Veblen et al., 1992). Se considera un cambio direccional en la composición y estructura de la comunidad a lo largo del tiempo y representa la fase inicial del restablecimiento estructural y funcional del ecosistema (Connell y Slatyer, 1977). La RN puede ocurrir episódicamente o como un proceso relativamente continuo durante las distintas etapas del ciclo de desarrollo de los rodales (Oliver y Larson, 1996). En las fases iniciales predominan, generalmente, especies arbóreas heliófilas o con capacidad de rebrote; una vez que se cierra el dosel, continúan estableciéndose cohortes de especies tolerantes a la sombra, que pueden persistir en el sotobosque hasta que la apertura de claros en el dosel modifique el ambiente y permita su crecimiento (Ashton y Kelty, 2018; Oliver y Larson, 1996; Palik et al., 2021).
En las zonas húmedas semicálidas o templadas de México se desarrollan bosques latifoliados que se conocen como bosques mesófilos de montaña (BMM) (Rzedowski, 1978), cuya conservación y restauración son prioritarias por su alta diversidad florística, su composición de elementos holárticos y neotropicales y la pérdida de ca. 50% de su cobertura original (Conabio, 2010; Rzedowski, 1996). En estos ecosistemas predomina una dinámica de claros pequeños asociada a la muerte de árboles individuales, de manera que las especies establecidas a la sombra (regeneración avanzada) experimentan tasas de crecimiento mayores y contribuyen a que los claros en el dosel desaparezcan paulatinamente (Arriaga, 1994, 2000; Jardel-Peláez et al., 2004; Quintana-Ascencio et al., 2004; Ramírez-Marcial et al., 2006; Saldaña-Acosta y Jardel-Peláez, 1991).
Se ha postulado que la RN, en ecosistemas forestales, está fuertemente modulada por filtros ambientales que actúan de forma jerárquica. Estos filtros incluyen factores bióticos y abióticos que limitan o favorecen el establecimiento y la supervivencia de las especies, lo que podría generar patrones espaciales de regeneración que reflejan la adaptación diferencial de las especies y definen el ensamblaje de la comunidad (Cornwell et al., 2006; Diamond, 1975; HilleRisLambers et al., 2012; Keddy, 1992; Weiher y Keddy, 1995; Yao et al., 2022).
Se considera que los factores abióticos, como el clima, las propiedades físicas y químicas del suelo y la topografía, constituyen un primer nivel de filtrado ecológico al definir las condiciones ambientales en las que las especies pueden establecerse y persistir. Posteriormente, factores bióticos como la dispersión, la competencia, la facilitación, la herbivoría, los mutualismos y la cobertura del dosel influyen en el ensamblaje de las comunidades, mientras que los disturbios naturales o antropogénicos (huracanes, tormentas, sequías, incendios, tala y pastoreo, entre otros) modifican la intensidad y los efectos de ambos tipos de filtros (Acil et al., 2025; Ouyang et al., 2022; Yao et al., 2022). En los bosques tropicales y subtropicales de montaña, la dinámica de claros, las condiciones microambientales y la disponibilidad de propágulos se han considerado como factores con influencia en la composición, diversidad y estructura de la regeneración natural (Muñiz-Castro et al., 2012; Muñoz, 2017).
Los bosques secundarios en Latinoamérica se caracterizan por una alta capacidad de recuperación estructural, que depende de la disponibilidad de semillas, la conectividad del paisaje y el historial de uso del suelo (Chazdon et al., 2016). La RN en bosques de encinos degradados está fuertemente limitada por condiciones microambientales adversas, baja disponibilidad de semillas y, en particular, por la presión de pastoreo (Martínez-Casas et al., 2025; Rivas-Rivas, 2023). Aunque se ha registrado en algunos ecosistemas, sobre todo encinares, que la RN está fuertemente influenciada por la cobertura del dosel de los árboles (Figueroa-Rangel y Olvera-Vargas, 2000; Rivas-Rivas, 2023), en los BMM esta variable parece ser de menor influencia, contrario a lo que sucede con las variables microtopográficas que generan gradientes de humedad y fertilidad en el suelo, lo que produce heterogeneidad ambiental a escala fina (Morales-Arias et al., 2018).
La RN constituye un componente central de la dinámica de los ecosistemas forestales, cuyo estudio permite comprender los mecanismos que regulan la sucesión ecológica, la dinámica poblacional de los árboles, la estructura y composición de las comunidades vegetales y el desarrollo de los rodales forestales (Gómez-Pompa y Vázquez-Yanes, 1985; Oliver y Larson, 1996; Veblen et al., 1992; Zagt y Werger, 1998). Una investigación sobre la RN en el Parque Estatal Bosque Mesófilo del Volcán Nevado de Colima (PEBM-NC) será de relevancia para el desarrollo de estrategias de conservación, el manejo forestal y la restauración ecológica de estos ecosistemas del occidente de México (Chazdon et al., 2025; Falk et al., 2006; Sutherland et al., 2004).
Esta área protegida es importante para mantener la conectividad entre los bosques mesófilos del centro-occidente de México y otras unidades de conservación como el Parque Nacional Nevado de Colima y la Reserva de la Biosfera Sierra de Manantlán (Jardel-Peláez et al., 2017). Por lo anterior, se planteó la presente investigación con el objetivo de evaluar la composición florística, estructura y diversidad de la RN en el BMM, buscando dar respuesta a las siguientes preguntas: i) ¿cuál es y cómo varía la composición, la diversidad y la estructura de la RN de las especies leñosas en el BMM del PEBM-NC? ii) ¿cómo influyen las variables ambientales en la RN?
Investigaciones previas han encontrado que, a escala fina, son principalmente los filtros abióticos los que influyen en la germinación y el establecimiento de las especies y, por consiguiente, en la composición, diversidad y estructura de la RN. El microrrelieve genera heterogeneidad ambiental, lo que favorece micrositios más propicios para la regeneración (Chesson, 2000; Harper, 1977; Keddy, 1992; Morales-Arias et al., 2018). La cobertura de hojarasca actúa como un filtro físico y biogeoquímico (Facelli y Pickett, 1991; Xiong y Nilsson, 1999). Con la profundidad del horizonte superficial del suelo, se incrementan la materia orgánica, la disponibilidad de nutrientes y la humedad del suelo (Brady y Weil, 2016; Williams-Linera et al., 2015). La cobertura del dosel regula el ambiente lumínico y microclimático del sotobosque, que condiciona tanto el establecimiento como la supervivencia y el crecimiento de la RN (Holl et al., 2000; Quevedo-Rojas et al., 2016; Trujillo-Miranda et al., 2018). La elevación genera gradientes ambientales que afectan la fisiología de las especies, lo cual determina su distribución e influye en la diversidad y la trayectoria sucesional de los ecosistemas (Barry, 2008; Chown y Gaston, 2000; Gentry, 1988; Körner, 2007). En la presente investigación, las 5 variables mencionadas previamente estuvieron entre las registradas en los sitios de estudio y se espera que resulten relevantes para explicar la composición, la diversidad y la estructura de la RN del BMM del PEBM-NC.
Materiales y métodos
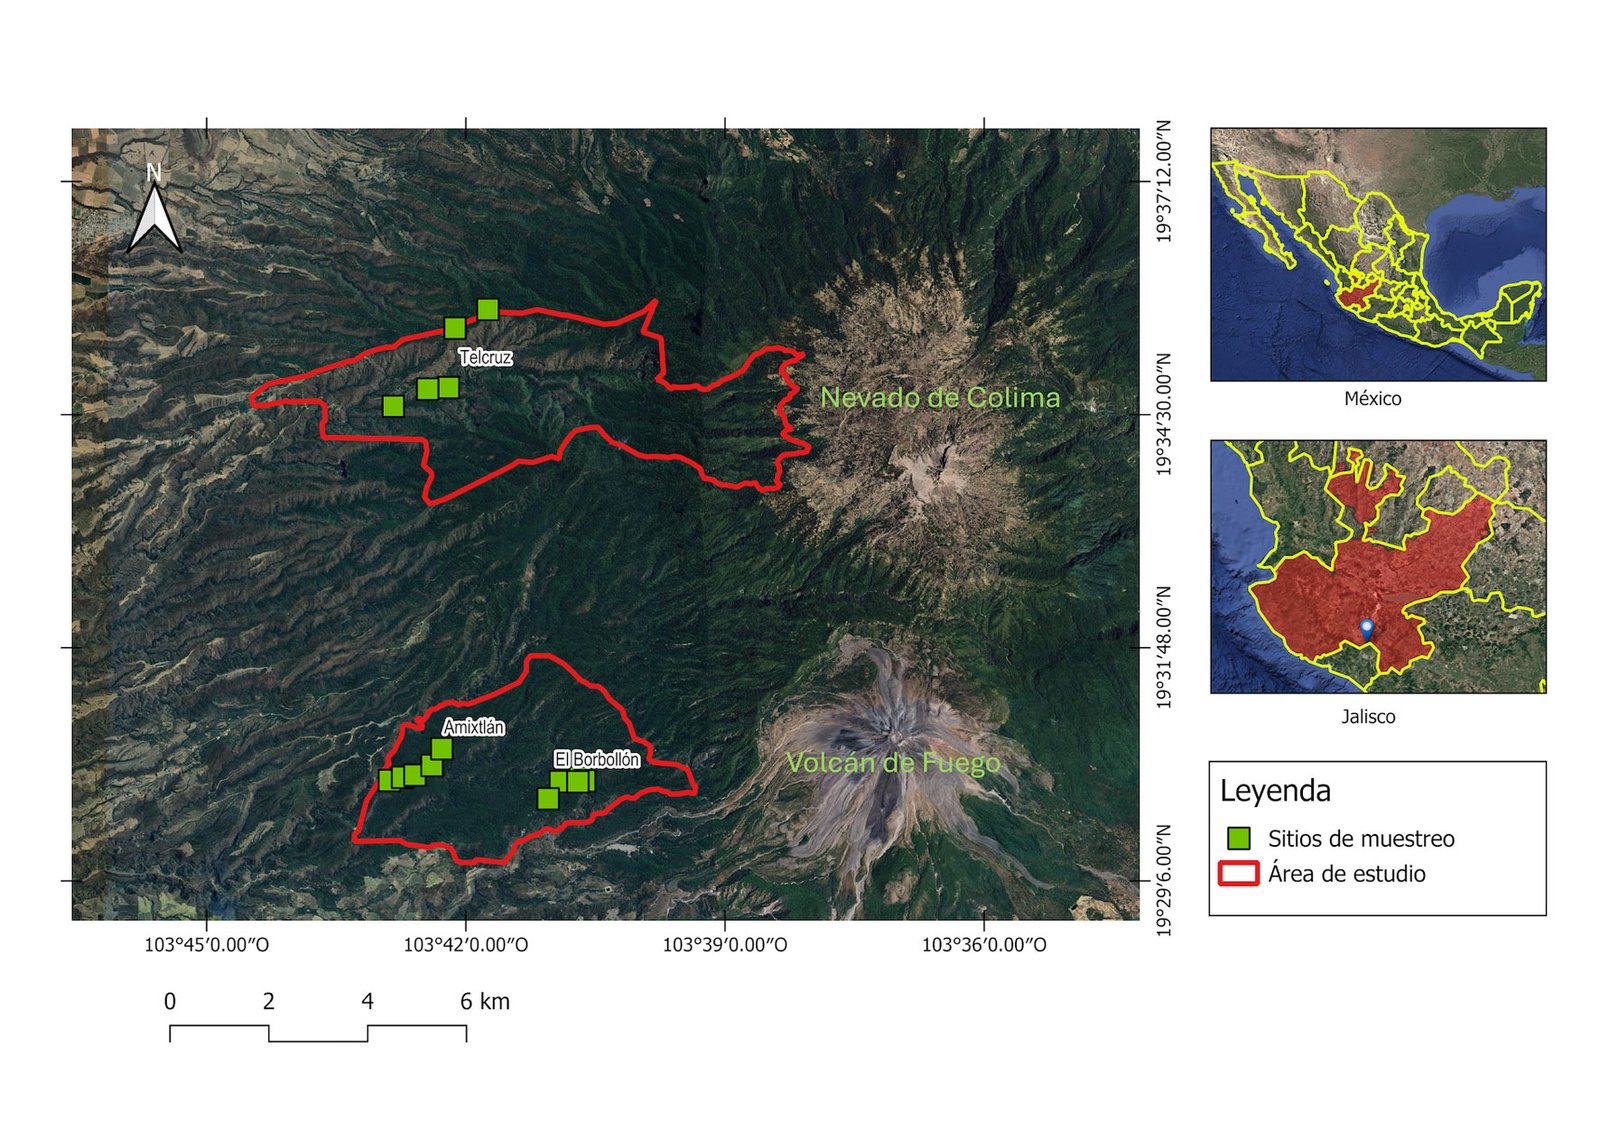
El área de estudio se localiza en la ladera oeste del complejo volcánico Nevado de Colima (CVNC; Luhr y Carmichael, 1980) en el centro-occidente de México, entre 19°29′ y 19°36′ N, 103°36′ y 103°45′ O (fig. 1). El CVNC está formado por el Nevado de Colima, un volcán inactivo que es la montaña más alta (4,260 m snm) del extremo oeste de la Faja Volcánica Transmexicana (Ferrari, 2000) y por el Volcán de Fuego (elevación ~ 3,860 m), que se encuentra activo (Capra et al., 2015). La ladera occidental de estas montañas presenta un gradiente de elevación de 3,400 m en promedio, en el que se encuentran desde bosque tropical caducifolio en las partes bajas (600-700 m) hasta bosques de pino-latifoliadas, bosque de oyamel (Abies), bosque de Pinus hartwegii y zacatonal subalpino en elevaciones entre 2,200 m y la cima del Nevado de Colima. El BMM se encuentra a elevaciones intermedias (1,400-2,200 m), formando una faja en un área donde las neblinas frecuentes aportan humedad. El clima es templado-cálido (temperatura media anual de 12-18 °C) y húmedo (precipitación anual de 800-1,200 mm, con un cociente evapotranspiración potencial/precipitación anual de 0.6-0.9). Estas condiciones son relativamente más secas que las de otros BMM de la región (Jardel-Peláez et al., 2017).
El sustrato geológico corresponde a rocas ígneas extrusivas del Pleistoceno, con aportes recientes de cenizas volcánicas (tefra) y de piroclastos de mayor tamaño, generados por las erupciones del Volcán de Fuego (Capra et al., 2015). Los suelos son someros y corresponden a Andosoles, Leptosoles y Regosoles (Jardel-Peláez et al., 2017). El depósito de cenizas de eventos eruptivos del Volcán de Fuego es un factor cuya influencia en los hábitats forestales y los suelos aún no ha sido suficientemente estudiado (Sánchez-Ramos et al., 2022).
A través de la revisión de mapas, recorridos de campo e información de pobladores del área de estudio, se seleccionaron las localidades de El Borbollón (Bo), Amixtlán (Am) y Telcruz (Te), localizadas entre los 19°22’30” – 19°36’30” N, 103°45′- 103°35′ O, en el municipio de Zapotitlán de Vadillo, Jalisco (fig. 1). Las 3 localidades forman parte del PEBM-NC, un área decretada como parque estatal en el 2009, en la que desde entonces no ha habido actividades de aprovechamiento forestal, apacentamiento de ganado, ni se han presentado incendios forestales. En cada una de estas localidades, dentro de áreas con BMM aparentemente bien conservadas, se establecieron 5 parcelas de 20 × 50 m cada una (1,000 m2), separadas entre sí por una distancia horizontal mínima de 300 m. Las parcelas fueron agrupadas en localidades en función de su cercanía geográfica; aquellas dentro de una misma localidad no distaron más de 1 km en línea recta entre ellas, mientras que las más cercanas entre localidades estuvieron entre 3-6 km de distancia (fig. 1). La parcela establecida a menor elevación fue a 1,505 m y la de mayor a 2,096 m, las 15 distribuidas en un gradiente elevacional de 591 m. Cada parcela se dividió en 10 subunidades de 10 × 10 m (100 m2). Dentro de cada subunidad y partiendo de su centro, se estableció un círculo de 1.27 m de radio (5 m2), para un área de 50 m2 por parcela y 250 m2 por localidad. Las parcelas se establecieron a favor de la pendiente, fueron georreferenciadas con un dispositivo del Sistema de Geoposicionamiento Global (GPS Garmin, modelo GPSMAP 78s) y datum WGS 84; el azimut se obtuvo con una brújula Suunto (modelo KB-14/360R G). En cada subparcela se registró la pendiente (%) con un clinómetro Suunto (modelo PM-5/360PC); la compactación del suelo con un penetrómetro (SOILTEST INC, modelo CL-700); la cobertura del dosel con un densitómetro esférico convexo (Marca Forestry Suppliers y modelo A), realizando 4 registros en cada subparcela hacia cada uno de los puntos cardinales. El microrrelieve del terreno dentro de cada subparcela (plano, convexo, cóncavo o inclinado) y la cobertura de hojarasca se estimaron visualmente, siempre por el segundo autor de esta investigación. La cobertura de hojarasca fue la proporción de superficie cubierta de hojarasca en cada subparcela de 5 m2 y expresada en porcentaje. Se registraron también, por parcela, variables indicadoras de perturbación, como el número de árboles caídos, tocones, indicios de incendios y apacentamiento de ganado, siguiendo los criterios establecidos por Olvera-Vargas y Figueroa-Rangel (2023). Los muestreos se realizaron de octubre de 2021 a mayo de 2022.
Dentro de cada subparcela de 5 m2, se registraron todos los individuos de plantas leñosas ≥ 10 cm de altura y ≤ 2.5 cm de DN (diámetro normal medido a 1.3 m del nivel del suelo), incluyendo individuos de especies arbóreas y lianas. Es común que las lianas no se incluyan en los estudios de RN, pero se decidió incluirlas porque estas especies llegan a formar parte del dosel del bosque y compiten por la luz y otros recursos del ambiente con las especies arbóreas (Ibarra-Manríquez et al., 2015). Se midieron las alturas de los individuos y su cobertura de copa (largo × ancho); para esta última, la superficie de proyección se estimó con la forma de la elipse (Prieto et al., 1995). Para corroborar las identificaciones taxonómicas de las especies, se recolectaron ejemplares, se rotularon con el número de parcela y submuestra y se llevaron al Herbario ZEA del Centro Universitario de la Costa Sur, donde fueron procesados e incorporados a la colección como referencia de la investigación.
Para los análisis, las parcelas, en función de su cercanía geográfica, fueron agrupadas por localidades y estas últimas se consideraron como tratamientos. Para comparar la diversidad de especies y determinar la completitud del muestreo y la cobertura de las muestras, se utilizaron las abundancias de especies por localidad mediante métodos de rarefacción y extrapolación, los cuales comparan la misma cobertura de muestra, más que por su tamaño (Chao y Jost, 2012). Para realizar los cálculos se utilizó el software iNEXT y las decisiones para considerar o no diferencias entre las diversidades fue el traslape o no de los intervalos de confianza a 95% (Chao y Hsieh, 2016).
Se utilizaron los valores de importancia (VI) de las especies, por parcela y por localidad, y, en función de ello, se analizó y comparó la composición florística entre parcelas y localidades. La matriz se integró con las especies presentes en al menos 3 parcelas. Los VI de cada especie fueron estandarizados, dividiendo el VI de la especie en cada parcela entre la sumatoria de los VI en todas las parcelas en las que se encontró, resultados que fueron transformados con raíz cuadrada (Clarke et al., 2014). Esta transformación reduce la influencia de especies dominantes y de los ceros y contribuye a mejorar la linealidad en la respuesta de las especies a gradientes ambientales (Legendre y Gallagher, 2001). Se realizó un análisis de agrupamiento con la distancia de Bray-Curtis y el método de unión de grupos promedio (Clarke et al., 2013). La semejanza estadística entre los grupos se determinó mediante una prueba de perfiles de semejanza (SIMPROF), un procedimiento no paramétrico que se basa en permutaciones para detectar grupos estadísticamente diferentes, sin definición previa, a través de un estadístico de prueba (π) (Clarke et al., 2013). Para determinar las especies con mayor contribución a la formación y la separación de los grupos, se utilizó una prueba de semejanza (SIMPER) con la matriz de especies empleada para la comparación florística. Los análisis se realizaron con el programa PRIMER 7 (Clarke y Gorley, 2015).
La riqueza de familias, géneros y especies por parcela y localidad fue registrada. La diversidad se estimó como el número efectivo de especies por parcela y localidad en función de los números de Hill de orden q = 0 (0D), q = 1 (1D) y q = 2 (2D) (Jost, 2007, 2019). Los datos de la riqueza y abundancia de las especies se analizaron con el software PRIMER 7 (Clarke y Gorley, 2015). La 0D es la riqueza de especies, al ser insensible a la abundancia de las especies; la 1D (índice exponencial de Shannon) pondera las especies en función de su proporción de abundancias en la comunidad respecto al exponente q y asigna más peso a las especies comunes con abundancias similares (Jost, 2006); y el 2D (índice inverso de Simpson) da mayor peso a las especies más abundantes o dominantes (Chao y Ricotta, 2019).
El análisis de la estructura de la regeneración natural se realizó por especie, parcela y localidad, por abundancias, frecuencias y coberturas. Se determinó el VI de las especies leñosas como el promedio de la suma de los valores relativos de abundancia, frecuencia y cobertura (Whittaker, 1967). La densidad y la cobertura de la RN entre localidades se compararon mediante una prueba de Kruskal-Wallis, considerando las localidades como tratamientos y las parcelas como unidades de análisis (Di Rienzo et al., 2019).
Se integró una matriz con los VI de las especies por parcela y otra con las variables ambientales. La matriz de las especies incluyó aquellas que se registraron en 3 o más parcelas, es decir, con una frecuencia ≥ 20%. La exclusión de las especies raras es un procedimiento recomendado para datos ecológicos, cuando se buscan los patrones dominantes, además de reducir la dimensionalidad, lo que ayuda a un mejor entendimiento de la estructura del ensamblaje (McCune y Mefford, 2016; Sgarbi et al., 2020), sin dejar de lado que la eliminación de las especies raras podría conducir a la simplificación del sistema con la pérdida de especies indicadoras de condiciones específicas (Poos y Jackson, 2012). Los VI de las 29 especies incluidas fueron estandarizados, dividiendo su VI en cada parcela entre la sumatoria de los VI en todas las parcelas en las que se encontraron, datos que fueron transformados con raíz cuadrada (Clarke et al., 2014). La matriz ambiental incluyó por parcela las siguientes variables: pendiente (Pen), compactación (Comp), árboles caídos (Acai), profundidad del horizonte superficial (PHS), Azimut (Az), Microrelieve (Mi), porcentaje de hojarasca (Hoj), cobertura (Cob) y elevación (Elev). Aunque se tenía considerado incluir tocones, incidencia de ganado y de fuego, no se encontró evidencia de ellos para los últimos 15 años. Las 4 categorías del microrrelieve se transformaron en variables Dummy y se trataron como cuantitativas. El azimut fue transformado a una escala de 0 a 2, de acuerdo con lo recomendado por Beers et al. (1966). Las variables ambientales, con excepción de las de tipo Dummy, fueron estandarizadas por puntuación z (McCune y Mefford, 2016) y la colinealidad entre las variables se determinó obteniendo el factor de inflación de la varianza (Montgomery et al., 2021), el cual en todos los casos fue menor a 1.5, lo que indica una baja colinealidad; por lo tanto, todas las variables fueron incluidas en el análisis. Para determinar la aplicación de una ordenación directa lineal o unimodal, se realizó un análisis de correspondencia desprovisto de tendencia (DCA por sus siglas en inglés), para determinar la longitud del gradiente del primer eje, un valor menor a 2.5 desviaciones estándar justifica la aplicación de un modelo lineal y uno mayor a 3, uno unimodal (Legendre y Birks, 2012). Como la longitud del gradiente obtenido fue de 2.4 desviaciones estándar, se utilizó para la ordenación directa el RDA y la relación entre las matrices se determinó mediante una prueba de permutación con 999 iteraciones. Los análisis se realizaron con el software PC-ORD V7 (McCune y Mefford, 2016).
Resultados
La localización e información ambiental registrada para cada parcela se presentan en la tabla 1. La completitud del muestreo por localidad fue 86% para Te, 91% en Bo y 92% en Am. La cobertura de la muestra fue mayor a 99% para las 3 localidades. Se registraron 55 especies de 46 géneros y 34 familias; 44 de ellas fueron árboles y 11 lianas (tabla MS). Las familias con mayor riqueza de géneros y especies fueron Solanaceae (2 y 6, respectivamente), Fabaceae (2, 4), Asteraceae, Lauraceae y Primulaceae (3, 3) y Fagaceae (1, 3). Los géneros con más especies fueron Solanum (4), Quercus (3), Inga (3), Cestrum (2) y Smilax (2).
| Localidad | Lon | Lat | Ele | Pen | Az | Com | Ac | Mi | CHoj | PHS | CDos |
|---|---|---|---|---|---|---|---|---|---|---|---|
| Amixtlán | |||||||||||
| Am1 | -103.715 | 19.504 | 1,641 | 8.3±4.3 | 205 | 0.46±0.15 | 1 | 1 | 95±12.7 | 21.3±8.7 | 92.7±3.6 |
| Am2 | -103.712 | 19.505 | 1,637 | 50±15.3 | 104 | 0.73±0.32 | 1 | 4 | 87.5±6.8 | 24.4±107 | 94.3±2.15 |
| Am3 | -103.710 | 19.505 | 1,636 | 15.2±7.2 | 233 | 0.73±0.32 | 2 | 1 | 89.5±10.7 | 24.9±8.0 | 92.2±3.7 |
| Am4 | -103.707 | 19.507 | 1,699 | 8.8±4.3 | 200 | 0.93±0.17 | 8 | 4 | 69±15 | 17.6±3.1 | 84.1±8.2 |
| Am5 | -103.705 | 19.511 | 1,693 | 14.2±9.4 | 31 | 0.73±0.32 | 0 | 4 | 83.5±5.8 | 20.4±2.0 | 91.5±2.0 |
| Borbollón | |||||||||||
| Bo1 | -103.682 | 19.504 | 1,796 | 19±2.4 | 121 | 0.56±0.29 | 1 | 1 | 94.5±8.3 | 26.1±7.2 | 91.9±6.2 |
| Bo2 | -103.678 | 19.505 | 1,797 | 10±1.7 | 93 | 0.78±0.77 | 0 | 2 | 98.5±3.4 | 29.3±107 | 82.7±116 |
| Bo3 | -103.677 | 19.504 | 1,767 | 42±12.7 | 247 | 0.79±0.50 | 0 | 4 | 91.5±6.3 | 31.2±9.7 | 89.0±9.9 |
| Bo4 | -103.678 | 19.504 | 1,768 | 14.5±1.6 | 242 | 0.63±0.63 | 1 | 2 | 98±4.8 | 35.5±1.6 | 90.9±4.4 |
| Bo5 | -103.684 | 19.501 | 1,758 | 16±2.2 | 354 | 0.56±0.51 | 0 | 2 | 100±0.0 | 29.1±11.5 | 96.3±3.3 |
| Telcruz | |||||||||||
| Te1 | -103.702 | 19.592 | 2,001 | 62.8±11.1 | 213 | 0.20±0.19 | 1 | 4 | 91.5±12.9 | 28.3±12.2 | 75.2±6.5 |
| Te2 | -103.696 | 19.595 | 2,096 | 50.1±7.7 | 347 | 1.04±0.30 | 3 | 4 | 94.6±2.8 | 14.11±2.7 | 94.7±2.9 |
| Te3 | -103.703 | 19.580 | 1,562 | 48±7.5 | 322 | 0.48±0.36 | 5 | 4 | 88±4.8 | 11.6±3.7 | 95.1±3.4 |
| Te4 | -103.707 | 19.580 | 1,580 | 58.6±8.5 | 337 | 0.48±0.09 | 4 | 4 | 95±2.4 | 8.1±2.2 | 97.2±1.6 |
| Te5 | -103.714 | 19.577 | 1,505 | 19±9.1 | 305 | 1.22±1.42 | 3 | 3 | 77±16.2 | 8.1±4.2 | 92.8±5.3 |
Material suplementario
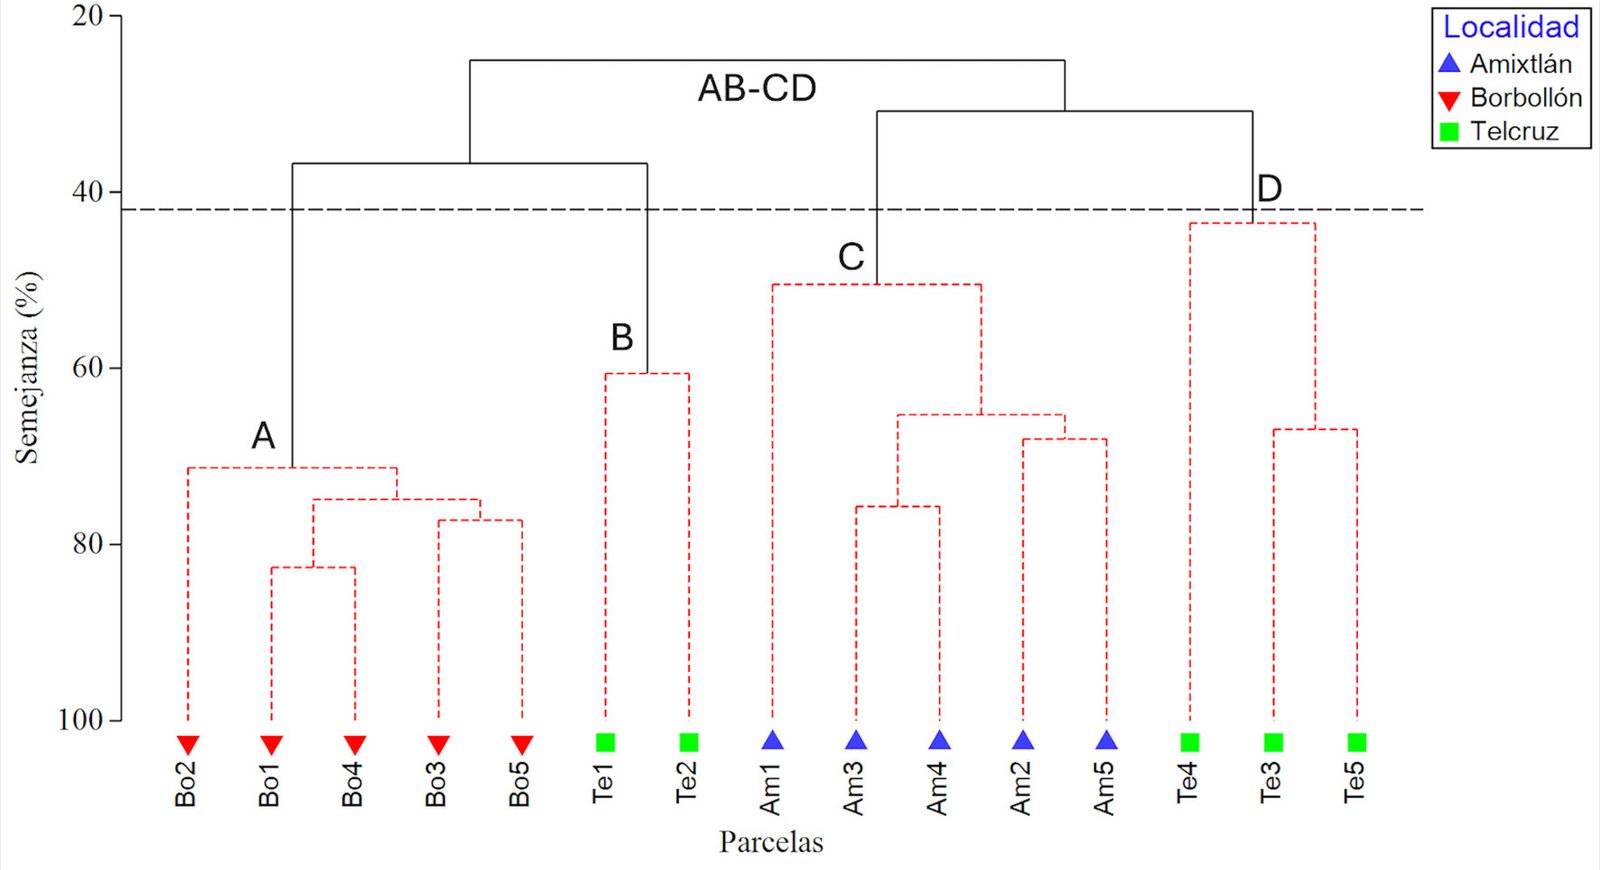
El análisis de agrupamiento mostró 4 grupos estadísticamente diferentes a una semejanza de 42% (fig. 2). Las parcelas de las localidades de Am y Bo formaron cada una un grupo (C y A), mientras que Te se separó en 2, uno de ellos con mayor semejanza con Bo (B) y el otro (D) con Am (fig. 2). La mayor semejanza promedio se presentó entre las parcelas del Bo (70.59%) y la menor para Te3-Te5, grupo D (fig. 2).
La disimilitud entre Am (C) y Bo (A) fue 72.72% y las especies que más contribuyeron a su diferenciación fueron Damburneya salicifolia (5.68%), Roldana angulifolia (5.32), Celastrus pringlei (5.24), Fraxinus uhdei (4.66) e Inga flexuosa (4.99), las 4 primeras fueron registradas en Bo y ausentes en Am. La disimilitud entre Bo (A) y Te1-Te2 (B) fue 66.66% y las especies que más contribuyeron para ello fueron D. salicifolia (6.52%), R. angulifolia (6.10), C. pringlei (6.02), Malvaviscus arboreus (5.52) y C. caroliniana (5.45). La disimilitud entre C y D fue 71.56% y las especies que más contribuyeron para ello fueron I. flexuosa (9.10%), C. caroliniana (8.56), Thenardia floribunda (7.45), Trophis mexicana (7.27) y Myriocarpa longipes (6.77). El porcentaje de diferenciación entre Te1-Te2 (B) y Te3-Te5 (D) fue 75.03% y la generaron S. ramirezii (12.04%), Vitis blancoi (11.93), Smilax moranensis (7.47), Dendropanax arboreus (7.36) y Psychotria grandis (9.80), de las cuales, las 4 primeras estuvieron presentes en B y ausentes en D de la misma localidad. Amixtlán y B fueron distintas 84.38% y las especies con mayor influencia fueron S. ramirezii (8.44%), V. blancoi (7.63), C. caroliniana (6.87), I. flexuosa (6.87), I. eriocarpa (6.13), las 2 últimas solo presentes en Am y ausentes B, mientras que las 3 primeras estuvieron escasamente representadas en B.
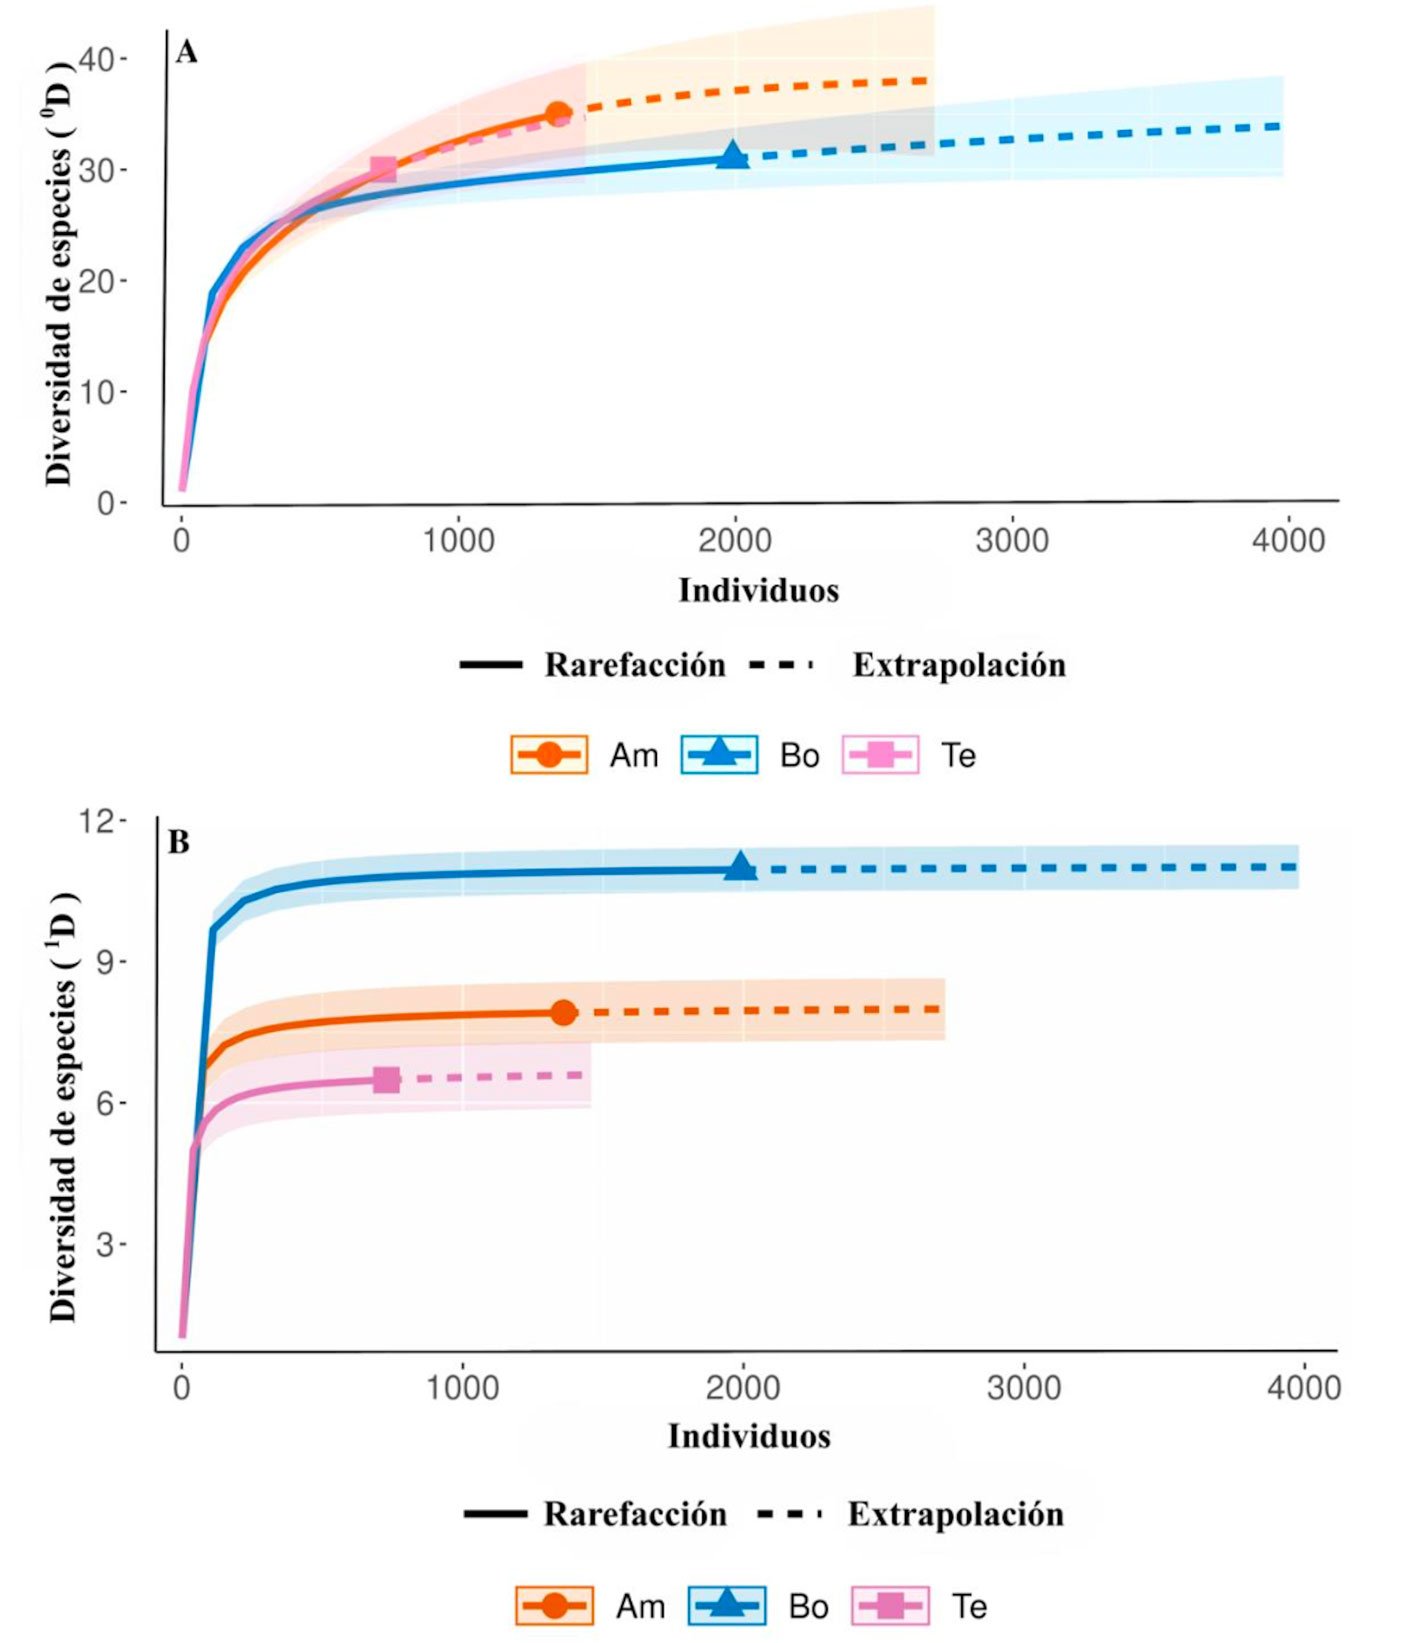
Los traslapes de los intervalos de confianza no mostraron diferencias significativas entre las localidades para la diversidad de especies de 0D (fig. 3A), pero sí en el caso de 1D, cuyos intervalos de confianza no se traslaparon y las curvas mostraron mayor diversidad en Bo y menor en Te (fig. 3B). La localidad Bo tuvo 1.69 y 1.38% más número efectivo de especies que Te y Am, mientras que Am tuvo 1.22% más que Te. La diversidad de especies con 2D registró el mismo patrón descrito para 1D.
La densidad de individuos por localidad varió de 729 a 1,990 en 250 m2 (29,160 a 79,600 por ha), con los valores menores para Te y los mayores para el Bo (tabla 2). Los valores de densidad promedio en 50 m2 fueron de 145.80 ± 134.53 para Te, 271.80 ± 149.66 para Am y 398.00 ± 106.33 para el Bo (tabla 2). Esta variable mostró diferencias estadísticas significativas entre las localidades (H = 6.14 p = 0.046), siendo Te diferente de Bo y Am sin diferencias con ambas localidades. Las 6 especies con mayor densidad, incluyendo las 3 localidades (750 m2), fueron S. ramirezii (534 individuos), I. eriocarpa (528), D. salicifolia (455), Toxicodendron radicans (449), Persea hintonii (382) e I. flexuosa (324) (tabla MS). Las especies con mayor densidad varió entre localidades. En Am las 3 especies con más individuos en 250 m2 fueron I. eriocarpa (506), I. flexuosa (308) y T. floribunda (180); en Bo D. salicifolia (455), T. radicans (399), P. hintonii (358) y S. ramirezii (205); en Te S. ramirezii (328), C. caroliniana (195) y T. radicans (43) (tabla MS).
| Localidad | Familias | Géneros | Especies | 1D | 2D | Densidad | Cobertura |
|---|---|---|---|---|---|---|---|
| Amixtlán | |||||||
| Am1 | 14 | 15 | 17 | 4.70 | 3.29 | 141 | 18.5 |
| Am2 | 11 | 15 | 16 | 5.95 | 4.37 | 173 | 24.2 |
| Am3 | 9 | 10 | 12 | 4.44 | 3.26 | 178 | 19.8 |
| Am4 | 8 | 11 | 14 | 3.62 | 2.29 | 405 | 20.6 |
| Am5 | 12 | 16 | 18 | 6.77 | 4.64 | 462 | 25.6 |
| Media | 10.8 | 13.4 | 15.4 | 5.10 | 3.57 | 271.8 | 21.8 |
| Borbollón | |||||||
| Bo1 | 17 | 22 | 22 | 7.07 | 5.08 | 568 | 87.8 |
| Bo2 | 13 | 17 | 17 | 6.63 | 5.28 | 381 | 51.8 |
| Bo3 | 16 | 20 | 23 | 8.79 | 5.58 | 333 | 54.9 |
| Bo4 | 15 | 19 | 20 | 4.79 | 3.50 | 417 | 34.7 |
| Bo5 | 19 | 21 | 22 | 8.19 | 6.47 | 291 | 64.8 |
| Media | 16 | 19.8 | 20.8 | 7.09 | 5.18 | 398 | 58.8 |
| Telcruz | |||||||
| Te1 | 10 | 14 | 14 | 3.35 | 2.83 | 330 | 12.9 |
| Te2 | 8 | 10 | 10 | 1.60 | 1.24 | 246 | 23.9 |
| Te3 | 8 | 10 | 10 | 6.85 | 5.68 | 53 | 13.2 |
| Te4 | 6 | 8 | 8 | 4.97 | 3.72 | 23 | 29.5 |
| Te5 | 6 | 9 | 9 | 4.17 | 3.05 | 77 | 14.2 |
| Media | 7.6 | 10.2 | 10.2 | 4.19 | 3.30 | 145.8 | 18.7 |
Los valores de cobertura de las especies en la RN por localidad (en 250 m2) fueron de 93.92 m2 en Te, 108.83 en Am y 297.66 en Bo. Los valores promedio por parcela (en 50 m2 de superficie) fueron de 18.78 ± 7.51 m2 en Te, 21.77 ± 3.03 en Am y 59.53 ± 19.85 en Bo (tabla 2). Esta variable mostró diferencias significativas entre las localidades (H = 13.77 p = 0.001), siendo Te diferente de Bo y Am sin diferencias significativas con esta pareja de localidades. Las especies con mayor cobertura en las 3 localidades (750 m2) fueron D. salicifolia (64.68 m2), S. ramirezii (60.26), I. eriocarpa (39.25), Frangula capreifolia (38.76), Z. concinna (33.80) y T. floribunda (33.08). Las especies con más cobertura variaron entre localidades, en Am las mayores fueron para I. eriocarpa (20.73), T. floribunda (19.20), Z. concinna (16.56) e I. flexuosa (11.51); en el Bo para D. salicifolia (64.68), S. ramirezii (45.20), F. capreifolia (30.64) y Prunus tetradenia (23.97); en Te para C. caroliniana (18.25), I. eriocarpa (16.83), S. ramirezii (15.01) y Z. concinna (14.12) (tabla MS).
Ninguna especie presentó una frecuencia de 100% y solo 11 tuvieron valores entre 53 y 80%. Las especies con mayor frecuencia fueron F. capreifolia (12 parcelas), Quercus uxoris y T. floribunda (11), P. tetradenia y Z. concinna (10), Serjania flaviflora y T. radicans (9) (tabla MS). Aunque ninguna especie se registró para los 150 círculos de 5 m2, varias de ellas se encontraron en las 3 localidades. Las 7 que registraron los mayores valores de importancia en la comunidad de BMM en el PEBM-NC fueron: I. eriocarpa (22.52%), S. ramirezii (19.22), C. caroliniana (8.21), Z. concinna (7.78), P. hintonii (5.18), P. tetradenia (5.1) y F. capreifolia (4.45). Los valores de importancia de estas especies variaron entre localidades, mientras unas estuvieron bien representadas en una localidad fueron escasas en las otras (tabla MS; fig. 4).
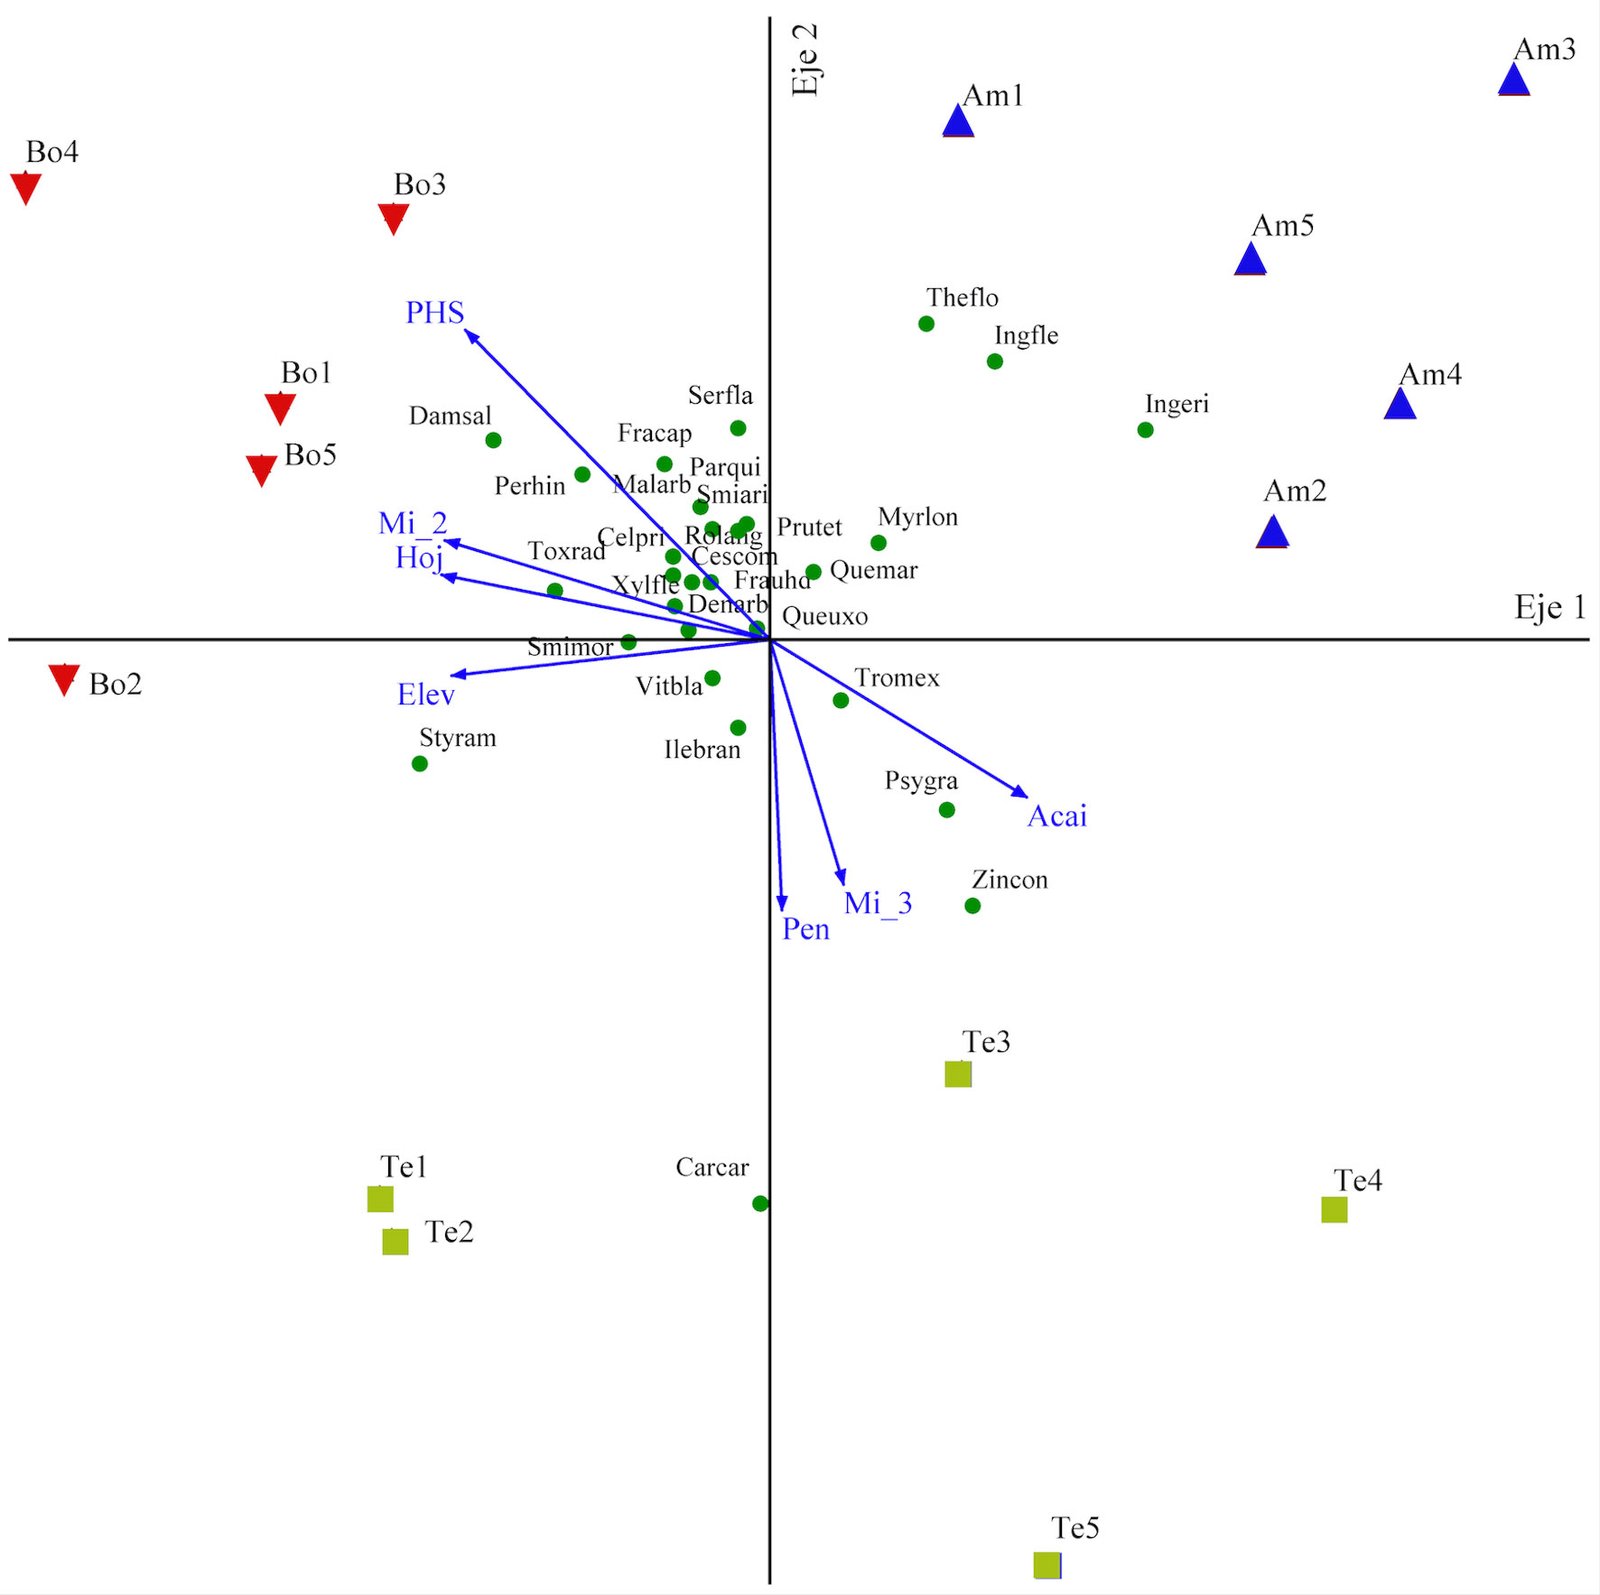
Los 3 primeros ejes canónicos del RDA presentaron autovalores de 22.06, 14.18 y 5.28, explicando, respectivamente, 37.7, 24.3 y 9.0% de la varianza total de la matriz. En conjunto, estos 3 ejes explicaron 71.0% de la variación observada en la composición de las especies. Los 3 primeros ejes canónicos mostraron correlaciones de Pearson elevadas entre las puntuaciones de respuesta y las puntuaciones predichas por las variables explicativas (r = 0.990, 0.973 y 0.954), lo que evidencia un fuerte ajuste de los ejes a las variables ambientales. Las mayores correlaciones con el eje 1 fueron para cobertura de hojarasca (r = – 0.648), Mi_2 (r = – 0.640) y la elevación (r = – 0.628), mientras que para el eje 2 fue la profundidad del horizonte superficial (r = – 0.661), la pendiente (r = 0.580) y Mi_3 (r = 526) (fig. 4). La prueba de permutación mostró una correlación significativa entre las matrices de especies y ambiental (p < 0.05), por lo que se deduce que la relación entre ambas no se debe al azar.
La ordenación (fig. 4) fue consistente con el análisis de agrupamiento (fig. 2) y claramente se separan en el espacio las 3 localidades, a la derecha Am, a la izquierda el Bo y en la parte inferior Te, esta última con mayor variación y separación entre sus parcelas. En el primer eje las variables que separaron al Bo de Am fueron un mayor porcentaje de hojarasca, microrrelieve cóncavo, mayor elevación y menos árboles caídos, mientras que en el eje 2 lo que separó a Te de las otras 2 localidades fueron una menor PHS, mayores pendientes y microrrelieve convexo. En cada localidad hubo grupos de especies que presentaron sus mayores VI, las cuales también estuvieron influenciados por las variables ambientales. En Am, I. flexuosa, I. eriocarpa y T. floribunda parecen encontrarse en lugares con microrrelieve plano, con menos cobertura de hojarasca a menor elevación y con más árboles caídos. Styrax ramirezii, D. salicifolia, P. hintonii tuvieron sus mejores expresiones en las parcelas del Bo, con mayor PHS, microrrelieve cóncavo, mayor elevación y más hojarasca. Por su parte, C. caroliniana y Z. concinna presentaron sus mayores VI en las parcelas de Te, donde se registraron las pendientes más fuertes, menor PHS y microrrelieve convexo (fig. 4).
Discusión
La investigación tuvo como objetivo evaluar la composición, diversidad y estructura de la RN de plantas leñosas y los factores ambientales que influyen en su distribución y abundancia, en el contexto de un área protegida, el PEBM-NC. La completitud del muestreo (> 85%) y la cobertura de muestra (> 99%) indican un muestreo representativo (Chao y Jost, 2012), lo que sugiere, de acuerdo con la cobertura de muestra, que con nuevos muestreos de individuos menos de 1% pertenecerá a especies aún no registradas en la comunidad.
Las 55 especies, 46 géneros y 34 familias representan 79, 74 y 92% de las registradas en las mismas localidades para el estrato superior de especies de plantas con DN ≥ 2.5 cm (Yáñez-Ayala, 2024). Este patrón de menor riqueza de especies en la regeneración que en el dosel ha sido registrado recientemente (Manrique-Ascencio et al., 2022; Quevedo-Rojas et al., 2024). De las especies registradas en el estudio, 45% coincide con las consignadas por Cruz-Peña (2017) para el área de estudio y se comparten 8 especies con la Estación Científica Las Joyas (ECLJ), localizada en la parte central de la sierra de Manantlán, Jalisco (Saldaña-Acosta y Jardel-Peláez, 1991). Algunas de las familias y géneros que presentaron más especies en el PEBM-NC coinciden con las consignadas por Ramírez-Marcial et al. (2001). Sin embargo, Rubiaceae tuvo más especies en el sur de México, pero estuvo escasamente representada en PEBM-NC y géneros como Clethra y Oreopanax estuvieron ausentes. Investigaciones sobre la regeneración de BMM en otras regiones del occidente de México, como la sierra de Manantlán, también han registrado entre las familias con más especies a Fabaceae, Lauraceae y Primulaceae, aunque de los 4 géneros con más especies, solo se comparte a Quercus. Myrtaceae, Piperaceae, Rubiaceae y Urticaceae, consignadas entre las que tienen más especies en el suroeste de la sierra de Manantlán (Zarate-Cuevas, 2023), están ausentes o pobremente representadas en el PEBM-NC, lo que probablemente se debe a que este último es un bosque relativamente más seco. Se comparte 25% de las especies arbóreas de la RN registradas en la sierra de Cacoma, Jalisco y Fabaceae y Fagaceae entre las que tienen más especies; la baja semejanza entre el BMM de la sierra de Cacoma y el PEBM-NC se relaciona, probablemente, con que el primero es más húmedo y más cálido que el segundo (Morales-Arias et al., 2018).
La separación de 4 grupos florísticos estadísticamente diferentes ratifica la observación de que el BMM tiene un alto recambio de especies entre localidades, que se expresa en baja semejanza florística, aún en distancias relativamente cortas, como fue el caso de la localidad de Te (figs. 2, 4). Este patrón ya ha sido documentado y atribuido a factores ambientales como la heterogeneidad ambiental, la historia de uso del suelo y las limitaciones en los procesos de dispersión que modelan distintos ensamblajes (Chazdon, 2014; Muñiz-Castro et al., 2012; Rzedowski, 1978).
La riqueza de especies arbóreas encontrada en la RN del PEBM-NC fue el doble de la registrada en la parte central de la sierra de Manantlán (Saldaña-Acosta y Jardel-Peláez, 1991), pero similar a lo consignado al respecto en el suroeste de esta reserva (Zarate-Cuevas, 2023) y en la sierra de Cacoma (Morales-Arias et al., 2018). En esta última región se registraron 44 especies en la regeneración de especies arbóreas equivalentes a lo consignado en el PEBM-NC. Aunque la diversidad de especies de 0D no mostró diferencias entre las localidades, sí las hubo para el 1D y 2D, lo que se atribuye a que la abundancia relativa de las especies en Bo fue más homogénea, posiblemente influenciada por una mayor cobertura en el sotobosque en esta localidad (tabla 2), lo que facilitó una mayor regeneración natural, como ya se ha registrado en otras investigaciones (Tíscar-Oliver, 2015), ya que los porcentajes de cobertura del estrato arbóreo fueron similares en las 3 localidades (90-91%) y a pesar de que esta variable se ha registrado como de importancia en la RN (Holl et al., 2000; Quevedo-Rojas et al., 2016; Trujillo-Miranda et al., 2018), fue poco variable para la zona de estudio, lo que hizo que no se observara una influencia en la RN como la encontrada en otras investigaciones (tabla 1). También deben estar influyendo variables ambientales, como una mayor PHS, un microrrelieve cóncavo y un mayor porcentaje de cobertura de hojarasca (fig. 4) (Gratzer y Waagepetersen, 2018; Wang et al., 2022), que en sinergia actúan como filtros ecológicos. Lugares con mayor PHS se presentan en microrrelieves cóncavos, en los cuales hay una mayor acumulación de hojarasca y humedad, lo que en conjunto crea micrositios donde la germinación y establecimiento de plántulas se ve favorecida (Jobbágy y Jackson, 2000; Martínez-Ramos y García-Orth, 2007; Morales-Arias et al., 2018), lo que genera un incremento en la diversidad.
La densidad de individuos registrada por ha en la localidad de Te fue de 29,160 individuos, lo cual está por debajo de lo encontrado en un bosque mesófilo de Brasil (35,000), pero las 79,600 por ha en el Bo, representan el doble de lo encontrado en ese bosque (Dalla-Rosa et al., 2016), aunque los límites de tamaño registrados no fueron iguales, ya que para Brasil oscilaron entre 15 cm de altura y DN < 5 cm y en el PEBM-NC entre 10 cm de altura y DN < 2.5 cm. Las densidades de Te estuvieron ligeramente por debajo de lo encontrado en la RN en el BMM de Cuzalapa, en la sierra de Manantlán (Zarate-Cuevas, 2023), pero las del Bo las duplicaron. La densidad más baja se registró para Te, pero esta fue superior a la consignada para el BMM en Las Cañadas, Veracruz (16,800 ind ha-1 de 0.3-1.5 m de altura) (Toledo-Aceves et al., 2021) y para algunos bosques templados del noroeste de México, en el cual las densidades mayores fueron de 20,000 ind ha-1, a pesar de que el límite inferior medido fue > 5 cm de altura y el superior < 7.5 cm de DN (Martínez-Casas et al., 2025). La mayor densidad de regeneración en el Bo se atribuye a los factores ambientales ya referidos como influyentes en la diversidad de especies en PEBM-NC. Las especies que se registraron con las mayores densidades en la RN de los bosques del PEBM-NC, pocas o ninguna se comparten con otras localidades del occidente de México. Entre las de mayores densidades compartidas se registran a I. eriocarpa, D. salicifolia y S. ramirezii, para la sierra de Cacoma (Morales-Arias et al., 2018), I. eriocarpa para el suroeste de la SM (Zarate-Cuevas, 2023) y C. caroliniana, Z. concinna y P. hintonii con la ECLJ de la SM (Saldaña-Acosta y Jardel-Peláez, 1991).
Entre las especies con mayor frecuencia que se comparten con el suroeste de la sierra de Manantlán estuvieron I. eriocarpa y aquellas compartidas con mayor VI entre las 2 localidades fueron Z. concinna y P. hintonii. De hecho, una de las especies dominantes en ambas localidades correspondió al género Styrax, aunque S. ramirezii lo fue para el PEBM-NC y Styrax radians para el suroeste de la SM (Zarate-Cuevas, 2023). Frangula capreifolia, la especie con mayor frecuencia en el PEBM-NC, ya ha sido registrada como parte de la regeneración en otros BMM (Chinchilla y Goebel-Otárola, 2023; Domínguez-Vera et al., 2023; Vargas-Rueda, 2018). La alta frecuencia de Q. uxoris se atribuye a que es una de las especies con mayor área basal en el dosel (Yañez-Ayala, 2024), por lo que es posible que su dominancia repercuta en una alta proporción de diásporas en la comunidad, lo que incrementaría su probabilidad de dispersión y establecimiento en la RN (Clark et al., 1999; Nathan y Muller-Landau, 2000). Por su parte, T. floribunda podría deber su alta frecuencia al tipo de diáspora, que le permite una dispersión de larga distancia (Howe y Smallwood, 1982; Martínez-Orea et al., 2009; Van der Pijl, 1972).
Las especies con mayor VI, I. eriocarpa, S. ramirezii, C. caroliniana, Z. concinna y P. hintonii presentan frutos carnosos o secos con o sobre estructuras aladas (Cuevas-Guzmán et al., 2021), lo que genera síndromes de dispersión por aves o viento. Inga eriocarpa es endémica de México y se encuentra distribuida en bosques del occidente de México (Mendoza-Tafolla, 2016). Posee la capacidad de adaptación a condiciones fisiográficas limitantes y a ambientes perturbados, con alto potencial reproductivo, características que podrían favorecer su establecimiento en el área. Además, ha sido registrada como una de las especies dominantes del estrato arbóreo inferior del BMM en el occidente de México (Guerrero-Hernández et al., 2014; Mendoza-Tafolla, 2016). Styrax ramirezii, podría deber sus altos VI en la RN a los atributos que ya se han registrado para S. radians en la SM, un síndrome de dispersión zoocoro, preferencia por hábitats con cierto grado de perturbación, así como su alta capacidad de reproducción y de germinación (Sánchez-Rodríguez et al., 2018; Zarate-Cuevas, 2023). Carpinus caroliniana se ha registrado con capacidad para regenerar bajo diferentes condiciones de luminosidad y humedad, aunque con preferencia por lugares con algún grado de perturbación, por lo que se registra en mayor abundancia en sitios con sucesión temprana (Cuevas-Guzmán et al., 2021; Metzger, 1990). Por su parte, los VI altos de Z. concinna se atribuyen a sus mecanismos de dispersión por viento, lo que hace que sea una de las primeras colonizadoras en espacios abiertos o en las zonas de transición entre BMM y otros tipos de vegetación (Santiago-Pérez et al., 2009).
El análisis de agrupamiento y la ordenación separaron a las 3 localidades como diferentes, sobresaliendo Te, con mayor variación al separarse en 2 grupos, Te1-Te2 a mayor elevación y Te3-Te5 establecidas a la más baja elevación de las 15 parcelas. Las variables más importantes para separar las localidades, fueron también aquellas con mayor influencia en separar las especies de la RN en el espacio dimensional (Clarke et al., 2014). Las variables de mayor influencia fueron el porcentaje de cobertura de hojarasca, el microrrelieve, la elevación, la profundidad del horizonte superficial y la pendiente (fig. 4). Especies como I. flexuosa, I. eriocarpa y T. floribunda presentaron sus mayores VI en Am, las cuales parecen responder a lugares con menor porcentaje de hojarasca, menor elevación y más árboles caídos (fig. 4). Las semillas de Inga están rodeadas por una pulpa (sarcotesta/arilo) que favorece la dispersión por animales (Pennington, 1997), forman nodos radicales con rizobios que les permiten fijar nitrógeno atmosférico (N₂) (Leblanc et al., 2005); esa capacidad facilita su establecimiento en suelos pobres o sitios abiertos y perturbados, razón por la cual se les encuentra en las etapas sucesionales tempranas (Lozada et al., 2012). Thenardia floribunda es una liana con diásporas comosas (González-Rocha y Cerros-Tlatilpa, 2015), por lo que su dispersión es anemócora y le permite establecerse en lugares abiertos o bordes de vegetación.
Styrax ramirezii, D. salicifolia y P. hintonii tuvieron sus mejores expresiones en el Bo, con mayor PHS, microrrelieve cóncavo y mayor porcentaje de hojarasca. Las 3 especies tienen frutos de más de un cm de largo, carnosos (Cuevas-Guzmán et al., 2021), dispersados principalmente por aves, con capacidad para establecerse en lugares con hojarasca y suelos profundos, bajo el dosel del bosque o debajo de especies que constituyen matorrales, como ocurre con P. hintonii (Cuevas-Guzmán et al., 2021; Saldaña-Acosta y Jardel-Peláez, 1991). Carpinus caroliniana y Z. concinna presentaron sus mayores VI en Te, con las pendientes más fuertes y los suelos menos profundos; ambas especies son dispersadas principalmente por viento, con preferencia por áreas abiertas, donde se ha registrado que se ven favorecidas (Cuevas-Guzmán et al., 2021; Metzger, 1990). Para C. caroliniana se ha registrado su adaptación a una amplia variación ambiental, incluyendo su capacidad de propagación por semilla, rebrotes de tocones y brotes de raíces y establecerse en amplias condiciones de variación de luz (Metzger, 1990).
Las especies registradas y su estructura en la RN, sobre todo sus patrones de abundancia en los BMM del PEBM-NC, sugieren que la RN actual podría estar relacionada con eventos volcánicos históricos y con la variabilidad climática y ambiental observada después de estos eventos a lo largo del tiempo, como se ha registrado en algunas áreas del mundo con actividad volcánica (Arnalds, 2013; Pickarski et al., 2023). La ausencia de géneros que se encuentran bien representados en otras localidades del occidente de México con BMM, como Calatola, Magnolia, Matudaea, Meliosma, Podocarpus, Symplococarpon y Turpinia es notoria en el área de estudio, por lo que habría que indagar en el futuro en las posibles explicaciones de su ausencia en el PEBM-NC.
El entendimiento de los filtros ambientales que modulan el proceso de regeneración natural y generan diferentes ensamblajes en las comunidades de plantas es relevante para el diseño de prácticas de conservación de los ecosistemas forestales. Los resultados de este trabajo sugieren que, en el bosque mesófilo de montaña del PEBM-NC, la variación en la composición, diversidad y estructura de la comunidad de plantas leñosas presente en la regeneración podría estar influida principalmente por la capa de hojarasca, el microrrelieve, la profundidad del horizonte superficial del suelo y la elevación. Los resultados obtenidos sugieren que la interacción entre estos factores genera sinergias que explican la variación en la abundancia y distribución de las especies entre sitios en el espacio multidimensional.
Agradecimientos
A la Secretaría de Ciencia, Humanidades, Tecnología e Innovación (Secihti), por la beca otorgada al primer autor y al Sistema Nacional de Investigadoras e Investigadores. A la Universidad de Guadalajara por el apoyo a través del Programa de Fortalecimiento a Institutos, Centros y Laboratorios y del PRO-SNI. A Luis Guzmán Hernández, Valentín Halemy Yañez Ayala, Lizbeth Zárate Cuevas, Carlos Hurtado y Jaime Hernández por su apoyo durante el trabajo de campo. A los pobladores de las distintas localidades del municipio de Zapotitlán de Vadillo, por el apoyo en el acceso al área de estudio y por su acompañamiento en los recorridos en campo.
Referencias
Acil, N., Sadler, J. P., Senf, C., Suvanto, S. y Pugh, T. A. M. (2025). Landscape patterns in stand-replacing disturbances across the world’s forests. Nature Sustainability, 8, 86–98. https://doi.org/10.1038/s41893-024-01450-3
Arnalds, O. (2013). The influence of volcanic tephra (ash) on ecosystems. En D. L. Sparks (Ed.), Advances in agronomy, volume 121 (pp. 331–380). Waltham: Academic Press. https://doi.org/10.1016/b978-0-12-407685-3.00006-2
Arriaga, L. (1994). Dinámica de claros y procesos de regeneración en un bosque mesófilo de montaña (Tesis doctoral). Facultad de Ciencias, Universidad Nacional Autónoma de México. Ciudad de México.
Arriaga, L. (2000). Gap building phase regeneration in a tropical montane cloud forest of north-eastern México. Journal of Tropical Ecology, 16, 535–562. https://doi.org/10.1017/s0266467400001565
Ashton, M. S. y Kelty, M. J. (2018). The practice of silviculture: applied forest ecology (10th edition). Nueva York: John Wiley y Sons.
Barry, R. G. (2008). Mountain weather and climate (Third Edition). Nueva York: Cambridge University Press. https://doi.org/10.1017/CBO9780511754753
Beers, T. W., Dress, P. E. y Wensel, L. C. (1966). Notes and observations: aspect transformation in site productivity research. Journal of Forestry, 64, 691–692. https://doi.org/10.1093/jof/64.10.691
Brady, N. C. y Weil, R. R. (2016). The nature and properties of soils (15th Edition). Nueva Jersey: Pearson.
Capra, L., Gavilanes-Ruiz, J. C., Bonasia, R., Saucedo-Girón, R. y Sulpizio, R. (2015). Re-assessing volcanic hazard zonation of Volcán de Colima, México. Natural Hazards, 76, 41–61. https://doi.org/10.1007/s11069-014-1480-1
Chao, A. y Hsieh, T. C. (2016). iNEXT: interpolation and extrapolation for species diversity. R package version 2.0. https://doi.org/10.32614/cran.package.inext
Chao, A. y Jost, L. (2012). Coverage-based rarefaction and extrapolation: standardizing samples by completeness rather than size. Ecology, 93, 2533–2547. https://doi.org/10.1890/11-1952.1
Chao, A. y Ricotta, C. (2019). Quantifying evenness and linking it to diversity, beta diversity, and similarity. Ecology, 34, e02852. https://doi.org/10.1002/ecy.2852
Chazdon, R. L. (2014). Second growth: the promise of tropical forest regeneration in an age of deforestation. Chicago: University of Chicago Press. https://doi.org/10.7208/chicago/9780226118109.001.0001
Chazdon, R. L., Blüthgen, N., Brancalion, P. H. S., Heinrich, V. y Bongers, F. (2025). Drivers and benefits of natural regeneration in tropical forests. Nature Reviews Biodiversity, 1, 298–314. https://doi.org/10.1038/s44358-025-00043-y
Chazdon, R. L., Broadbent, E. N., Rozendaal, D. M. A., Bongers, F., Almeyda-Zambrano, A. M., Aide, T. M. et al. (2016). Carbon sequestration potential of second- growth forest regeneration in the Latin American tropics. Science Advances, 2, e1501639. https://doi.org/10.1126/sciadv.1501639
Chesson, P. (2000). Mechanisms of maintenance of species diversity. Annual Review of Ecology and Systematics, 31, 343–366. https://doi.org/10.1146/annurev.ecolsys.31.1.343
Chinchilla, I. F. y Goebel-Otárola, N. (2023). Composición florística de la regeneración natural de un bosque muy húmedo premontano en Poás, Costa Rica. Uned Research Journal, 15, e4412. https://doi.org/10.22458/urj.v15i1.4412
Chown, S. L. y Gaston, K. J. (2000). Areas, cradles and museums: the latitudinal gradient in species richness. Trends in Ecology & Evolution, 15, 311–315. https://doi.org/10.1016/S0169-5347(00)01910-8
Clark, J. S., Beckage, B., Camill, P., Cleveland, B., HilleRisLambers, J., Lichter, J. et al. (1999). Interpreting recruitment limitation in forests. American Journal of Botany, 86, 1–16. https://doi.org/10.2307/2656950
Clarke, K. R. y Gorley, R. N. (2015). Primer v7: user manual/ tutorial. https://www.primer-e.com/
Clarke, K. R., Gorley, R. N., Somerfield, P. J. y Warwick, R. M. (2014). Change in marine communities: an approach to statistical analysis and interpretation (3rd edition). Plymouth: Primer-E Ltd.
Clarke, K. R., Tweedley, J. y Valesini, F. (2013). Simple shade plots aid better long-term choices of data pre-treatment in multivariate assemblage studies. Journal of The Marine Biological Association of the United Kingdom, 94, 1–16. https://doi.org/10.1017/s0025315413001227
Connell, J. H. y Slatyer, R. O. (1977). Mechanisms of succession in natural communities and their role in community stability and organization. The American Naturalist, 111, 1119–1144. https://doi.org/10.1086/283241
Cornwell, W. K., Schwilk, D. W. y Ackerly, D. D. (2006). A trait-based test for habitat filtering: convex hull volume. Ecology, 87, 1465–1471. https://doi.org/10.1890/0012-9658(2006)87[1465:ATTFHF]2.0.CO;2
Cruz-Peña, N. (2017). Estructura, diversidad y distribución de comunidades de bosque mesófilo de montaña y de Abies en un gradiente altitudinal del volcán Nevado de Colima y su vulnerabilidad ante el cambio climático (Tesis de maestría). Centro Universitario de Ciencias Biológicas y Agropecuarias (CUCBA), Universidad de Guadalajara. Zapopan, Jalisco.
Cuevas-Guzmán, R., Núñez-López, N. M. y Sánchez-Rodríguez, E. V. (2021). Flora arbórea de la Estación Científica Las Joyas y áreas adyacentes, Sierra de Manantlán, México. Autlán de Navarro: Universidad de Guadalajara.
Dalla-Rosa, A., Silva, A. C., Higuchi, P., Koche Marcon, A., de Fátima Missio, F., Bento, M. A. et al. (2016). Natural regeneration of tree species in a cloud forest in Santa Catarina, Brazil. Revista Árvore, 40, 1083–1092. https://doi.org/10.1590/0100-67622016000600013
Diamond, J. M. (1975). Assembly of species communities. En J. M. Diamond y M. L. Cody (Eds.), Ecology and evolution of communities (pp. 342–444). Boston: Harvard University Press. Di Rienzo, J. A., Casanoves, F., Balzarini, M. G., González, L., Tablada, M. y Robledo, C. W. (2019). InfoStat versión 2019. Grupo InfoStat, Facultad de Ciencias Agropecuarias, Universidad Nacional de Córdoba. http://www.infostat.com.ar
Domínguez-Vera, J. G., Ruíz-Montoya, L., Castillo-Santiago, M. Á. y Álvarez-Gordillo, G. (2023). Conservación de bosques de montaña a través de manejo ecoturístico en San Cristóbal de Las Casas, Chiapas México. Revista Mexicana de Biodiversidad, 94, e945248. https://doi.org/10.22201/ib.20078706e.2023.94.5248
Facelli, J. M. y Pickett, S. T. A. (1991). Plant litter: its dynamics and effects on plant community structure. The Botanical Review, 57, 1–32. https://doi.org/10.1007/BF02858763
Falk, D. A., Palmer, M. A. y Zedler, J. B. (2006). Foundations of restoration ecology. Washington: Princeton University Press Island Press. https://doi.org/10.2307/jj.41003482
Ferrari, L. (2000). Avances en el conocimiento de la Faja Volcánica Transmexicana durante la última década. Boletín de la Sociedad Geológica Mexicana, 53, 84–92. https://doi.org/10.18268/bsgm2000v53n1a5
FigueroaRangel, B. L. y OlveraVargas, M. (2000). Regeneration patterns in relation to canopy species composition and site variables in mixed oak forests in the Sierra de Manantlán Biosphere Reserve, Mexico. Ecological Research, 15, 249– 261. https://doi.org/10.1046/j.1440-1703.2000.00346.x
Gentry, A. H. (1988). Changes in plant community diversity and floristic composition on environmental and geographical gradients. Annals of the Missouri Botanical Garden, 75, 1–34. https://doi.org/10.2307/2399464
Gómez-Pompa, A. y Vázquez-Yanes, C. (1985). Estudios sobre la regeneración de selvas en regiones cálido-húmedas de México. En A. Gómez-Pompa y S. del Amo (Eds.), Investigaciones sobre la regeneración de selvas altas en Veracruz, México. Vol. II (pp. 1–25). Ciudad de México: Inireb/ Editorial Alhambra Mexicana.
González-Rocha, E. y Cerros-Tlatilpa, R. (2015). La familia Apocynaceae (Apocynoideae y Rauvolfioideae) en el estado de Morelos, México. Acta Botanica Mexicana, 110, 21–70. https://doi.org/10.21829/abm110.2015.191
Gratzer, G. y Waagepetersen, R. P. (2018). Seed dispersal, microsites or competition-what drives gap regeneration in an old-growth forest? An application of spatial point process modelling. Forests, 9, 230. https://doi.org/10.3390/f9050230
Guerrero-Hernández, R., González-Gallegos, J. G. y Castro- Castro, A. (2014). Análisis florístico de un bosque de Abies y el bosque mesófilo de montaña adyacente en Juanacatlán, Mascota, Jalisco, México. Botanical Sciences, 92, 541–562.
Harper, J. L. (1977). Population Biology of Plants. Nueva York: Academic Press.
HilleRisLambers, J., Adler, P. B., Harpole, W. S., Levine, J. M. y Mayfield, M. M. (2012). Rethinking community assembly through the lens of coexistence theory. Annual Review of Ecology, Evolution, and Systematics, 43, 227–248. https://doi.org/10.1146/annurev-ecolsys-110411-160411
Holl, K. D., Loik, M. E., Lin, E. H. V. y Samuels, I. A. (2000). Tropical montane forest restoration in Costa Rica: over- coming barriers to dispersal and establishment. Restora- tion Ecology, 8, 339–349. https://doi.org/10.1046/j.1526-100x.2000.80049.x
Howe, H. F. y Smallwood, J. (1982). Ecology of seed dispersal. Annual Review of Ecology and Systematics, 13, 201–228.
Ibarra-Manríquez, G., Rendón-Sandoval, F. J., Cornejo-Tenorio, G. y Carrillo-Reyes, P. (2015). Lianas of Mexico. Botanical Sciences, 93, 365–417. http://dx.doi.org/10.17129/botsci.123
Jardel-Peláez, E. J., Ezcurra, E., Cuevas-Guzmán, R., Santiago- Pérez, A. L. y Cruz C., P. (2004). Vegetación y patrones del paisaje. En R. Cuevas-Guzmán y E. J. Jardel (Eds.), Flora y vegetación de la Estación Científica Las Joyas (pp. 81–135). Guadalajara: Universidad de Guadalajara.
Jardel-Peláez, E. J., Rodríguez-Gómez, J. M., Ponce-Martínez, O., Vélica-Zúñiga, G., Quintero-Gradilla, S. D., Balcázar- Medina, O. E. et al. (2017). Caracterización geoecológica para el ordenamiento ecológico regional de la Junta Intermunicipal de Medio Ambiente del Río Ayuquila, Jalisco. Universidad de Guadalajara.
Jobbágy, E. G. y Jackson, R. B. (2000). The vertical distribution of soil organic carbon and its relation to climate and vegetation. Ecological Applications, 10, 423–436. https://doi.org/10.1890/1051-0761(2000)010[0423:TVDOSO]2.0.CO;2
Jost, L. (2006). Entropy and diversity. Oikos, 113, 363–375. https://doi.org/10.1111/j.2006.0030-1299.14714.x
Jost, L. (2007). Partitioning diversity into independent alpha and beta components. Ecology, 88, 2427–2439. https://doi.org/10.1890/06-1736.1
Jost, L. (2019). What do we mean by diversity? The path towards quantification. Mètode Science Studies Journal: Annual Review, 9, 55–61. https://doi.org/10.7203/metode.9.11472
Keddy, P. A. (1992). Assembly and response rules: two goals for predictive community ecology. Journal of Vegetation Science, 3, 157–164. https://doi.org/10.2307/3235676
Körner, C. (2007). The use of ‘altitude’ in ecological research. Trends in Ecology & Evolution, 22, 569–574. https://doi.org/10.1016/j.tree.2007.09.006
Leblanc, H. A., McGraw, R. L., Nygren, P. y Le Roux, C. (2005). Neotropical legume tree Inga edulis forms N – fixing symbiosis with fast-growing Bradyrhizobium strains. Plant and Soil, 275, 123–133. https://doi.org/10.1007/s11104-005-0808-8
Legendre, P. y Birks H. J. B. (2012). From classical to canonical ordination. En H. J. B. Birks, A. F. Lotter, S. Juggins y J. P. Smol (Eds.), Tracking environmental change using lake sediments, Vol. 5. Data handling and numerical techniques (pp. 201–248). Dordrecht: Springer. https://doi.org/10.1007/978-94-007-2745-8_8
Legendre, P. y Gallagher, E. D. (2001). Ecologically meaningful transformations for ordination of species data. Oecologia, 129, 271–280. https://doi.org/10.1007/s004420100716
Lozada, J. R., Arends, E., Sánchez, D., Villarreal, A., Soriano, P. y Costa, M. (2012). Vegetation succession of logged forest in the western alluvial plains of Venezuela. Journal of Tropical Forest Science, 24, 300–311.
Luhr, J. F. y Carmichael, I. S. E. (1980). The Colima Volcanic complex, Mexico. Contributions to Mineralogy and Petrology, 178, 343–372. https://doi.org/10.1007/BF00374707
Manrique-Ascencio, A., Williams-Linera, G. y Badano, E. I. (2022). Experimental drought on seedlings in a canopy gap and understory of a tropical cloud forest, Veracruz, Mexico. Acta Botanica Mexicana, 129, e2009. https://doi.org/10.21829/abm129.2022.2009
MartínezCasas, R., MonárrezGonzález, J. C., TorresRojo, J. y PérezVerdín, G. (2025). Evaluación de la regeneración natural en bosques templados con cubierta forestal continua en el noroeste de México. Revista Mexicana de Biodiversidad, 96, e965499. https://doi.org/10.22201/ib.20078706e.2025.96.5499
Martínez-Orea, Y., Castillo Argüero, S. y Guadarrama Chávez, P. (2009). La dispersión de frutos y semillas y la dinámica de comunidades. Ciencias, 96, 38–41.
Martínez-Ramos, M. y García-Orth, X. (2007). Sucesión ecológica y restauración de las selvas húmedas. Boletín de la Sociedad Botánica de México, 80, 69–84. https://doi.org/10.17129/botsci.1758
McCune, B. y Mefford, M. J. (2016). PC-ORD. Multivariate analysis of ecological data. Version 7.04. MjM Software, Gleneden Beach, Oregon, U.S.A.
Mendoza-Tafolla, R. O. (2016). Análisis fisicoquímico de frutos y actividad antimicrobiana de extractos de mamuyo (Styrax ramirezii Greenm) (Tesis de maestría). Facultad de Agrobiología “Presidente Juárez”, Universidad Michoacana de San Nicolás de Hidalgo. Uruapan, Michoacán.
Metzger, F. T. (1990). Carpinus caroliniana Walt. En R. M. Burns y B. H. Honkala (Eds.), Silvics of North America. Volume 2. Hardwoods agriculture handbook (pp. 179– 185). Washington: U.S. Department of Agriculture Forest Service.
Montgomery, D. C., Peck, E. A. y Vining, G. G. (2021). Introduction to linear regression analysis (Sixth edition). Nueva Jersey: John Wiley & Sons.
Morales-Arias, J. G., Olvera-Vargas, M., Cuevas-Guzmán, R., Figueroa-Rangel, B. L. y Sánchez-Rodríguez, E. V. (2018). Variación ambiental y composición florística de especies arbóreas en un bosque húmedo de montaña del occidente de México. Revista Mexicana de Biodiversidad, 89, 769– 783. https://doi.org/10.22201/ib.20078706e.2018.3.2456
Muñiz-Castro, M. A., Williams-Linera, G. y Martínez- Ramos, M. (2012). Dispersal mode, shade tolerance, and phytogeographical affinity of tree species during secondary succession in tropical montane cloud forest. Plant Ecology, 213, 339–353. https://doi.org/10.1007/s11258-011-9980-5
Muñoz, J. (2017). Regeneración natural: una revisión de los aspectos ecológicos en el bosque tropical de montaña del sur del Ecuador. Bosques Latitud Cero, 7, 130–143.
Nathan, R. y Muller-Landau, H. C. (2000). Spatial patterns of seed dispersal, their determinants and consequences for recruitment. Trends in Ecology & Evolution, 15, 278–285. https://doi.org/10.1016/s0169-5347(00)01874-7
Oliver, C. D. y Larson, B. C. (1996). Brief notice: forest stand dynamics, update edition. Forest Science, 42, 397. https://doi.org/10.1093/forestscience/42.3.397
Olvera-Vargas, M. y Figueroa-Rangel, B. L. (2023). Parcelas permanentes para la investigación ecológico-silvícola de largo plazo: manual para su establecimiento y remedición. Autlán de Navarro: Centro Universitario de la Costa Sur, Universidad de Guadalajara.
Ouyang, J., Biswas, S. R., Yin, C., Qing, Y. y Biswas, P. L. (2022). Shifting importance of abiotic versus biotic filtering from intact mature forests to post-clearcut secondary forests. Forests, 13, 672. https://doi.org/10.3390/f13050672
Palik, B. J., D’Amato, A. W. y Slesak, R. A. (2021). Wide-spread vulnerability of black ash (Fraxinus nigra Marsh.) wetlands in Minnesota USA to loss of tree dominance from invasive emerald ash borer. Forestry: An International Journal of Forest Research, 94, 455–463. https://doi.org/10.1093/forestry/cpaa047
Pennington, T. D. (1997). The genus Inga: botany. Kew: Royal Botanic Gardens.
Pickarski, N., Kwiecien, O. y Litt, T. (2023). Volcanic impact on terrestrial and aquatic ecosystems in the eastern Mediterranean. Communications Earth & Environment, 4, 167. https://doi.org/10.1038/s43247-023-00827-0
Pommerening, A., Szmyt, J. y Duchiron, M.-S. (2024). Revisiting silvicultural systems: towards a systematic and generic design of tree regeneration methods. Trees, Forest and People, 17, 100597. https://doi.org/10.1016/j.tfp.2024.100597
Poos, M. S. y Jackson, D. A. (2012). Addressing the removal of rare species in multivariate bioassessments: the impact of methodological choices. Ecological Indicators, 18, 82–90. https://doi.org/10.1016/j.ecolind.2011.10.008
Prieto, A., Rangel, J. O., Rudas, A. y Palacios, P. (1995). Aspectos estructurales y tipos de vegetación de la isla Mocagua, Rio Amazonas. Caldasia, 27, 463–480.
Quintana-Ascencio, P. F., Ramírez-Marcial, N., González- Espinosa, M. y Martínez-Ico, M. (2004). Sapling survival and growth of conifer and broad-leaved trees in success- ional highland habitats in Mexico. Applied Vegetation Science, 7, 81–88. https://doi.org/10.1111/j.1654-109X.2004.tb00598.x
Quevedo-Rojas, A., Jerez-Rico, M., Fariñas, M. R., Schwarzkopf, T. y García-Núñez, C. (2024). Light penetration and topography shape juvenile tree species assemblies in the understory of the tropical Andean cloud forest. Journal of Tropical Ecology, 40, e21. https://doi.org/10.1017/S0266467424000178
Quevedo-Rojas, A., Schwarzkopf, T., García, C. y Jerez-Rico, M. (2016). Light environment in the understory of an Andean cloud forest: canopy structure and climatic seasonality. Revista de Biología Tropical, 64, 1699–1707. https://doi.org/10.15517/rbt.v64i4.21861
Ramírez-Marcial, N. (2001). Diversidad florística del bosque nuboso del norte de Chiapas y su relación con México y Centroamérica. Botanical Sciences, 69, 63–76. https://doi.org/10.17129/botsci.1647
Ramírez-Marcial, N., Camacho-Cruz, A., González-Espinosa, M. y López-Barrera, F. (2006). Establishment, survival and growth of tree seedlings under successional montane oak forests in Chiapas, Mexico. En M. Kappelle (Ed.), Ecology and conservation of neotropical oak forests (pp. 177–189). Heidelberg: Springer. https://doi.org/10.1007/3-540-28909-7_14
Rivas-Rivas, M. B. (2023). Factores ecológicos que inhiben la regeneración natural de los encinos en áreas degradadas de San Luis Potosí (Tesis doctoral). Instituto Potosino de Investigación Científica y Tecnológica. http://hdl.handle.net/11627/6235
Rzedowski, J. (1978). Vegetación de México. Ciudad de México: Editorial Limusa.
Rzedowski, J. (1996). Análisis preliminar de la flora vascular de los bosques mesófilos de montaña de México. Acta Botanica Mexicana, 35, 25–44. https://doi.org/10.21829/abm35.1996.955
Saldaña-Acosta, A. y Jardel-Peláez, E. J. (1991). Regeneración natural del estrato arbóreo en bosques subtropicales de montaña en la sierra de Manantlán, México: estudios preliminares. Biotam, 3, 36–49.
Sánchez-Ramos, L. E., Navarro-Pérez, S., Trejo-Vázquez, R. I., Lira-Noriega, A., Guevara-Lazcano, E. y Navarro- Sigüenza, A. G. (2022). Diversidad, ecología y vulcanismo: los ensamblajes de aves del complejo volcánico de Colima, México. Revista Mexicana de Biodiversidad, 93, e933973. https://doi.org/10.22201/ib.20078706e.2022.93.3973
Sánchez-Rodríguez, E. V., Figueroa-Rangel, B. L., Cuevas- Guzmán, R., Olvera-Vargas, M., Muñiz-Castro, M. Á. y Guzmán-Hernández, L. (2018). Dinámica espacio-temporal del bosque mesófilo del centro-sur del estado de Jalisco, México. Polibotánica, 46, 91–118. https://doi.org/10.18387/polibotanica.46.5
Santiago-Pérez, A. L., Jardel-Peláez, E. J., Cuevas-Guzmán, R. y Huerta-Martínez, F. M. (2009). Vegetación de bordes en un bosque mesófilo de montaña del occidente de México. Boletín de la Sociedad Botánica de México, 85, 31–49. https://doi.org/10.17129/botsci.2301
Sgarbi, L. F., Bini, L. M., Heino, J., Jyrkänkallio-Mikkola, J., Landeiro, V. L., Santos, E. P. et al. (2020). Sampling effort and information quality provided by rare and common species in estimating assemblage structure. Ecological Indicators, 110, 105937. https://doi.org/10.1016/j.ecolind.2019.105937
Sutherland, W. J., Pullin, A. S., Dolman, P. M. y Knight, T. M. (2004). The need for evidence-based conservation. Trends in Ecology and Evolution, 19, 305–308. https://doi.org/10.1016/j.tree.2004.03.018
Tíscar-Oliver, P. A. (2015). Patterns of shrub diversity and tree regeneration across topographic and stand-structural gradients in a Mediterranean forest. Forest Systems, 24, e011. https://doi.org/10.5424/fs/2015241-05887
Toledo-Aceves, T., Trujillo-Miranda, A. L. y López-Barrera, F. (2021). Tree regeneration in active and passive cloud forest restoration: functional groups and timber species. Forest Ecology and Management, 489, 119050. https://doi.org/10.1016/j.foreco.2021.119050
Trujillo-Miranda, A. L., Toledo-Aceves, T., López-Barrera, F. y Gerez-Fernández, P. (2018). Active versus passive restora- tion: recovery of cloud forest structure, diversity and soil condition in abandoned pastures. Ecological Engineering, 117, 50–61. https://doi.org/10.1016/j.ecoleng.2018.03.011
Vargas-Rueda, A. F. (2018). Diversidad, estructura e inventario florístico del bosque mesófilo de montaña de Huiloapan de Cuauhtémoc, Veracruz, México (Tesis de maestría). Universidad Veracruzana. Veracruz, México.
Veblen, T. T., Kitzberger, T. y Lara, A. (1992). Disturbance and forest dynamics along a transect from Andean rain forest to Patagonian shrubland. Journal of Vegetation Science, 3, 507–520. https://doi.org/10.2307/3235807
Wang, Z., Wang, D., Liu, Q., Xing, X., Liu, B., Jin, S. et al. (2022). Meta-analysis of effects of forest litter on seedling establishment. Forests, 13, 644. https://doi.org/10.3390/f13050644
Weiher, E. y Keddy, P. (1995). Assembly rules, null models, and trait dispersion: new questions from old patterns. Oikos, 74, 159–164. https://doi.org/10.2307/3545686
Whittaker, R. H. (1967). Gradient analysis of vegetation. Biological Reviews, 42, 207–264. https://doi.org/10.1111/j.1469-185x.1967.tb01419.x
Williams-Linera, G., López-Barrera, F. y Bonilla-Moheno, M. (2015). Estableciendo la línea de base para la restauración del bosque de niebla en un paisaje periurbano. Madera y Bosques, 21, 89–101. https://doi.org/10.21829/myb.2015.212447
Xiong, S. y Nilsson, C. (1999). The effects of plant litter on vegetation: a meta-analysis. Journal of Ecology, 87, 984– 994. https://doi.org/10.1046/j.1365-2745.1999.00414.x
Yáñez-Ayala, V. H. (2024). Composición florística, diversidad y estructura de plantas leñosas del bosque mesófilo en el parque estatal Nevado de Colima (Tesis de maestría). Centro Universitario de la Costa Sur (CUCSur), Universidad de Guadalajara. Guadalajara, Jalisco.
Yao, L., Xu, Y., Wu, C., Deng, F., Yao, L., Ai, X. et al. (2022). Community assembly of forest vegetation along compound habitat gradients across different climatic regions in China. Forests, 13, 1593. https://doi.org/10.3390/f13101593
Zagt, R. J. y Werger, M. J. A. (1998). Tree life-history patterns and forest dynamics. Acta Botanica Neerlandica, 47, 433–450.
Zárate-Cuevas, L. (2023). Dinámica espacio-temporal de la regeneración en un bosque mesófilo de montaña en el centro occidente de México (Tesis maestría). Centro Universitario de la Costa Sur (CUCSur), Universidad de Guadalajara. Guadalajara, Jalisco.